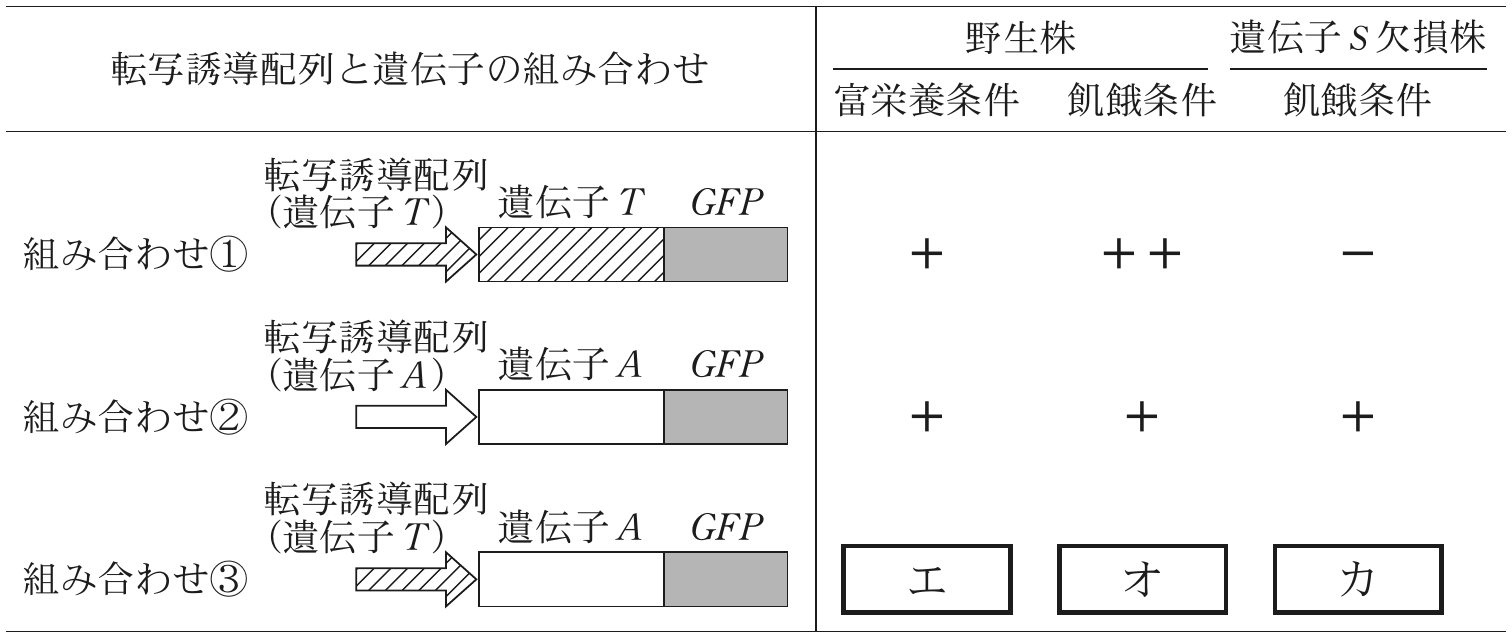
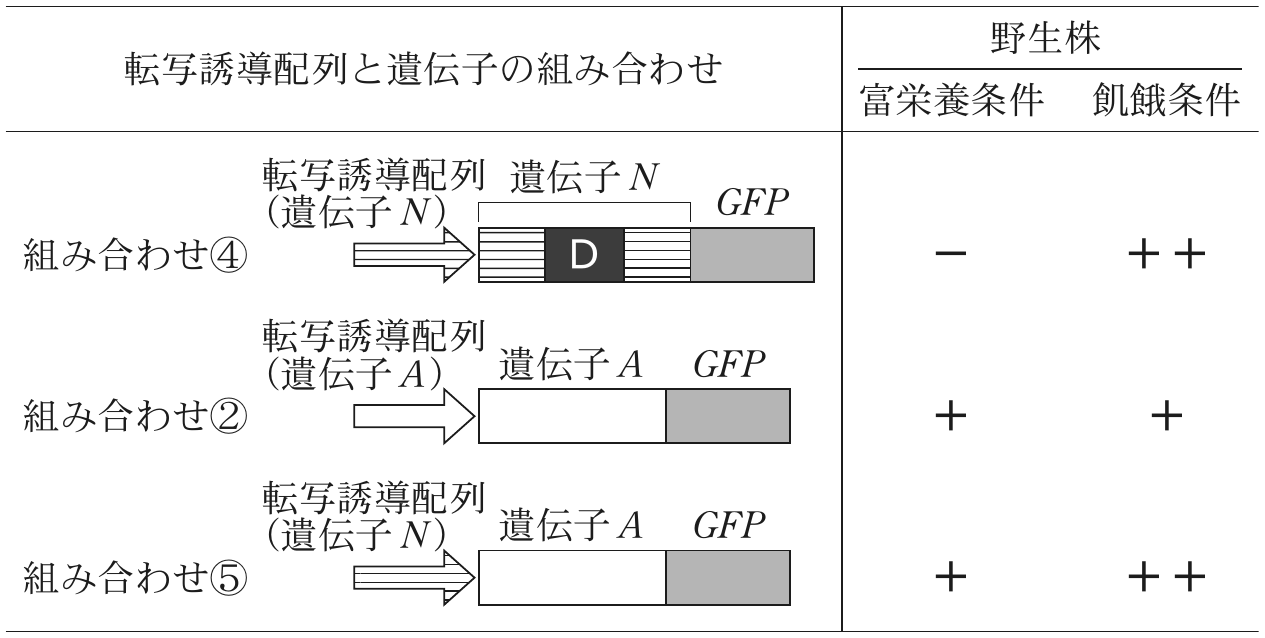
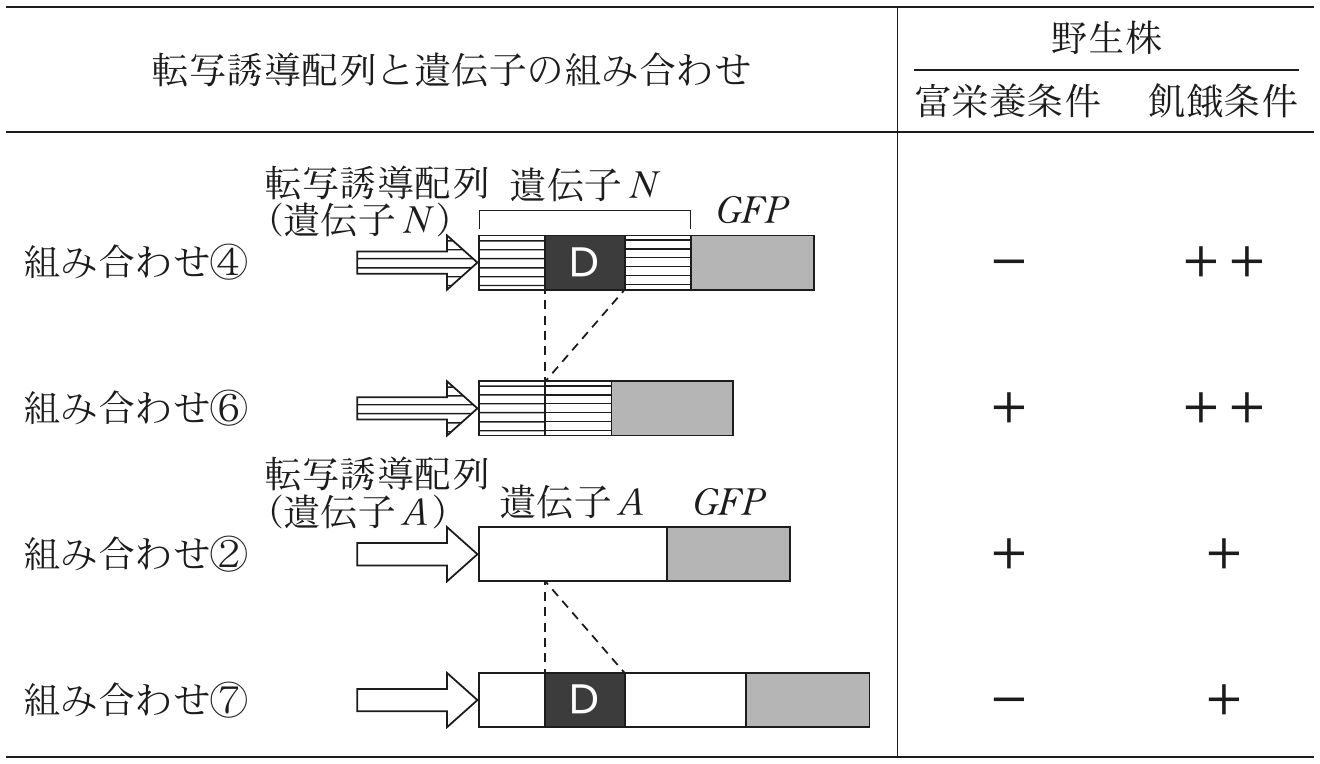
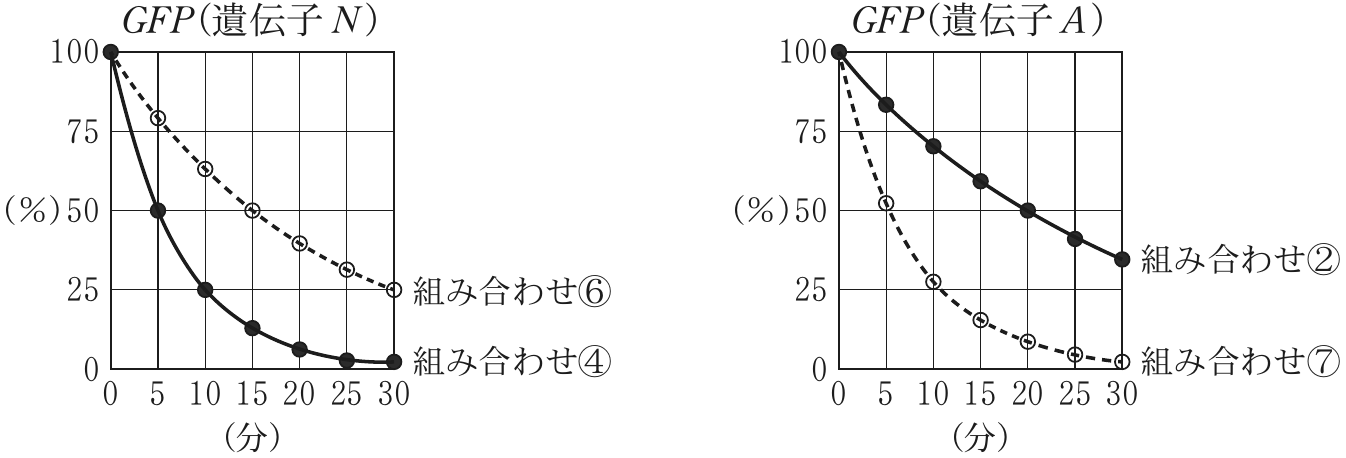
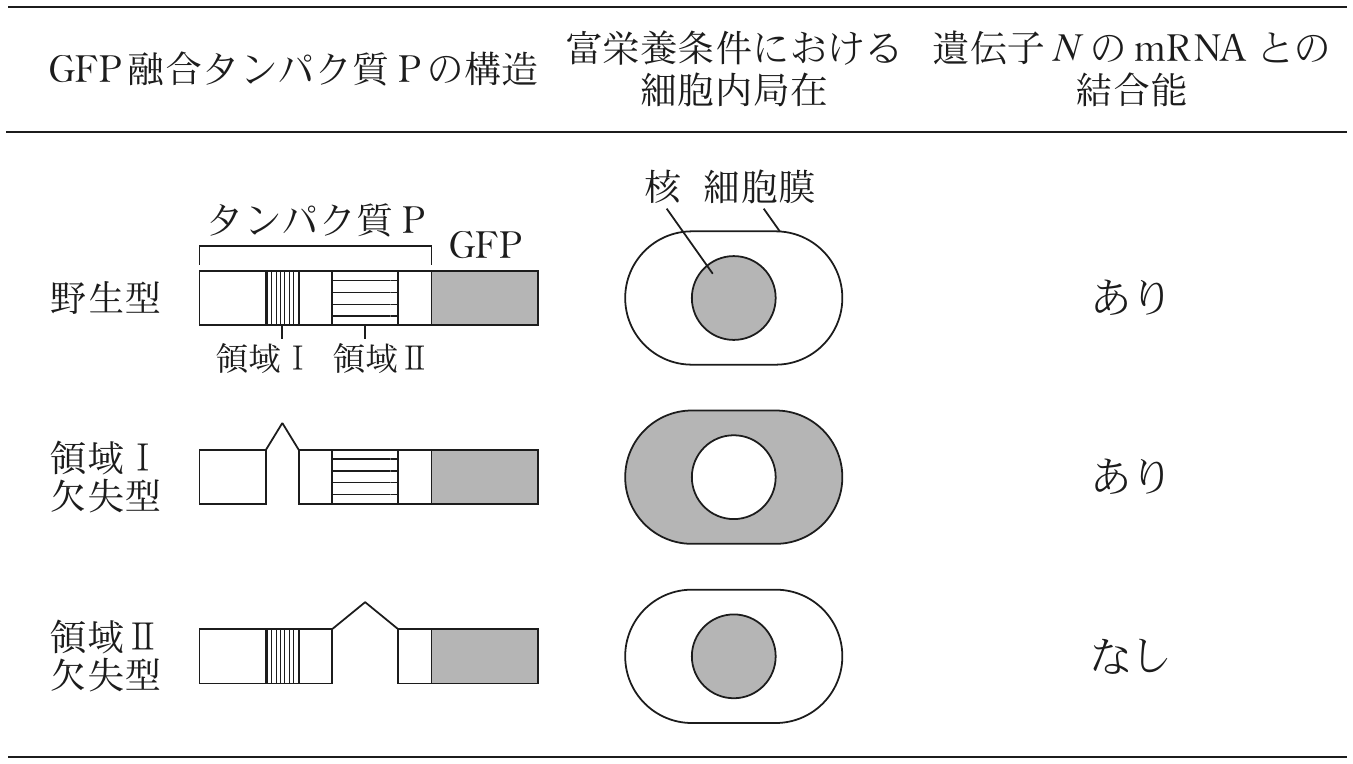
実験5 遺伝子 の mRNA の D 配列が機能するためにはタンパク質 P が結合することが必要であり,タンパク質 P がはたらくためには D 配列との結合が必要である。タンパク質 P のアミノ酸配列には2つの機能的な領域が存在する。野生型および各領域を欠失させた遺伝子 に 遺伝子を融合したものを野生株に導入し,富栄養条件におけるタンパク質 P の細胞内の分布(局在)を解析した。また,それぞれのタンパク質 P と,遺伝子 の mRNA との結合能を解析した。それらの結果を表1—4に示す。なお,遺伝子 の各領域の欠失により翻訳時のコドンの読み枠に変化は生じないものとする。
表1—4 (実験5)タンパク質Pの細胞内局在と遺伝子 の mRNA との結合能
GFP の蛍光シグナルが観察された細胞内の場所を灰色で示す。
— 46 —
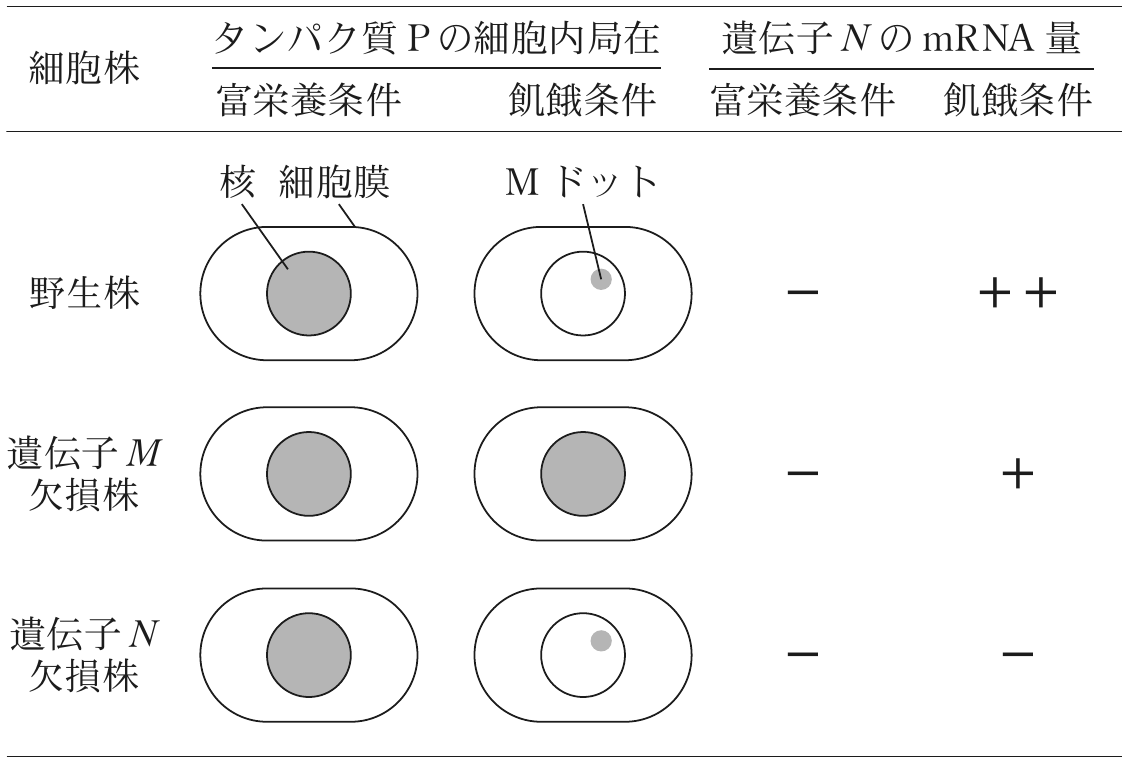
実験6 遺伝子 がコードするタンパク質 M は,飢餓条件で発現し,核内で集合体(M ドット)を形成することにより,減数分裂の進行に重要な役割を果たす。一方,タンパク質 P の細胞あたりの存在量は栄養状態によって変化せず,それ自体がもつ活性も栄養状態で変化しない。タンパク質 P とタンパク質 M の関係を調べるため,遺伝子 に 遺伝子を融合したものを,野生株,遺伝子 欠損株および遺伝子 欠損株に導入し,GFP 融合タンパク質 P の細胞内局在を解析した。また,それぞれの条件で遺伝子 の mRNA 量を解析した。その結果を表1—5に示す。なお,GFP 融合タンパク質 P は,各細胞株において同程度の量で存在しており,もともと細胞内に存在しているタンパク質 P の機能を阻害しないものとする。また,遺伝子 の mRNA 量は細胞あたりの量とする。
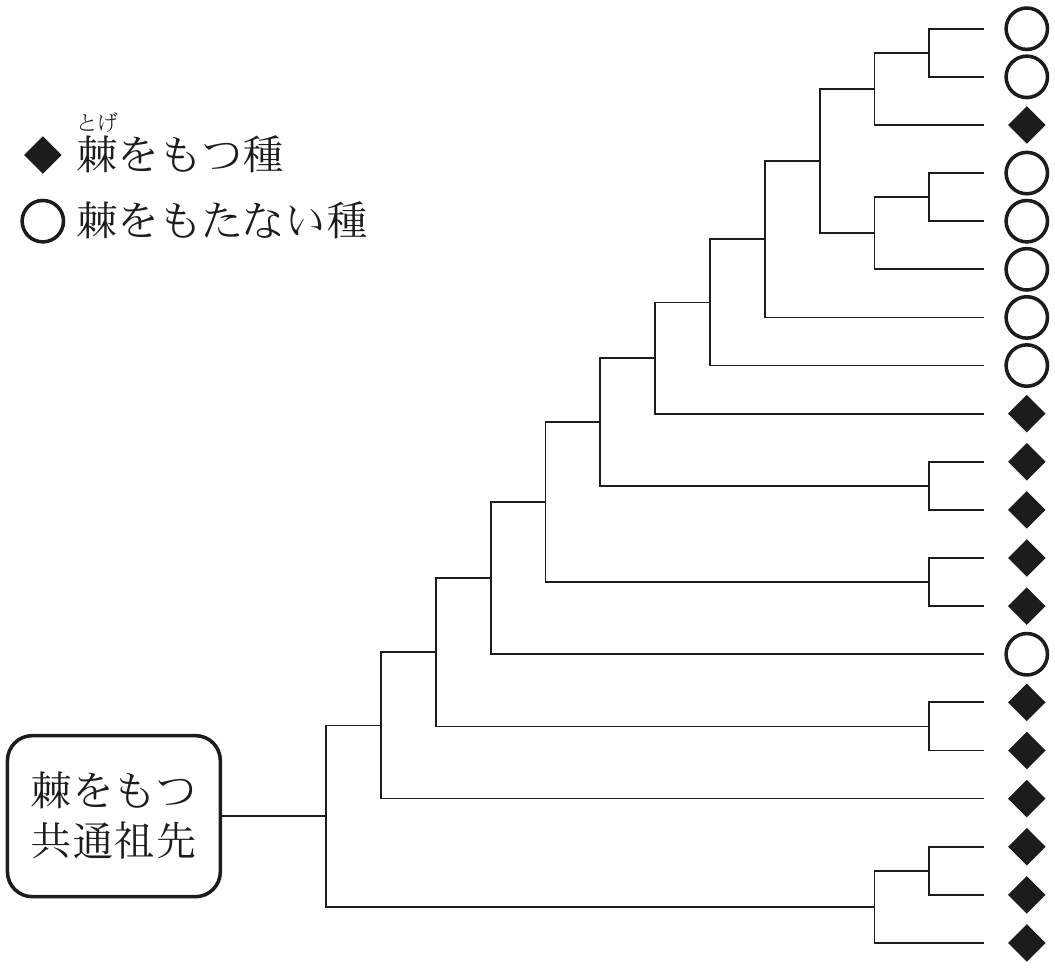
A 下線部(ア)について。図2—1はナス属に属する種の系統関係と,それぞれの種が棘をもつか,もたないかを示している。これらの種の共通祖先には棘があり,一度棘が失われたら再獲得は起きないと仮定するとき,この系統樹に示される種の進化の過程で,棘の喪失が何回起きたと考えられるか。最も少ない場合の回数を答えよ。
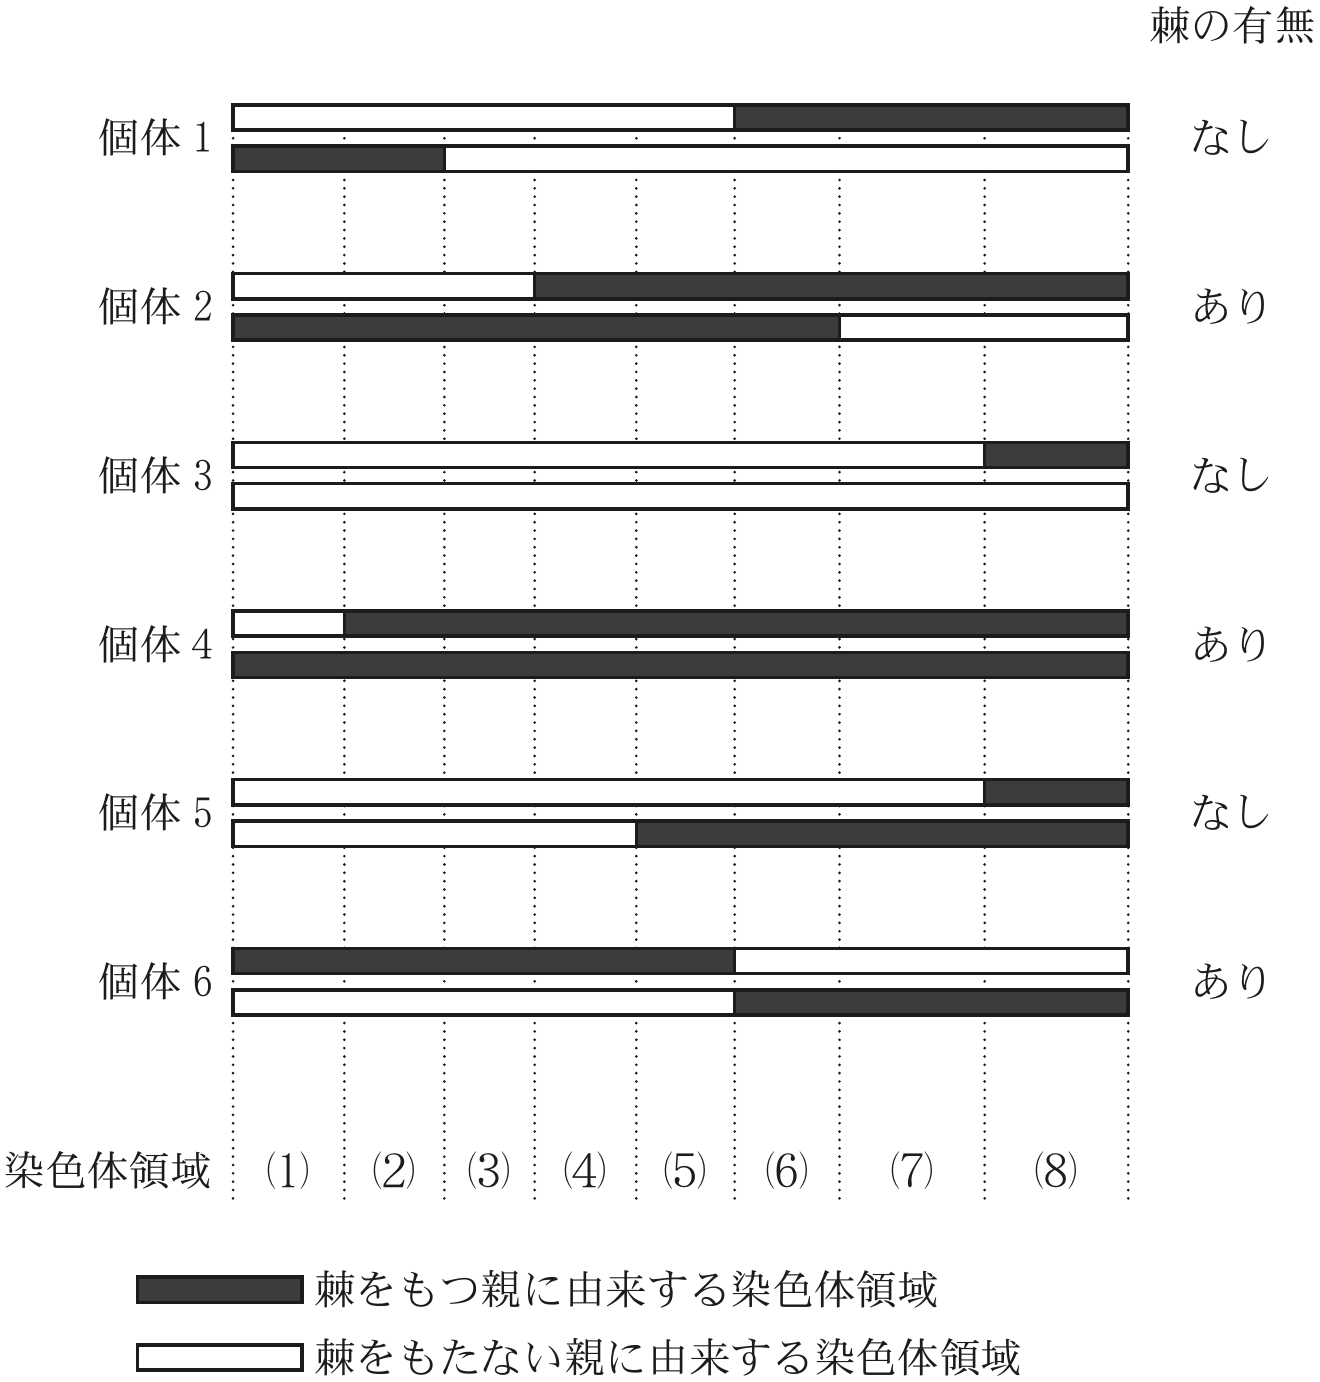
B 下線部(イ)について。ナス属のある植物種 K において,棘の有無は1番染色体上の1つの遺伝子座で決定されることがわかっていた。そこで,植物種 K の棘をもつ個体と,もたない個体の交配に由来する (雑種第2代)個体について,1番染色体の各領域の由来と棘の有無との関係を調べたところ,図2—2のようになった。遺伝子 が棘の有無を決定すると仮定すると,図2—2の(1)〜(8)で示された各領域のうち,遺伝子 が含まれる領域はどれか。考えられる領域を全て選べ。ただし,植物種 K は二倍体であり,図2—2には個体ごとに1対の相同染色体が示されている。
— 53 —
図2—2 個体における棘の有無と1番染色体の各領域の由来
C 下線部(ウ)について。オーキシンの機能として正しい記述を以下の選択肢(1)〜(5)から全て選べ。
(1) 適切な濃度において細胞の伸長を促進する。
(2) 種子に蓄積して発芽を抑制する。
(3) 葉柄のつけ根に離層を形成させることで落葉を促進する。
(4) 乾燥に応答して気孔の閉鎖を促進する。
(5) 頂芽で合成されて,側芽の成長を促進する。
— 54 —
Ⅱ 次の文1と文2を読み,問D〜Gに答えよ。
[文1]
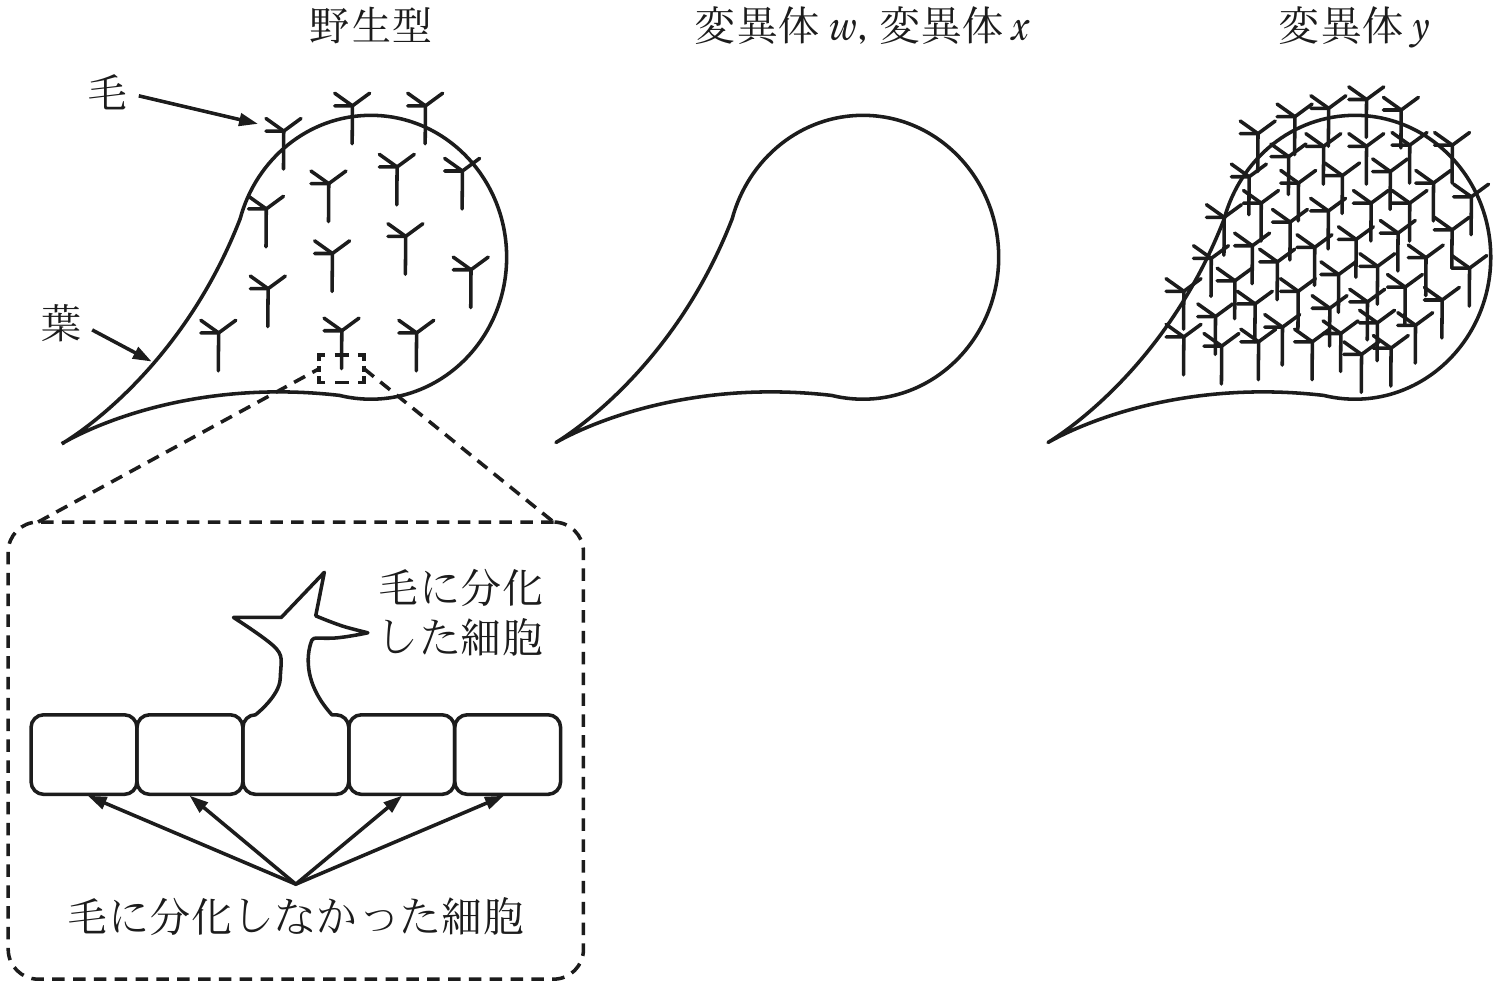
ある植物種 M の野生型個体は,葉の表面に単一の細胞からなる毛をもつ。毛は,毛に分化しなかった複数の細胞で隔てられることで,一定の間隔をとる(図2—3左)。このような葉表面の毛の発生機構を調べるために以下の実験を行った。
実験3 タンパク質 W と X は互いに結合して複合体を形成し,遺伝子 ,, および毛の形成にかかわる他の遺伝子群の転写を活性化することがわかった。タンパク質 Y はタンパク質 W と似たアミノ酸配列をもち,タンパク質 W の代わりにタンパク質 X とともにタンパク質複合体を形成することもわかった。
実験4 タンパク質 Y は表皮系の細胞間を移動することがわかった。この移動は,隣接する細胞どうしが細胞壁をつらぬいて連結する,原形質連絡とよばれる構造を通じて起きていた。一方,タンパク質 W と X の細胞間移動はみられなかった。
— 56 —
[文2]
植物種 M の近縁種である植物種 N の野生集団では,葉に毛をもつ個体(有毛型)ともたない個体(無毛型)の両方がみられる。植物種 N では,植物種 M で見つかった遺伝子 に相当する遺伝子の機能が失われることにより,有毛型から無毛型が生じている。また,有毛型と無毛型は互いに交配して子孫を残すことができ,有毛型は無毛型に対して顕性である。
毛には,昆虫などの食害から身を守るという機能がある。葉に毛をもつことで食害から身を守ることができるのであれば,有利な有毛型の性質が集団中に広まると考えられるが,実際の植物種 N の野生集団では,一つの集団の中に有毛型と無毛型の両方が存在することがある。集団中で有毛型と無毛型の両方が維持されるしくみを調べるために以下の実験5を行った。
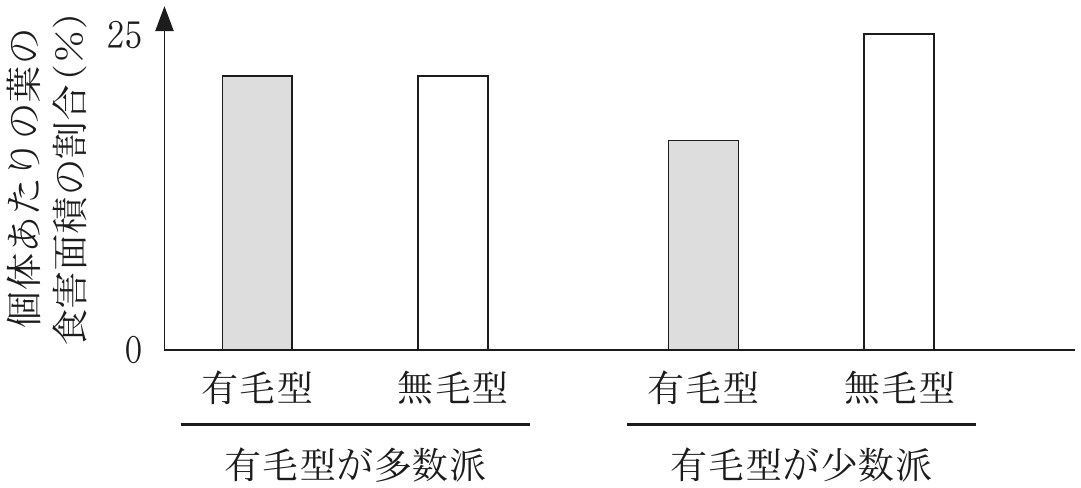
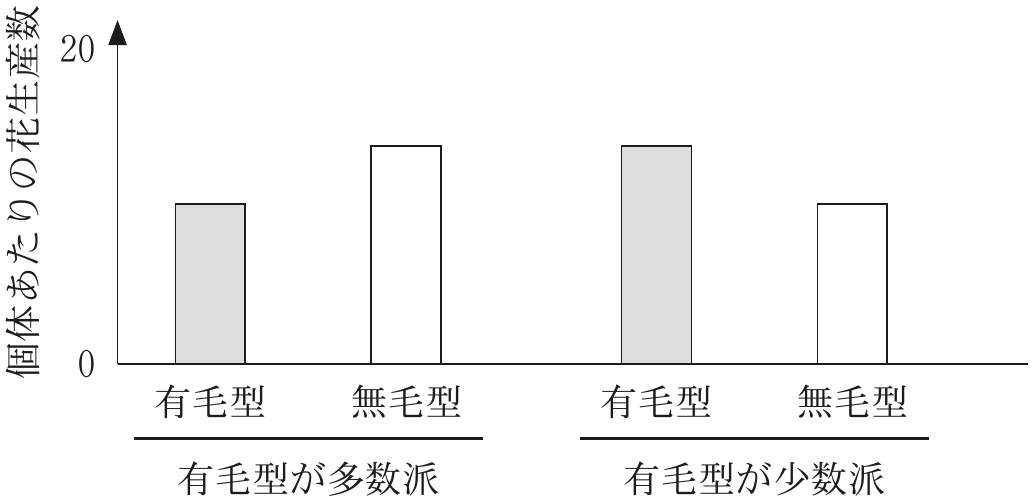
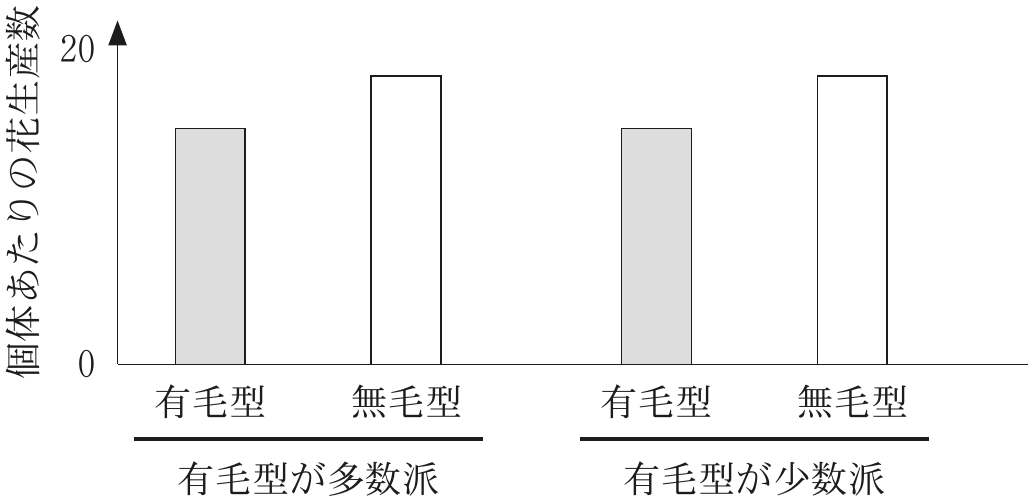
実験5 植物種 N の野生集団では,ハムシの1種(以下ハムシと呼ぶ)が主に葉を食害する。このハムシは飛べないため,地面を歩き回って植物種 N を探索する。ハムシによる食害と有毛型,無毛型の個体の頻度との関係を調べるために,頻度を人為的に変えられる実験区を設定した。有毛型が多数派(頻度 80 %)の実験区と少数派(頻度 20 %)の実験区でそれぞれ有毛型,無毛型の食害の程度と花生産数を調べたところ,図2—4および図2—5の結果が得られた。同様の実験区でハムシを人為的に排除し花生産数を調べたところ,図2—6の結果が得られた。ただし,食害前の個体あたりの葉の総面積は,有毛型と無毛型の間,および異なる実験区の間で変わらないものとする。なお,花生産数が多いほど,適応度が高いことを示す。
D 下線部(エ)について。タンパク質 W,X,Y は毛の形成を促進する因子か,抑制する因子か。実験1をふまえて,それぞれについて答えよ。
解答例:W—促進,X—抑制,Y—促進
E 葉の発生初期に,毛の発生にかかわる因子の濃度が細胞間でばらつくことで,後に毛に分化する細胞としない細胞が生じる。実験1〜4をふまえて,こうした細胞分化の過程におけるタンパク質 W,X,Y のふるまいを,以下の用語を全て用いて4行以内で説明せよ。同じ用語を複数回用いても構わない。
[用語] 正のフィードバック,移動,複合体
F 実験5の結果にもとづき,ハムシが存在する環境で,有毛型が多数派のときに無毛型の方が花生産数が多くなる理由について,毛の形成に必要な資源の観点から2行以内で説明せよ。
— 59 —
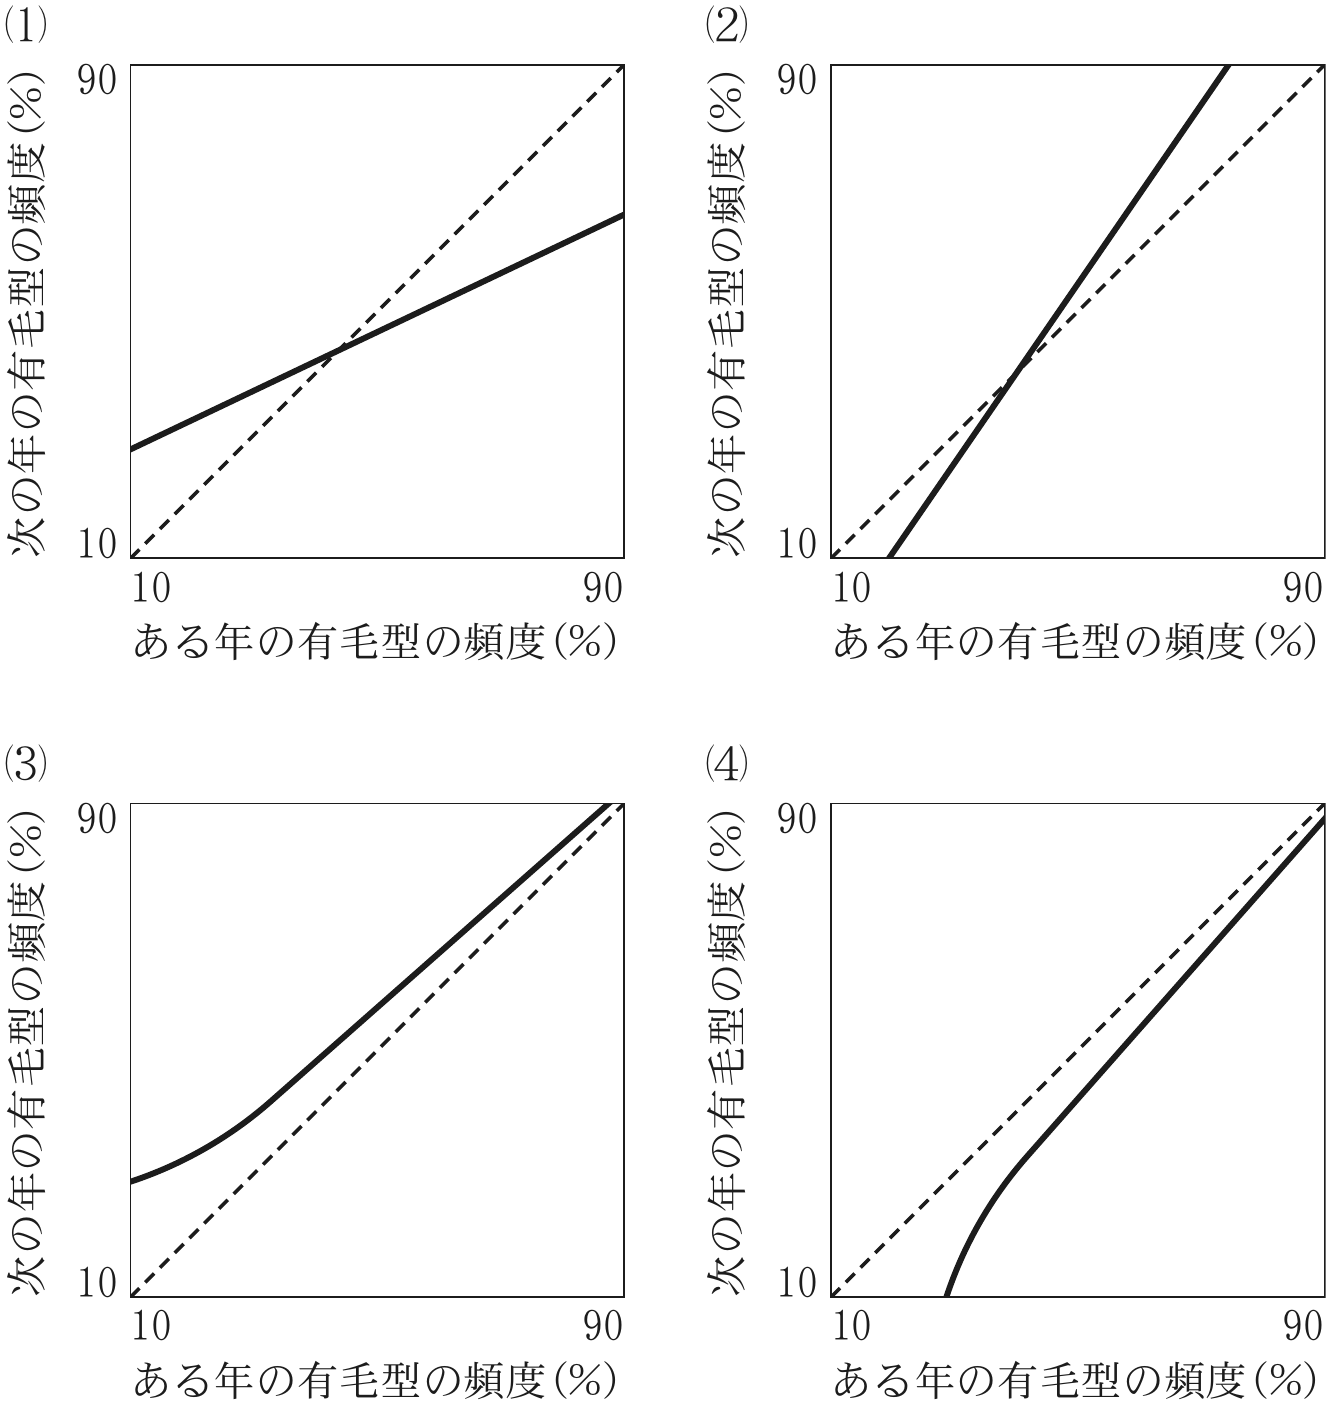
G 植物種 N の野生集団において数年間複数の調査区を設定し,各調査区における有毛型,無毛型の頻度を毎年調査した。実験5の結果から,ある年と次の年の有毛型の頻度の関係はどのようになるか。以下の(1)〜(4)の中からもっとも適切なものを1つ選べ。また,選んだ理由を,実験5の結果をふまえ,有毛型,無毛型の頻度と適応度の観点から3行以内で説明せよ。なお,ハムシの個体数は年ごとに大きな変動はなく,実験5が行われた時と同程度であるとする。さらに,集団外からの植物個体の移入はないものとする。点線はある年の有毛型の頻度と次の年の有毛型の頻度が等しいことを示す。
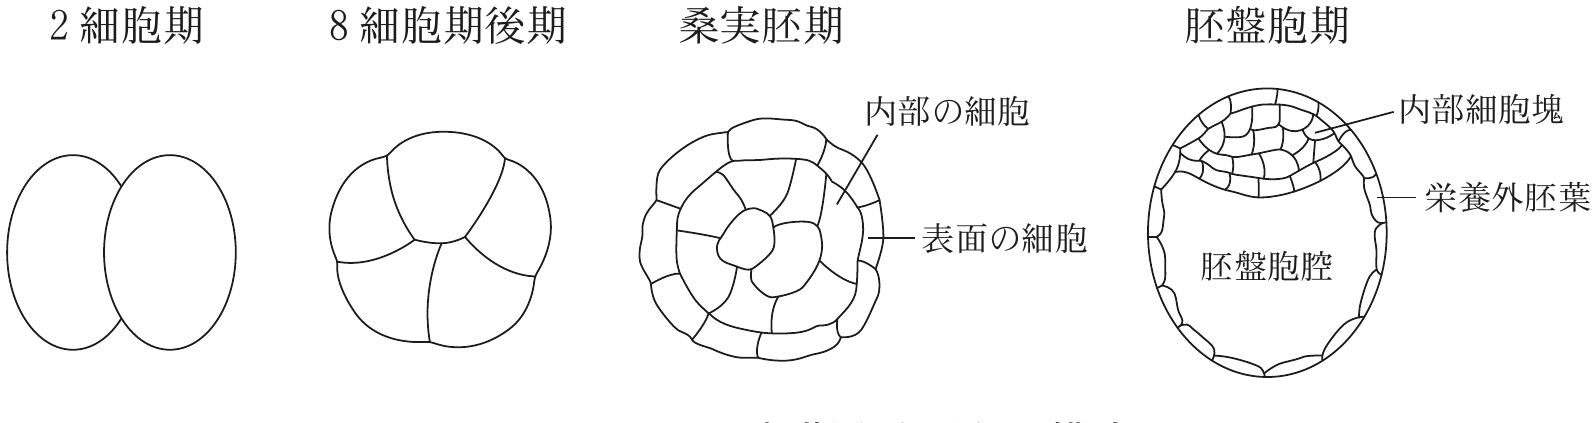
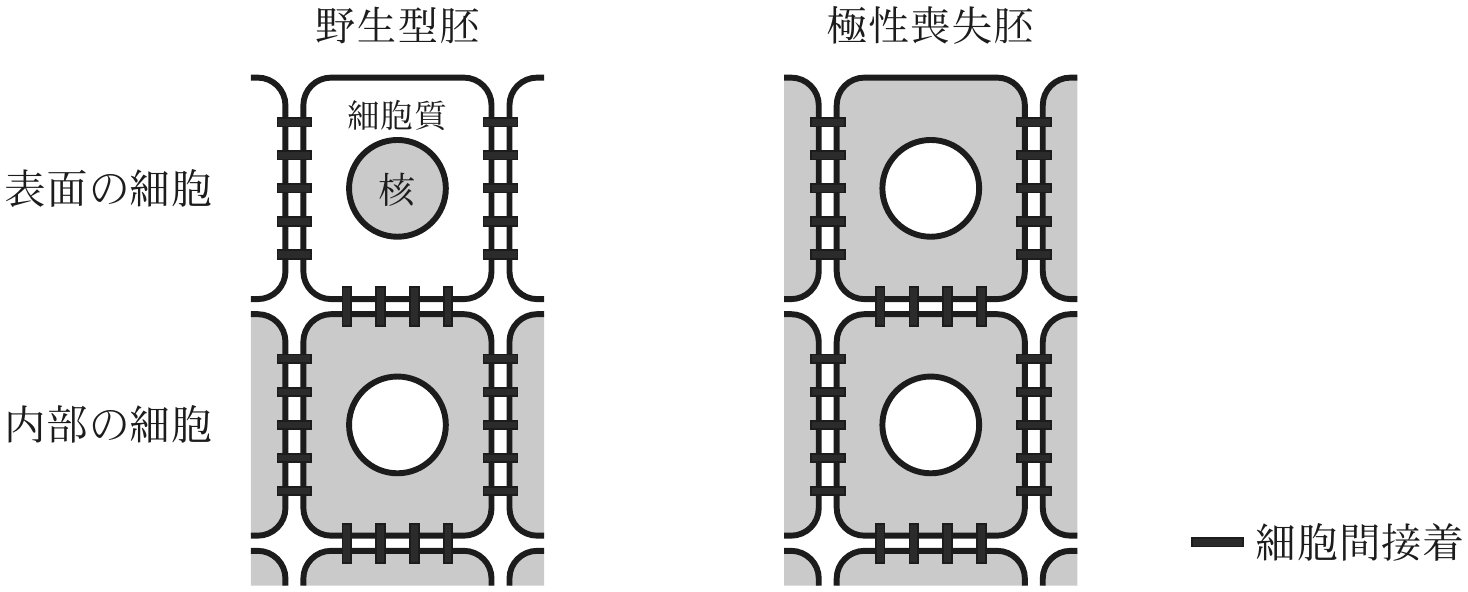
桑実胚期および胚盤胞期では,転写調節因子 A が胚の表面の細胞の核に存在し(図3—5,左),栄養外胚葉の発生に必要な遺伝子 の発現を誘導する。胚の内部の細胞では転写調節因子 A は細胞質に存在し,遺伝子 は発現しない。細胞が胚における位置に応じて転写調節因子 A の細胞内における分布(細胞内局在)を調節し,細胞運命が決定されるしくみを調べるために,実験4〜6を行った。
— 67 —
図3—5 野生型胚および極性喪失胚における転写調節因子 A の細胞内局在
マウス桑実胚の断面像。胚表面近傍を拡大して示す。灰色で示す部位に転写調節因子 A が局在する。
実験4 桑実胚および胚盤胞では,胚の表面に位置する細胞が胚の内外方向に沿った極性を発達させる。一方,内部の細胞はそのような極性をもたない。遺伝子操作により胚の内外方向に沿った細胞極性を喪失させると,胚の表面に位置する細胞においても転写調節因子 A が細胞質に局在し,遺伝子 の発現が顕著に減少した(図3—5,右)。このとき,内部の細胞における転写調節因子 A の局在と遺伝子 の発現は変化しなかった。なお,この遺伝子操作は細胞間接着に影響しない。
実験5 薬剤処理により細胞間接着を減弱させると,桑実胚の全ての細胞で転写調節因子 A が核に局在し,遺伝子 が発現した。なお,この薬剤処理は細胞極性に影響しない。
実験6 複数の8細胞期の胚の細胞をバラバラにして取り出し,得られた20〜30個の細胞を集合させた。再構成した胚は細胞間接着と細胞極性を正常に形成し,桑実胚になった。再構成した胚では,野生型胚と同様に,転写調節因子 A が胚表面の細胞の核と内部の細胞の細胞質に局在しており,遺伝子 が胚表面の細胞でのみ発現していた。
— 68 —
[問]
F 下線部(ウ)について。個体発生が正常に進行するためには,胚の表面の細胞と内部の細胞の数の比率を適切に制御する必要がある。8細胞期から胚盤胞にいたる過程では,細胞分裂の方向が表面と内部の細胞の数の比率を決める上で重要な役割をはたす。この細胞分裂の方向を介して表面と内部の細胞の数の比率を決めるしくみについて推測し,3行以内で述べよ。以下の用語を全て用いること。
[用語] 細胞分裂,娘細胞
G 実験4〜6の結果の解釈として適切なものを以下の選択肢から全て選べ。
(1) マウス初期胚における転写調節因子 A の正しい細胞内局在には細胞間接着と細胞極性の両方が必要である。
(2) マウス初期胚では最初は転写調節因子 A が細胞質に局在し,発生が進むにつれて転写調節因子 A が核に局在する細胞が現れる。
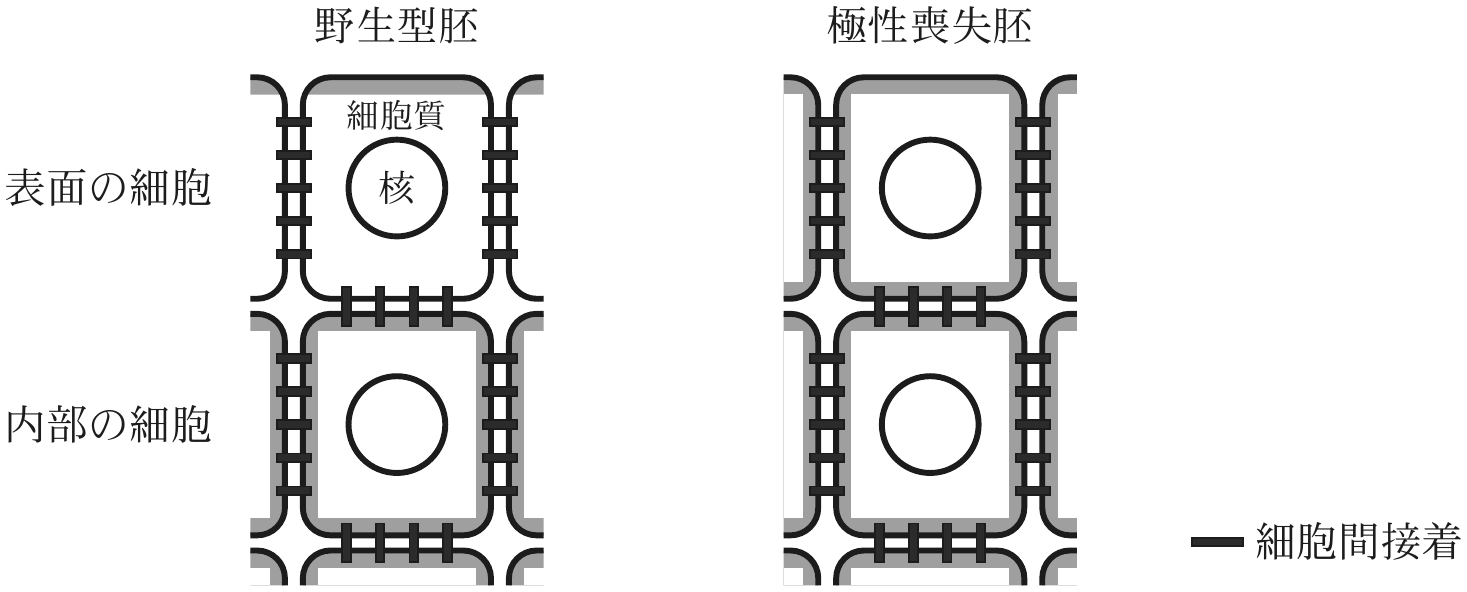
H 転写調節因子 A の細胞内局在を調節するしくみを詳細に調べたところ,遺伝子 を欠失した桑実胚では転写調節因子 A が核に局在すること,野生型もしくは細胞極性を喪失した桑実胚において遺伝子 がコードするタンパク質 C は図3—6のように分布することがわかった。タンパク質 C のはたらきについてさらに解析を進めて,以下の破線で囲った文に記載した知見を得た。実験4〜6の結果もふまえて,1 〜 3 に入る用語として最も適切なものを以下の語群から1つずつ選べ。
胚の表面の細胞では,タンパク質 C の正しい局在に 1 が必要である。胚表面の細胞膜の近傍にあるタンパク質 C は転写調節因子 A に作用できない。胚の内部の細胞では,タンパク質 C が 2 により 3 されることで,転写調節因子 A の核への移動が阻害される。
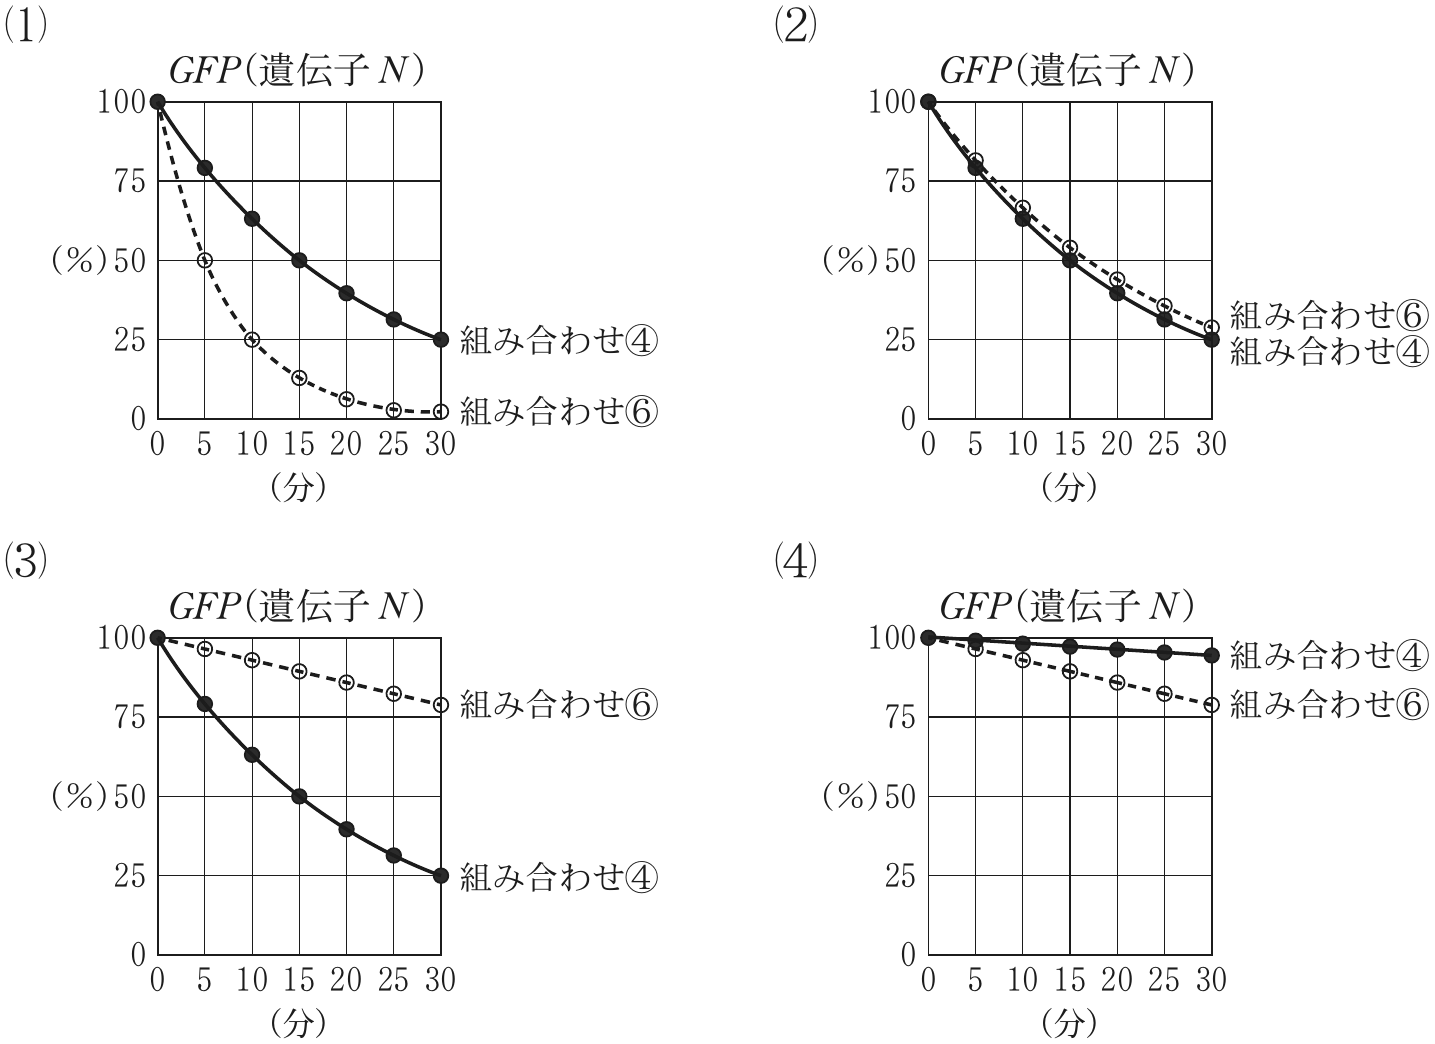
飢餓条件では、表1—3で④も⑥も++になり、D 配列があってもなくても量が同じ区分になる。記号は量のおおまかな区分なので、ぴったり同じ量とまでは言えないが、富栄養では D 配列で「−」まで下がっていたことと比べると、飢餓では D 配列による下がり方が見られない。作る速さは同じ転写誘導配列なので同じ、それで量が下がらないなら、飢餓では D 配列による速い分解が起きていないと考えられる。
すると④の減り方は、D 配列の無い⑥と同じになるはず。⑥は D 配列の仕掛けと関係なく、富栄養のときと同じ約 15 分で半分になる減り方をする。
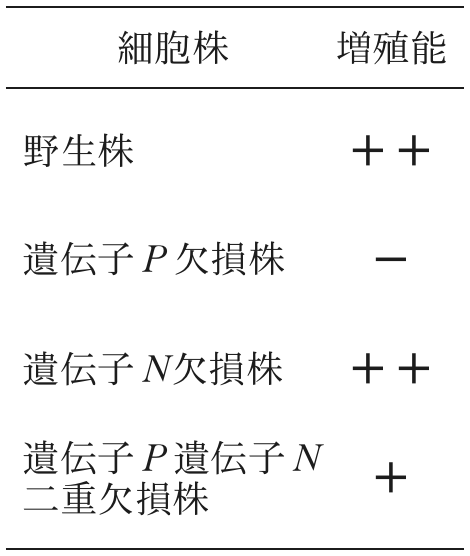
P が無いと、富栄養でも N の mRNA が壊されずにたまる。二重欠損株では N そのものが無いので、P が無くてもたまるものが無い。P を無くしたせいで増えなくなったのは、N が出てきてしまったからと考えられる。遺伝子 は、減数分裂期の遺伝子群を進めるタンパク質 S によって飢餓で誘導される遺伝子なので、富栄養で出ると体細胞分裂のじゃまになると考えられる。
つまり遺伝子 の役割は、富栄養条件で遺伝子 の mRNA を D 配列を通して壊し、N の発現を抑えて、体細胞分裂を続けられるようにすること。
二重欠損株が野生株(++)より弱い(+)のは、P に N を抑える以外の役目もあることを示しているが、2行程度の答えでは P 欠損株と二重欠損株の違いの理由を中心に書けばよい。
目印になるのは転写調節因子 A の居場所。表面の細胞では A が核に入り、栄養外胚葉の遺伝子 をはたらかせる。内部の細胞では A は細胞質にとどまる。実験4〜6は、この居場所を決めているのが何かを、細胞極性(細胞の表と裏の向き)と細胞間接着を1つずつこわして調べている。「何をこわすと、どの細胞の A が動くか」を表にして読むとよい。
(1) 実験4で細胞極性だけをこわすと、表面の細胞の A が細胞質に移った(接着はそのまま)。実験5で細胞間接着だけを弱めると、内部の細胞の A も核に入った(極性はそのまま)。どちらか一方が欠けても正しい居場所にならないので、両方が必要と言える。
(2) 実験4〜6は、どれも桑実胚の時点の観察で、時間を追って居場所の変化を見た実験は無い。だから「最初は細胞質で、あとから核に入る細胞が現れる」という時間の変化は、この実験からは言えない。(実験5からは、接着が弱い早い時期はむしろ A が核にあるかもしれない、とも考えられるが、それも観察されたわけではない。)
(3) 実験6では、いくつもの胚から取り出した8細胞期の細胞をばらばらに混ぜて集めた。どの細胞が表面に来るかは偶然なのに、できた胚では表面に来た細胞で A が核、内部に来た細胞で細胞質になった。もし8細胞期までに運命が決まっていて変えられないなら、場所と合わない細胞がたくさん出るはず(デモで表面12・内部6 という仮の数にすると、でたらめに並べたとき場所と合わない細胞は 、約4割。数は仮のもので実験から読めるものではないが、かなりの数が合わなくなることは変わらない)。そうならなかったので、位置に応じて運命を書きかえられる。
答え(1),(3)
H
まずタンパク質 C のはたらく向きを決める。遺伝子 を欠失すると A は核に行く。つまり C は A が核に入るのを止める側。止める C がどの細胞でどれだけはたらくかで、A の居場所が決まる。
空欄1:図3—6で、野生型の表面の細胞では C は胚の外側の膜の近くだけにあり、極性喪失胚では膜全体(内部の細胞と同じ)に広がる。表面の細胞で C を外側に集めているのは細胞極性。文の続きにあるとおり、外側に集められた C は A に作用できないので、表面の細胞では A が核に入れる。
空欄2と3:内部の細胞では、C が A を止めている。実験5で細胞間接着を弱めると、内部の細胞でも A が核に入った。接着が無いと C が止められなくなるのだから、接着が C をはたらく状態にしていると読める。もし C が「不活性化」や「分解」されて A が止まるのなら、C を無くしたときに A が核に入れなくなるはずで、遺伝子 欠失の結果と逆になる。
極性喪失胚で表面の細胞の A が細胞質に移ったことも、この組み合わせで説明できる。極性が無いと C が膜全体に広がって接着のある部分にも来るので、内部の細胞と同じように A を止める。デモでは、空欄の27通りの組み合わせを全部模型にして、9つの観察が全部合うのは1通りだけであることを確かめている。