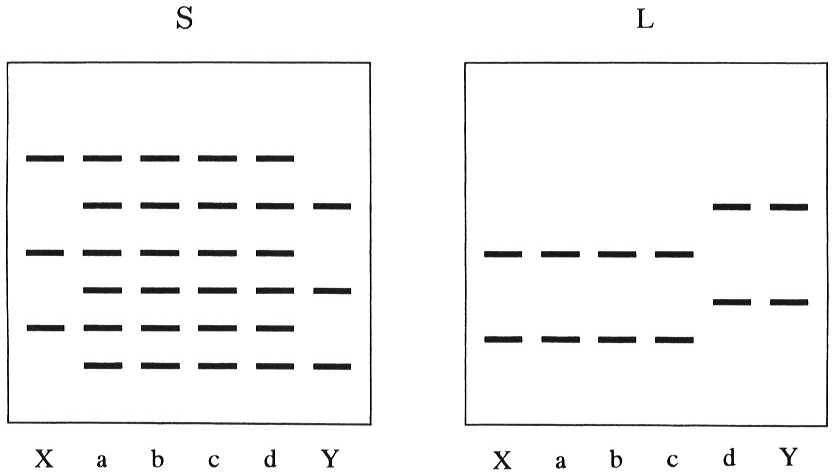
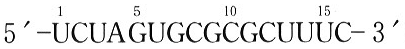2種の植物 X と Y の葉からプロトプラストを得て混合し,ポリエチレングリコール溶液で処理すると2種類の細胞の内容物が混じり合う 3 が起こり,雑種細胞が生じる。これらの細胞も分裂増殖して,植物体に再分化することがある。X と Y の雑種細胞から分化した体細胞雑種について,光合成に関わるルビスコ(RuBisCO)タンパク質を調べた。ラン藻類から維管束植物にいたるまで,このタンパク質は分子量の異なる S と L の2種類のポリペプチドからなり,X や Y のような植物細胞では,L の遺伝子は葉緑体に,S の遺伝子は核にあることがわかっている。また,S と L のポリペプチドは種によってそのアミノ酸組成が異なっている。ルビスコ S と L のポリペプチドは,ある種の電気泳動法(電気的性質によって高分子を分ける方法)によりさらに分離され,電気的性質の異なるポリペプチドを示すバンド(S については3本,L については2本)が,X,Y の種によって特徴的な位置に検出された。X,Y および両者の体細胞雑種植物4系統 a〜d について S と L のポリペプチドを電気泳動して検出した結果は図1のようになった。
文2でも述べたように,ルビスコタンパク質は分子量の異なる2種類のポリペプチド S と L が組み合わさってできたタンパク質である。核 DNA に存在するポリペプチド S の遺伝子の伝令 RNA は,細胞質基質で翻訳が行なわれる。一方,葉緑体 DNA に存在する L の遺伝子の転写と翻訳は,ともにストロマで行なわれる。
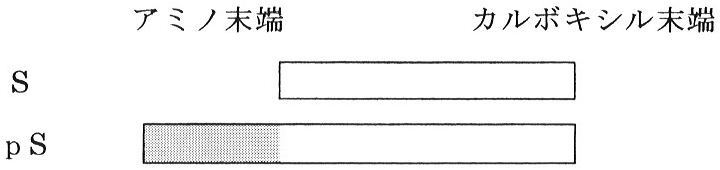
タンパク質合成に必要な種々の成分を含む反応液に,エンドウの S の遺伝子から転写された伝令 RNA を加えて,試験管内でタンパク質合成を行なわせることができた。合成されたポリペプチドを調べると,図2に示すようにアミノ末端側に延長部分をもつ,S よりも長いポリペプチドであった。この延長部分を「延長ペプチド」と呼ぶことにする。伝令 RNA の塩基配列から推定されるアミノ酸配列も,S のアミノ末端側に「延長ペプチド」をもった,S よりも長いポリペプチドであることを示していた。この S より長いポリペプチドを以後 pS と呼ぶ。葉緑体のストロマには S は存在するが,pS は存在しない。
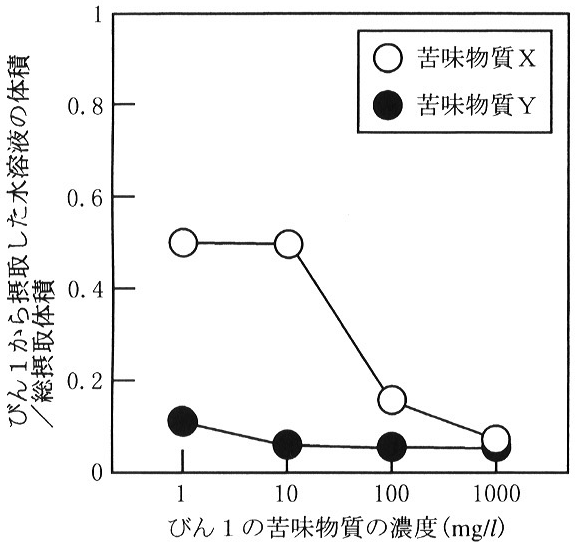
実験1 A系統のマウスは甘味,苦味をともに受容できること,甘味を好み苦味を忌避することが知られている。またここで用いる濃度の範囲では,味の嗜好性は変化しない。A系統のマウス10匹について苦味物質 X,苦味物質 Y に対する応答を検討した。まず,味物質の水溶液を吸い口のついたびん1に,蒸留水をびん2に入れ,この2本のびんをマウスの飼育かごの別々の場所に配置した。この飼育かごの中でマウスを単独で48時間飼育し,マウスが各々のびんから摂取した水溶液の体積を測定した。びんの位置を交換した後にさらに48時間飼育し,摂取した水溶液の体積を測定して,結果が同様であることを確認した。10匹のマウスについて得られた実験結果の平均値を図3に示す。この際,「びん1から摂取した水溶液の体積」を「びん1とびん2から摂取した水溶液の合計体積(総摂取体積)」で除した値を算出し,これを図示した。
PDFの 31 枚目
実験2 B系統のマウス,C系統のマウスは,ともに苦味物質 X をまったく受容できない。A系統とB系統,A系統とC系統,B系統とC系統という3通りの組み合わせで両者を交配させて誕生した マウス(それぞれ ,, とする)は,すべてA系統のマウスと同様に苦味物質 X に応答した。次にこの マウスどうしを交配させた。 どうし,あるいは どうしの交配では,「苦味物質 X に応答する個体数」と「苦味物質 X に応答しない個体数」の比は3:1であり,性差は認められなかった。
図3 A系統マウスの苦味物質に対する応答(実験1)
PDFの 32 枚目
実験3 ヒトですでに知られている苦味の受容にかかわるタンパク質(以後「苦味受容体」と呼ぶ)の遺伝子の塩基配列を参考にして,マウスの苦味受容体の候補遺伝子 P を得た。この遺伝子の伝令 RNA から推定されるアミノ酸配列を系統間で比較したところ,A系統とB系統のマウス間では3箇所が異なっていた。C系統マウスの遺伝子 P の塩基配列は,A系統のものとまったく同一であった。
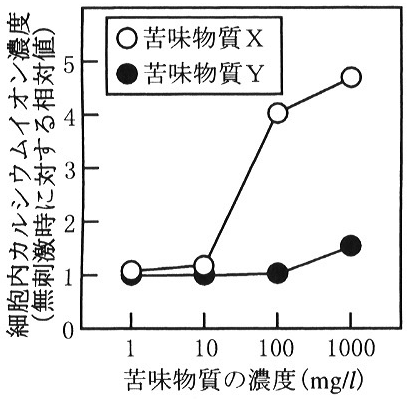
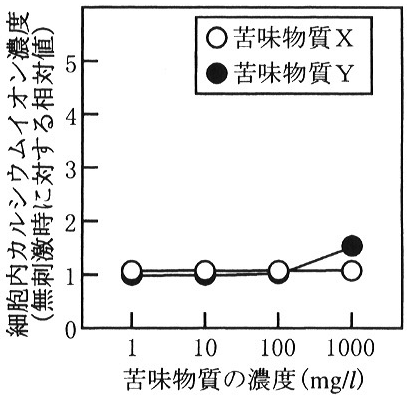
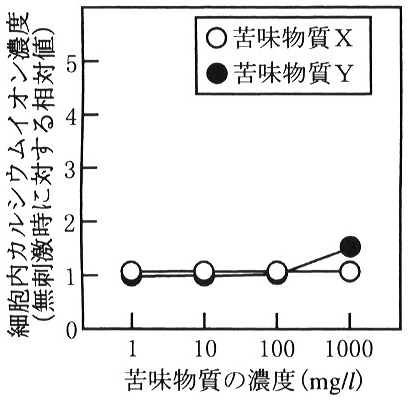
ヒトの苦味受容体の遺伝子については,これを味細胞とは無関係の培養細胞に導入して形質転換することにより,細胞が苦味物質に応答できるようになることが知られている。すなわち,この形質転換の結果,苦味受容体は細胞表面に出現する。またこの細胞は,味細胞と同様に苦味物質 X に応答し,その細胞内カルシウムイオン濃度が上昇する。この変化は遺伝子導入をしなかった細胞では観察されない。A系統とB系統のマウスに由来する遺伝子 P をそれぞれこの培養細胞に導入すると,この遺伝子産物は,ともに同様の密度で細胞表面に出現した。これらの細胞及び遺伝子導入をしなかった細胞に苦味物質 X,もしくは苦味物質 Y を与えて細胞内カルシウムイオン濃度を測定した結果を,図4〜6に示す。
実験4 遺伝子 P の遺伝子断片に蛍光色素を結合させた後,この遺伝子断片を染色体上の相補的な塩基配列の部分に特異的に結合させることにより,遺伝子 P が染色体のどこに位置するかを蛍光によって視覚的に知ることができる。
あらかじめ病原菌に由来するタンパク質 K で免疫したA系統のマウスの脾臓細胞から T リンパ球とマクロファージ(大食細胞)を分け取り,両者を混合して培地中に同じタンパク質 K を加えて培養したところ,T リンパ球が増殖した。タンパク質 K を加えない場合には T リンパ球は増殖しなかった。T リンパ球が増殖を開始した後にある薬剤を加え,分裂中期に見られる染色体の配置と分配に必要な構造の形成を阻害した。この薬剤で処理すると,多くの T リンパ球の細胞内で染色体が観察されるようになった。上述の方法を用い,遺伝子 P は第6染色体の端に近い部分に存在することがわかった。
PDFの 33 枚目
実験5 ゲノム解析の結果,苦味を受容できないC系統のマウスでは,第6染色体上の遺伝子 Q の領域で,対立遺伝子の双方に欠失が認められた。この欠失はA系統とB系統のマウスでは見られなかった。C系統のマウスが苦味物質 X を受容できないのは,この遺伝子 Q の欠失が原因であった。
図4 A系統マウスに由来する遺伝子 P で形質転換した細胞の苦味物質に対する応答(実験3)図5 B系統マウスに由来する遺伝子 P で形質転換した細胞の苦味物質に対する応答(実験3)図6 遺伝子を導入していない細胞の苦味物質に対する応答(実験3)
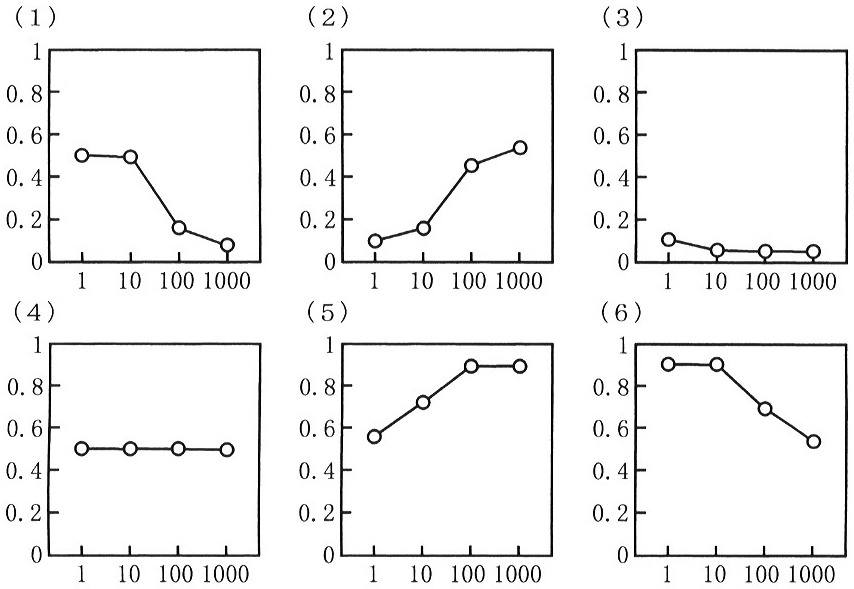
(b) びん1に甘味物質 Z,びん2に蒸留水を入れて実験1と同様の方法を用いると,甘味物質 Z に対するA系統のマウスの応答はどのようになるか。図7に示す(1)〜(6)の中から最も適当な結果を選び,番号で答えよ。
(c) びん1に苦味物質 X を入れて苦味に対する応答の再実験を行う際,あやまってびん2に蒸留水ではなく,苦味物質 Y の の濃度の水溶液を入れてしまった。このとき,苦味物質 X に対するA系統のマウスの応答はどのようになると予想されるか。図7に示す(1)〜(6)の中から最も適当な結果を選び,番号で答えよ。
C 実験2から実験5の内容をふまえ,次の問に答えよ。
(a) 下線部(イ)について。B系統とC系統のマウスを交配させて誕生した マウスが,苦味物質 X に応答できるようになったのはなぜか。本文中からわかることをもとに2行程度で説明せよ。
(b) 遺伝子 P と遺伝子 Q の組換え価が25%であると仮定した場合, どうしの交配で誕生する マウスにおいて,「苦味物質 X に応答する個体数」と「苦味物質 X に応答しない個体数」の比率の期待値はいくつになるか。
D 実験3について。この結果から,苦味受容体の候補遺伝子 P は苦味物質 X の受容体であるが,苦味物質 Y の受容体ではないと考えた。図4〜6に示した苦味物質に対する応答の違いに着目し,このように判断する根拠を2点あげ,箇条書きでそれぞれ1〜2行程度で述べよ。
PDFの 35 枚目
E A系統のマウスを用いて遺伝子 P を欠失したマウスを作製し,P の遺伝子産物が苦味物質 X の受容体であることを証明した。遺伝子 P を欠失したA系統のマウスを用いて,実験1と同様の方法で苦味物質 X,苦味物質 Y に対する応答を調べた。どのような結果が予想されるか。図7に示す(1)〜(6)の中から最も適当な結果を選び,X—(7),Y—(8)のように答えよ。
(a) T リンパ球は,多数の細胞を取得することができ,また種々の処理によって増殖させることが容易であるため,このような実験の材料に使われることが多い。T リンパ球は遺伝子 P の伝令 RNA を含まず,また P の遺伝子産物を有していない。それにもかかわらず,この実験の材料に T リンパ球を用いてもかまわない理由として考えられることを,1行で述べよ。
(b) 下線部(ウ)について。この培養操作におけるマクロファージの役割は何か。1行で述べよ。
(c) 下線部(エ)について。この構造の名称を記せ。
(d) 下線部(オ)について。この薬剤処理によって多くの T リンパ球の細胞内で染色体が観察されるようになった理由として考えられることを,1行で述べよ。
PDFの 37 枚目
第3問
次の文1〜文3を読み,ⅠとⅡの各問に答えよ。
〔文1〕
ワトソンとクリックにより DNA の二重らせんモデルが提唱され,すでに50年が経過した。20世紀の中頃から21世紀初頭にかけてのこの50年間において,人類は生命現象に伴うさまざまな神秘を分子レベルで解き明かし, 対の塩基からなるヒトの巨大なゲノム DNA の化学構造すら明らかにした。DNA に書き込まれた遺伝情報(遺伝子の塩基配列)は,RNA の塩基配列に変換され,さらにタンパク質(アミノ酸配列)に変えられ,生じたタンパク質によりさまざまな生体反応が実行・制御される。このような遺伝情報の流れをセントラルドグマという。したがって,生命現象の最も基本的な仕組みは,設計図としての DNA 情報とそれを具現化するためのセントラルドグマであり,生命体は非常に複雑な化学反応の“るつぼ”といえよう。
なお,水素結合は熱に弱いので,二本鎖 DNA の水溶液を高温にすると,2本の分子は解離する。逆に,解離した DNA 分子の水溶液をゆっくりと冷やすと,再び塩基対が形成されて二本鎖 DNA が再生される。
PDFの 38 枚目
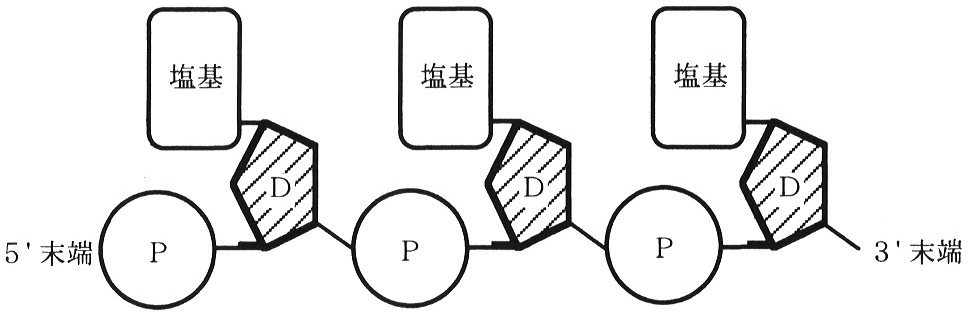
図8 DNA分子の構造の模式図
PDFの 39 枚目
〔文2〕
細胞の増殖に際し,DNA は複製され,遺伝情報は親細胞から娘細胞へ正しく伝えられる。この DNA 複製の際にも,セントラルドグマは機能するに違いない。しかし,もしそうであるとすると(DNA が複製されるためにはさまざまなタンパク質が必要であることを考えれば),生命の誕生の際に DNA がタンパク質より先にできたのか,それともタンパク質が DNA より先にできたのかという基本的な疑問に突き当たってしまう。実際,この問題は分子生物学者を長い間悩ませてきた。問題の解決の糸口は,酵素に類似した働きが RNA にもあるという発見により与えられた。一方で,RNA が遺伝子として働くことは,RNA でできたゲノムをもつウイルス(RNA ウイルス)の存在を通じて,それ以前から知られていた。これらの知見をもとに,現在の DNA/セントラルドグマの時代(DNA ワールド)の以前に,RNA が遺伝子やタンパク質の役割をも果たした時代(RNA ワールド)があったという有力な考えが提唱されている。RNA ワールドが DNA ワールドに移行するには,RNA を DNA に変換する分子機構が必要であると考えられる。
ヒトにエイズを引き起こす HIV や白血病を引き起こす HTLV-Ⅰは,レトロウイルスと呼ばれるウイルスである。レトロウイルスの研究から,RNA を DNA に変換する分子機構の存在を支持する実験結果が得られた。
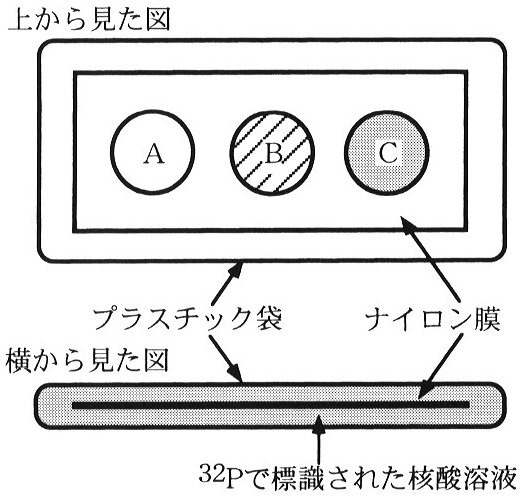
実験1 精製されたあるレトロウイルスの入った溶液に,ある薬剤 X を加えると,レトロウイルスの外被の膜が溶けて,溶液中の物質がレトロウイルスの中に侵入できるようになる。薬剤 X で処理したレトロウイルス液に,放射性同位体である で標識された活性型ヌクレオチドを含む適当な緩衝液を加えて37 ℃ で1時間保温した。1 を成分として含む活性型ヌクレオチドを用いた場合は, で標識された核酸が合成されたが,7 を成分として含む活性型ヌクレオチドを用いた場合は,核酸の合成は起こらなかった。薬剤 X で処理したレトロウイルス液に,RNA 分解酵素を加えて37 ℃ で保温したのちに,1 を成分として含む活性型ヌクレオチドを加えて同様の反応を行なった場合では,核酸の合成は起こらなかった。
DNA の塩基配列はさまざまな理由で変化する。ここでは,生殖細胞で起こった親から子へ遺伝可能な突然変異だけを考察することとする。進化の過程で DNA の塩基配列は変化するので,突然変異が進化と密接に関わっていることは確かであろう。しかし,進化は突然変異だけでは説明できない。生じた突然変異の集団中への固定が重要である。通常,同一の突然変異が種を構成している他の個体の当該遺伝子に起こることは,種を構成する集団の数がよほど大きくない限り考えにくい。したがって,進化に際しては,何らかの過程で,集団を構成するすべての個体の当該遺伝子が,すべて突然変異型に置き換わる機構が存在しなくてはならない。突然変異の出現とその固定が何度も繰り返され,現在見られる種固有の DNA 塩基配列上の大きな変化が作り出されたと考えられる。
〔問〕
Ⅰ 文1,文2について,次の小問に答えよ。
A 空欄1〜7に最も適当な語句を入れよ。解答は,1.タンパク質,2.アミノ酸のように記せ。
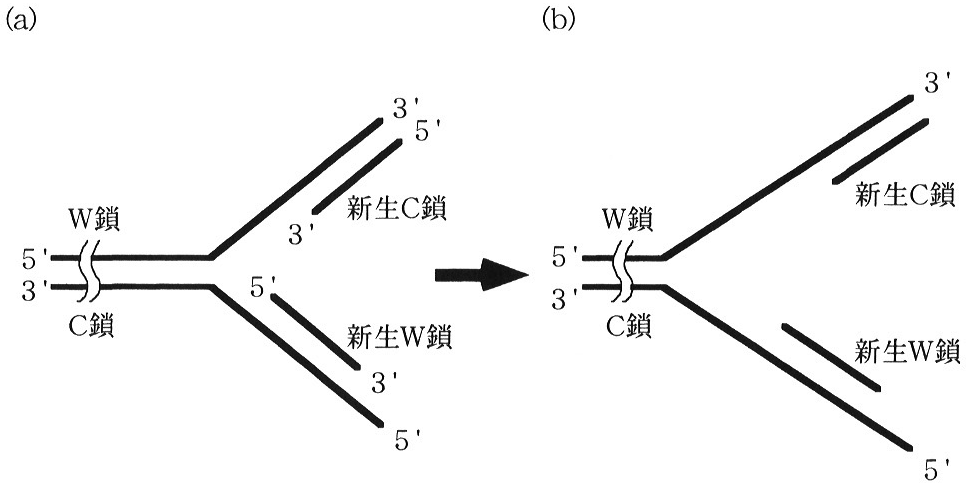
B 下線部(ア)について。DNA の複製に際し,新しいヌクレオチドは,常に合成されている DNA 鎖の3′末端にしか付加されないことが知られている(図10参照)。図10(b)は図10(a)よりも複製が少し進んだときの未完成の模式図である。
PDFの 42 枚目
(a) 6行程度のスペースを使って図10(b)を写し取り,図中の新生 W 鎖と新生 C 鎖の合成がどのように進行するかを示せ。新しく合成された部分を点線で表し,合成の方向がわかるように矢頭をつけること。
(b) 得られた図を参考にして,W 鎖と C 鎖のそれぞれに相補的な鎖(DNA 分子)の合成における相違点を3行程度で述べよ。
図10 複製途中のDNA
C 実験1と実験2は,レトロウイルス粒子に含まれる「ある酵素」の性質を調べたものである。この酵素の性質として,実験1と実験2からわかることを以下の(1)〜(8)からすべて選び,番号で答えよ。
(1) DNA の塩基配列を写し取って DNA を合成する活性がある。
(2) DNA の塩基配列を写し取って RNA を合成する活性がある。
(3) RNA の塩基配列を写し取って DNA を合成する活性がある。
(4) RNA の塩基配列を写し取って RNA を合成する活性がある。
(5) DNA の塩基配列を写し取って DNA を合成する活性はない。
(6) DNA の塩基配列を写し取って RNA を合成する活性はない。
(7) RNA の塩基配列を写し取って DNA を合成する活性はない。
(8) RNA の塩基配列を写し取って RNA を合成する活性はない。
PDFの 43 枚目
D 下線部(イ)について。なぜこのような結果になったのか。ポリオウイルス RNA の塩基配列がレトロウイルス RNA の塩基配列と著しく異なることを踏まえて,3行程度で説明せよ。
E ヒトのゲノム DNA の塩基配列を調べてみると,遺伝子の数はおよそ3万個であった(ただし,後述するレトロウイルスや広義のその仲間の遺伝子を除く)。一方,レトロウイルスや広義のその仲間の DNA が,全ゲノム DNA の50 %程度を占めていることがわかった。
B DNA と同様に RNA にも方向性がある。アミノ酸配列への変換は,5′から3′の方向に行われる。5′-UCUAGUGCGCGCUUUC-3′は,遺伝子 X の伝令 RNA のヌクレオチド配列の一部で,この中にはロイシン—バリン—アルギニン—アラニン—フェニルアラニンというペプチドに対応するヌクレオチド配列が含まれている。左から10番目の C を A,G,U のいずれに置き換えても,アミノ酸配列に変化は見られなかったが,左から6番目の U を C に置き換えると,バリンがアラニンに,左から11番目の G を C に置き換えると,アラニンがプロリンに変化した。
C 下線部(エ)について。突然変異の固定にはさまざまな要因が考えられる。ここで考える突然変異は,淘汰に特に有利なものではないとすると,どのような機構が考えられるか。1〜2行で述べよ。
D 種を構成する個体の生息地域が,ある時を境に物理的に隔離されると,その境界を越えて突然変異が伝播する速度は著しく小さくなり,生息地域に特徴的な DNA 塩基配列が生じる。このような生息地域依存的な DNA 塩基配列の違いは,それが直接病気と関わらなくても,遺伝病の探索や病気にかかりやすい体質の研究に重要である。なぜか。考えを2〜3行で述べよ。
(a):問題文の前提は、葉緑体の祖先がラン藻のような光合成をする生物で、それが宿主の細胞に入りこんで共生したこと。そうだとすれば、ルビスコの S も L も、もとは祖先の生物自身の DNA にあったはず。ところが今は S の遺伝子だけが核にある。つまり進化の間に、S の遺伝子が葉緑体の DNA から宿主の核の DNA へ移ったと考えられる。
遺伝子 の産物が X の受容体なら、 を欠失したマウスは X を感じない。どの濃さでもびん1 と水を区別できず、比は 0.5 のまま。(4)。
Y の受容体は ではない(Ⅱ D)ので、Y は今までどおり感じて避ける。図3の Y と同じ形の (3)。
答えX—(4),Y—(3)
Ⅱ F
(a):遺伝子の場所を調べる方法(蛍光をつけた遺伝子の断片を、染色体の相補的な配列にくっつける)は、DNA の塩基配列そのものを見ている。体のどの細胞も同じゲノム DNA を持っているので、遺伝子 がはたらいていない T リンパ球でも、第6染色体の同じ場所に の配列はある。はたらいているか(mRNA やタンパク質があるか)は関係ない。
(b):T リンパ球は、抗原そのものではなく、マクロファージなどが取りこんで分解し、細胞の表面に示した抗原を見分けて活性化し、増える。タンパク質 K を加えただけでは増えず、マクロファージが K を提示して初めて増える(抗原提示)。
(a):図10(a) で向きを確かめる。W 鎖は左が 5′、上の腕の先が 3′。新生 C 鎖は W 鎖と対になっていて、その 3′ 末端は分岐点の側にある。C 鎖は左が 3′、下の腕の先が 5′。新生 W 鎖の 5′ 末端が分岐点の側、3′ 末端が遠い側にある。
新しいヌクレオチドは 3′ 末端にしかつかないので、新生 C 鎖は分岐点に向かってのびる。ほどけるのに合わせて、そのまま途切れずに合成できる。
新生 W 鎖は分岐点から離れる向きにしかのびられない。すでにある新生 W 鎖の 5′ 末端と分岐点の間は、あとからほどけた部分で、そこを写すには分岐点の近くから新しく合成を始め、すでにある鎖の 5′ 末端へ向かってのばすしかない。(b) の図には、分岐点の近くから始まり、分岐点から離れる向きに矢頭のついた短い点線を描く。
(a):レトロウイルスは、自分の RNA を逆転写して DNA にし、宿主の染色体に組みこむ。これが卵や精子のもとになる生殖細胞で起これば、組みこまれた DNA は子孫に伝わる。さらに、組みこまれたものが転写されて RNA になり、また逆転写されて別の場所に入りこむ、をくり返すと、ゲノムの中で数が増えていく。長い進化の間にこれが積み重なった、と考える。