生 物
第1問
次の文1から文3を読み,ⅠからⅢの各問に答えよ。
〔文1〕
動物の生殖様式は配偶子の有無により大きく2つに分けることができる。分裂や出芽によって無性生殖を行う動物の例として,ヒドラやプラナリアが挙げられる。その一方では,卵と精子の受精によって新しい個体がつくり出される有性生殖という様式もあり,雌と雄の2つの性が存在する。一部のミミズやヒトデでは両方の様式によって子孫をふやす。
雌と雄の性がどのようにして決まるかには,かなりのバリエーションがある。性染色体による性決定様式には,雄ヘテロ型の XY 型や雌ヘテロ型の ZW 型などがある。前者の例はヒトやニホンメダカであり,後者の例はニワトリである。また,動物によっては性決定がさまざまな外界の要因によって左右されることがある。たとえば,ワニやカメには性決定が発生中の温度に依存するものが知られている。生態系に放出された人工的な化学物質によってホルモンの作用が影響され,性比が偏る事例としてはイボニシなどの貝類が知られている。
〔文2〕
ニホンメダカの発生中の胚に薬剤を投与し,性決定にどのような影響を与えるか調べようと考えた。この実験では性染色体の組み合わせによって決まる遺伝子型としての雌(XX)あるいは雄(XY)と,表現型としての雌(卵巣をもつ)あるいは雄(精巣をもつ)を個体ごとに対応させる必要がある。
ニホンメダカの Y 染色体は,ヒトと異なり,大きさやもっている遺伝子とその配置が X 染色体とほぼ同じである。そのため,染色体のどの部分でも X と Y の間で乗換えがおこる。また,YY の個体も生存可能である。Y 染色体には雄の形質を決める遺伝子 があり,この遺伝子の有無により,Y 染色体と X 染色体が区別される。 の近傍には体の色に関わる2つの遺伝子 と がある。 は赤い体色に, は白色素胞の形成に関わる。 の対立遺伝子 と, の対立遺伝子 は,どちらも劣性であり, では体色は赤くならず, は白色素胞をもたない個体となる。白色素胞は受精後2日で現れ,顕微鏡で観察できるが,赤い体色になるかは受精後1ヶ月たたないと判別できない。 は と の間に位置する。そこでこれらの遺伝子の連鎖について調べた。
表現型を利用してふ化(受精後7日)までに性染色体の組み合わせを知ることができる系統1を作製した。この系統を使い,E または T という薬剤を含む水で,受精卵を成体まで育てた。この処理によって死亡する個体はなく,E を与えると遺伝子型としての雄個体(XY)にも卵巣がつくられ,T を与えると遺伝子型としての雌個体(XX)にも精巣がつくられることがわかった。
〔文3〕
ニホンメダカに近縁な種は東南アジアにも生息する。これらのうちのある種のメダカも性染色体による性決定様式をもつことがわかっていたが,XY 型であるか ZW 型であるかは不明であった。この種でもニホンメダカと同じように処理すると,すべての受精卵が育ち,E によって雌に,T によって雄になることがわかった。したがって,この性質を利用すればこのメダカの性決定様式も実験で明らかにできると考えられる。
実験1 受精卵を E で処理したところ,ふ化したすべての個体が雌になった。これらの複数の雌個体を1匹ずつ隔離して未処理の雄と交配した。それぞれのペア(1対の雌と雄の個体の組み合わせ)から得られた受精卵はすべて生存したので,生まれた個体の性比をペアごとに調べた。
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア),(イ),(エ)について。(ア)ヒドラ,(イ)ヒトデ,(エ)イボニシは図1—1の系統樹の空欄となっている1〜7のどの分類群に含まれるか。また,この3つの分類群の名称を答えよ。解答は「ア—1—〇〇」のように組み合わせて記せ。
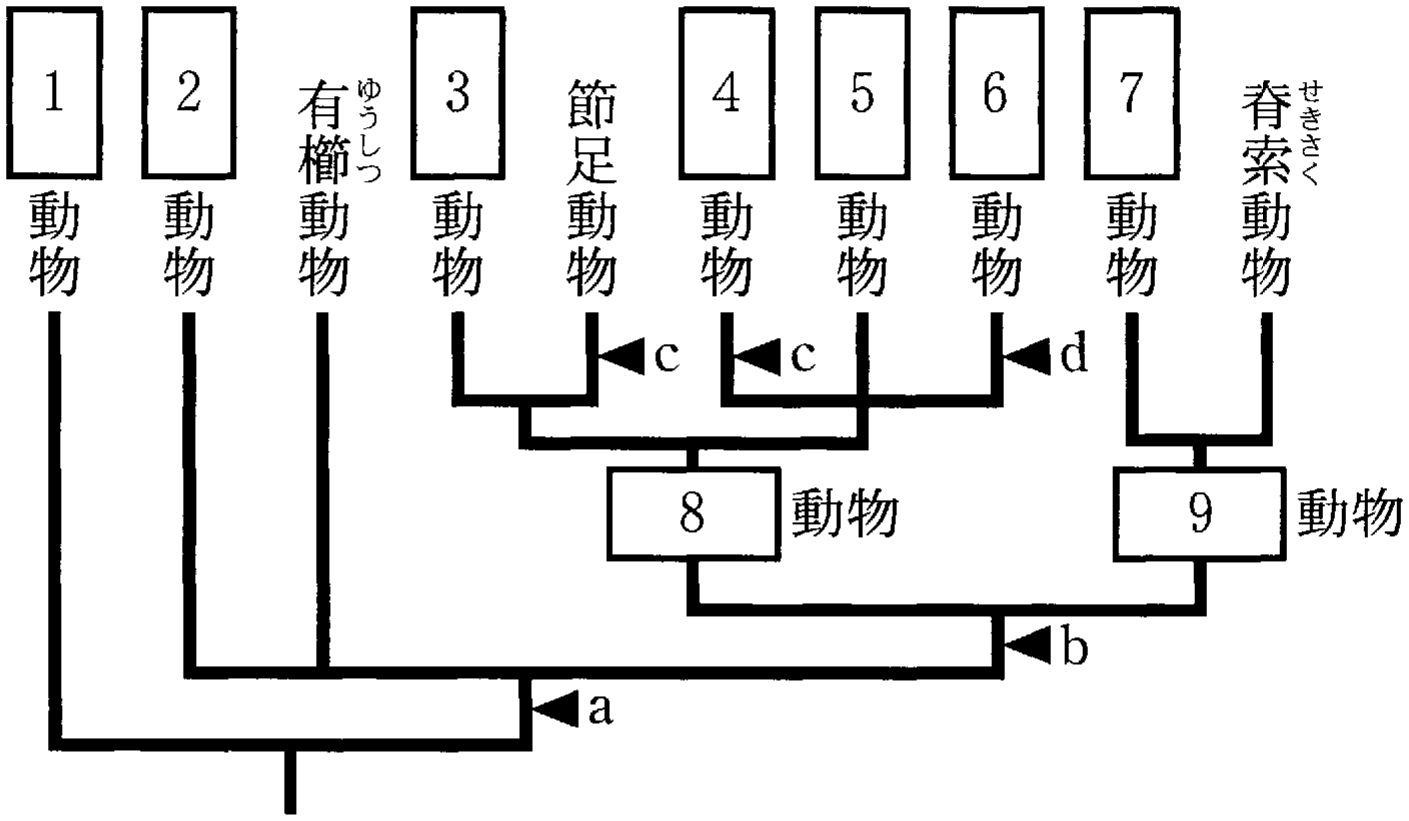
a は胚葉の獲得,b は左右相称の体の獲得,c は体節構造の獲得,d は外套膜の獲得を示す。
B 左右相称の動物は大きく2つに分けられる。図1—1の空欄8と9に当てはまる適切な名称と,9 動物の特徴を1行で述べよ。
C 下線部(ウ)について。ホルモンの中には,ペプチドホルモンとステロイドホルモンがある。これらがどのように細胞内に情報を伝達するか,違いがわかるように2行程度で述べよ。
Ⅱ 文2について,以下の小問に答えよ。
A 性染色体にある遺伝子による遺伝は一般に何とよばれるか。名称を答えよ。また,このような遺伝様式を示す他の事例を1つ,生物の種類とその遺伝する形質を組み合わせて答えよ。
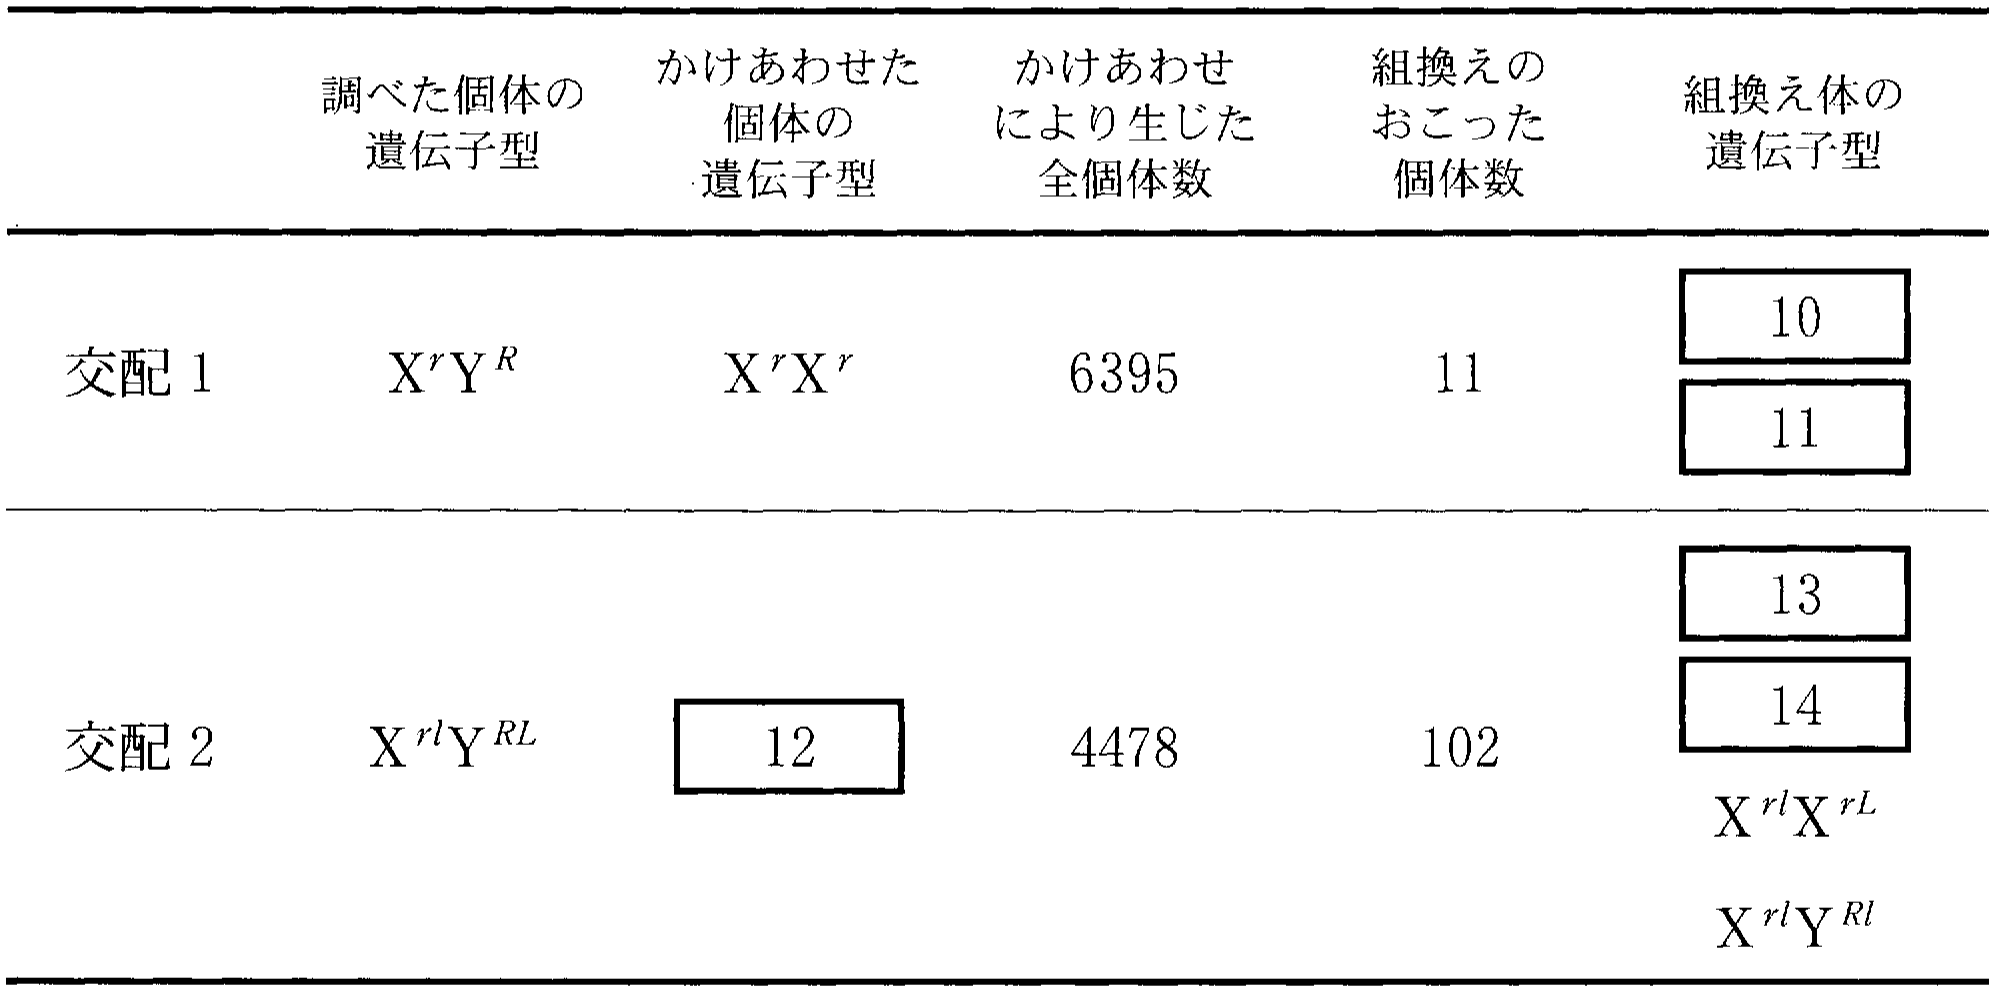
B 下線部(オ)について。表1—1に,,, の間の組換え頻度を検定交雑で調べた結果を示す。遺伝子型は,性染色体ごとに表記している。なお,乗換えは2回以上おこらないこととする。以下の(a)と(b)に答えよ。
(a) 交配1では,どの2つの遺伝子の間の組換えを調べているか。また,その結果生じた組換え体はどのような表現型をもつか。それぞれ答えよ。
(b) 空欄10〜14に当てはまる遺伝子型を,「」のように答えよ。ただし,空欄10と11,13と14に関しては順不同である。
C 下線部(カ)について,以下の(a)と(b)に答えよ。
(a) ふ化する前に,個体の遺伝子型としての性を区別できるためには,系統1の性染色体には少なくともどの遺伝子が必要であり,雌雄はどのような表現型で区別できるか。これについて,X と Y それぞれの染色体の遺伝子型と,雌雄それぞれの表現型を答えよ。
(b) この方法で予測した場合,系統1では,色の表現型と遺伝子型としての性はどのくらいの確率で一致するか。表1—1の結果を用い,計算して求めよ。なお,乗換えは2回以上おこらないこととする。数値は百分率(%)で表し,四捨五入して小数点第1位まで記せ。
Ⅲ 文3について。
実験1で,この種が XY 型あるいは ZW 型の性決定様式をもつと仮定した場合,それぞれどのような結果が期待されるか。以下の考察の空欄15〜18に当てはまる適切な数値を整数で答えよ。なお,ZW 型でも E による処理で表現型としての雌が生じるものとする。
考察:XY 型の場合は,交配したペアの総数の 15 % では生まれた個体の 16 % が雄になり,残りのペアでは生まれた個体の 50 % が雄になる。一方,ZW 型の場合は,ペアの総数の 17 % では生まれた個体の 50 % が雄になり,残りのペアでは生まれた個体の 18 % が雄になる。
第2問
次の文1と文2を読み,ⅠとⅡの各問に答えよ。
〔文1〕
葉の表皮には,気孔と呼ばれる小さな穴が多数存在する。気孔は,葉の内部と外界とを結ぶ気体の通り道として,大きな役割を担っている。環境が変化すると,それに応じて気孔の開きぐあいが変わり,気体の出入りが調節される。
気孔の開閉に関わる環境要因の中でも,とくに重要なものに光がある。一般に気孔は,暗い環境で閉じ,明るい環境で開く。光照射で速やかに誘導される気孔開口は,特定の色素タンパク質による光受容を介する。この色素タンパク質は,光に依存した種子の発芽に関与する色素タンパク質とは種類が異なり,それを反映して,光応答の特徴も,気孔開口と発芽とで大きく異なる。
水分もまた,気孔の開閉を左右する。水分の変化を気孔開閉に結びつける仲介役を果たすのは,アブシシン酸である。水分が不足すると,それが刺激となって植物体内のアブシシン酸濃度が高まり,このアブシシン酸の作用によって気孔が閉じる。
気孔は構造的には1対の孔辺細胞に挟まれた隙間であり,気孔の開閉は孔辺細胞が変形することによる。この変形に先立つ孔辺細胞の生理的変化については,ツユクサなどを材料に用いてさまざまな実験が行われ,概略が明らかにされている。近年では,シロイヌナズナの突然変異体を利用した解析も進んでいる。
実験1 ツユクサの葉から表皮を剥ぎ取り,これを細胞壁分解酵素で処理して,孔辺細胞のプロトプラストを得た。このプロトプラストを,その体積に比べてはるかに量の多い,やや高張の培養液に浮かべ,直径が変化しなくなるまで,暗所でしばらく静置した。その後,プロトプラストに光を照射したところ,膨らんで直径が増大した。
実験2 アブシシン酸に応答した気孔閉口が起きない突然変異体(アブシシン酸不応変異体)を探し出す目的で,突然変異を誘発したシロイヌナズナを多数育て,アブシシン酸を投与した。アブシシン酸投与後に,サーモグラフィー(物体の表面温度を測定・画像化する装置)により葉の温度を調べ,その結果に基づいて,アブシシン酸不応変異体の候補株を選抜した。
〔文2〕
葉の発達と成長にともない,原表皮細胞(未分化で運命の決まっていない表皮系の細胞)の中から,孔辺細胞のもととなる細胞(ここでは便宜的に孔辺前駆細胞と呼ぶ)に分化するものが現れ,この孔辺前駆細胞から最終的に1対の孔辺細胞が形成されて,気孔ができあがる。こうした孔辺前駆細胞および孔辺細胞の分化過程の制御により,気孔の分布パターンと密度は適正に調節されている。
シロイヌナズナでは,気孔の密度が増大した突然変異体がいくつか知られている。そのうちの一つ では,孔辺前駆細胞で発現し細胞外へ分泌されるタンパク質 X がつくられなくなっている。また別の変異体 では,原表皮細胞で発現する細胞膜タンパク質 Y がつくられなくなっている。さらに Y が X と特異的に結合し得ることもわかっている。これらの結果は,X と Y が一緒にはたらいて気孔の形成を制御していることを示している。
突然変異など何らかの原因で気孔の密度が大きく変化すると,植物にさまざまな影響が現れる。なかでも植物の成長にとって重要なのは,光合成が受ける影響である。光合成速度は環境条件に依存するが,特定の環境下では気孔の密度の影響をとくに強く受ける。
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。レタスなどの光発芽種子の発芽に見られる光応答の特徴を,光の波長(色)との関係から1行程度で説明せよ。
B 下線部(イ)について。次の文章は,実験1の結果からの考察を述べたものである。空欄1〜3に適切な語句を入れよ。
考察:光照射により孔辺細胞のプロトプラストが膨らんだのは,水が流入したことを示している。一般に植物細胞への水の流入が起きるのは,1 と細胞外の 2 の和より細胞内の 2 が 3 なったときである。この実験の場合,細胞外の 2 は一定とみなせ,細胞壁がないプロトプラストでは 1 が無視できるので,水の流入の原因は細胞内の 2 が 3 なることであると考えられる。
C 実験2について。アブシシン酸不応変異体を見つけるには,野生型と比べて葉の温度がどうなっている個体を選び出したらよいか,答えよ。また,その理由を2行程度で述べよ。
D 実験2で単離されたアブシシン酸不応変異体が,気孔閉口だけでなく,全てのアブシシン酸応答を示さないとしたら,どのような表現型が考えられるか。気孔閉口の異常とは直接の関係がない表現型を1つ答えよ。
Ⅱ 文2について,以下の小問に答えよ。
A 下線部(ウ)について,以下の(a)〜(c)に答えよ。
(a) 気孔の形成の制御における X と Y の役割はどのようなものと考えられるか。次の(1)〜(4)から最も適切なものを選んで答えよ。
(1) 原表皮細胞が孔辺前駆細胞に分化するのを促す。
(2) 原表皮細胞が孔辺前駆細胞に分化するのを妨げる。
(3) 孔辺前駆細胞から孔辺細胞が形成されるのを促す。
(4) 孔辺前駆細胞から孔辺細胞が形成されるのを妨げる。
(b) Y は細胞外の X の有無を感知して,その信号を細胞内に伝える役割を果たしていると推定される。次の2つの方式(1)と(2)のうち,X–Y の信号伝達の説明として不適切なものはどちらか,答えよ。また,その理由を2行程度で述べよ。
(1) X がないとき,Y は活性をもたない。X を受け取ると,Y は活性化し,細胞内で反応を引き起こす。この反応の開始が,X 感知の信号となる。
(2) X がないとき,Y は活性をもち,細胞内で一定の反応を引き起こしている。X を受け取ると,Y は不活性化し,反応が止まる。この反応の停止が,X 感知の信号となる。
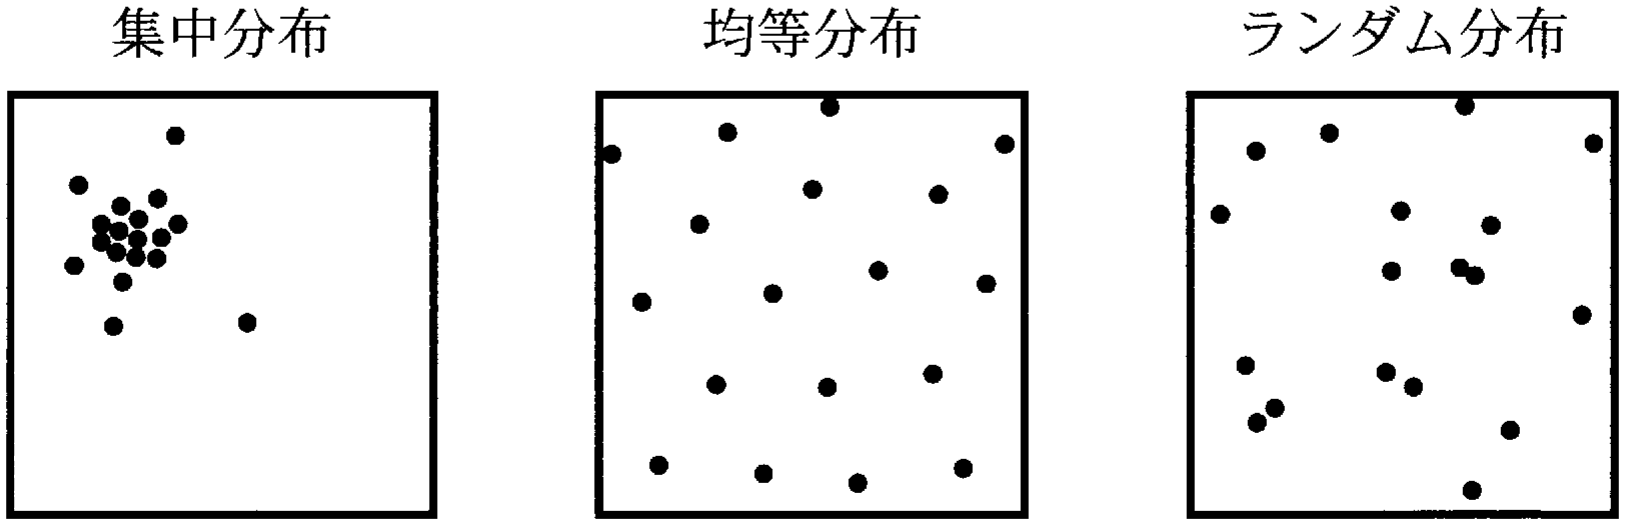
(c) 変異体 と では,野生型と比べて,気孔の密度だけでなく,分布パターンも変化していた。どのような傾向の変化か。X と Y のはたらき方から考え,次の(1)〜(6)から最も適切なものを選んで答えよ。なお,集中分布は特定の部位に密集して分布すること,均等分布はほぼ等間隔で一様に分布すること,ランダム分布は単純な確率に従ってランダムに分布することである(図2—1)。
(1) 集中分布に近いパターンから,均等分布に近いパターンへの変化。
(2) 集中分布に近いパターンから,ランダム分布に近いパターンへの変化。
(3) 均等分布に近いパターンから,集中分布に近いパターンへの変化。
(4) 均等分布に近いパターンから,ランダム分布に近いパターンへの変化。
(5) ランダム分布に近いパターンから,均等分布に近いパターンへの変化。
(6) ランダム分布に近いパターンから,集中分布に近いパターンへの変化。
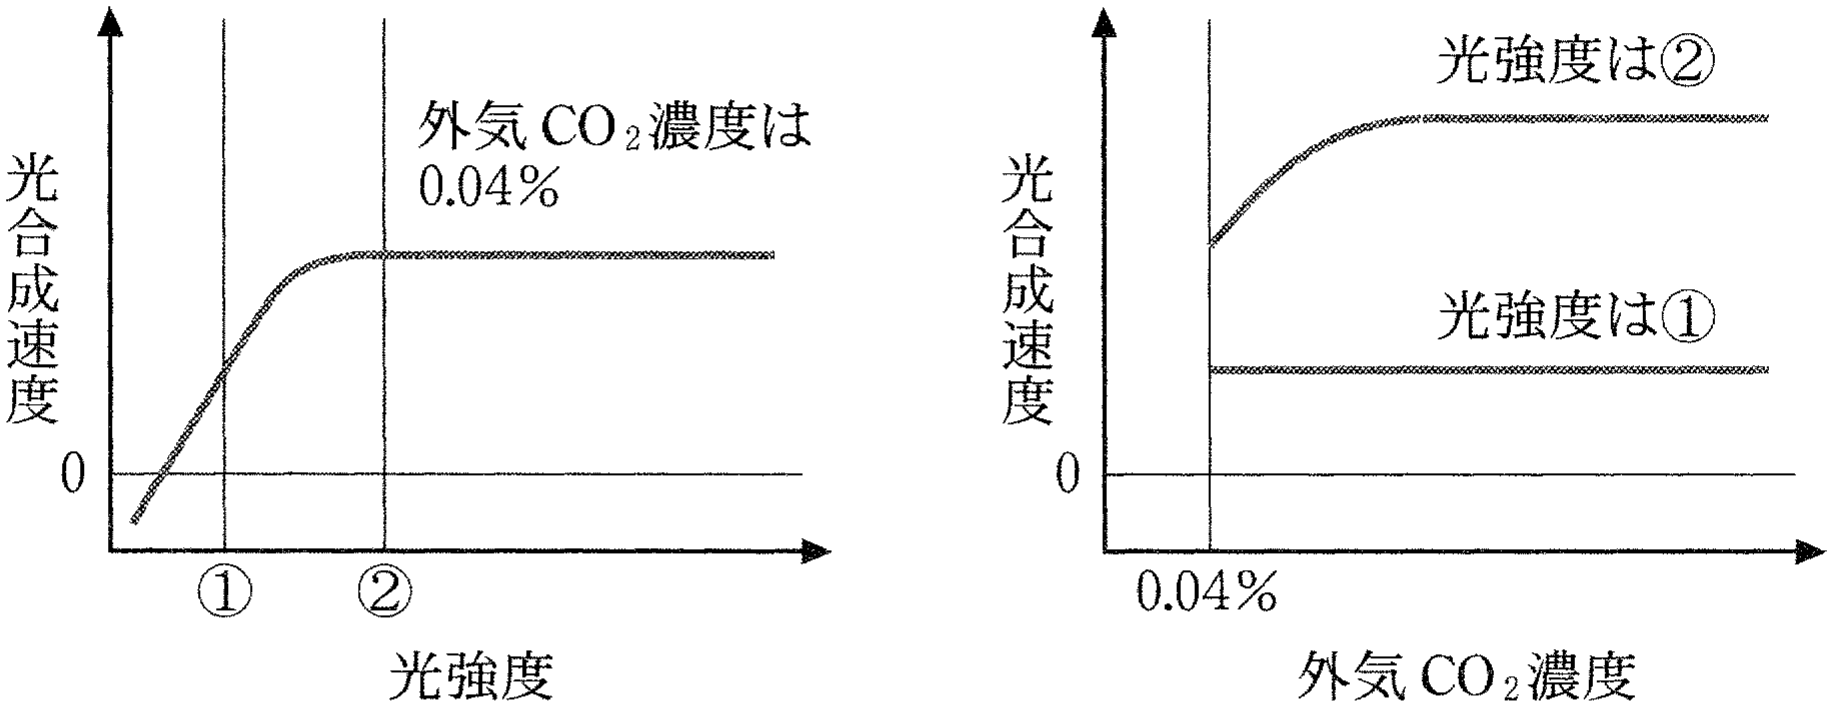
B 下線部(エ)について。野生型のシロイヌナズナにおける,見かけの光合成速度(葉面積当たりの 吸収速度,以下では単に光合成速度という)と光強度および外気の 濃度との関係を,葉の温度を一定に保てる装置を用いて,同一の温度条件で調べたところ,図2—2に示すような曲線が得られた。外気の 濃度が 0.04 % で光強度が①のときと②のときのそれぞれについて,光合成の限定要因が何か,答えよ。
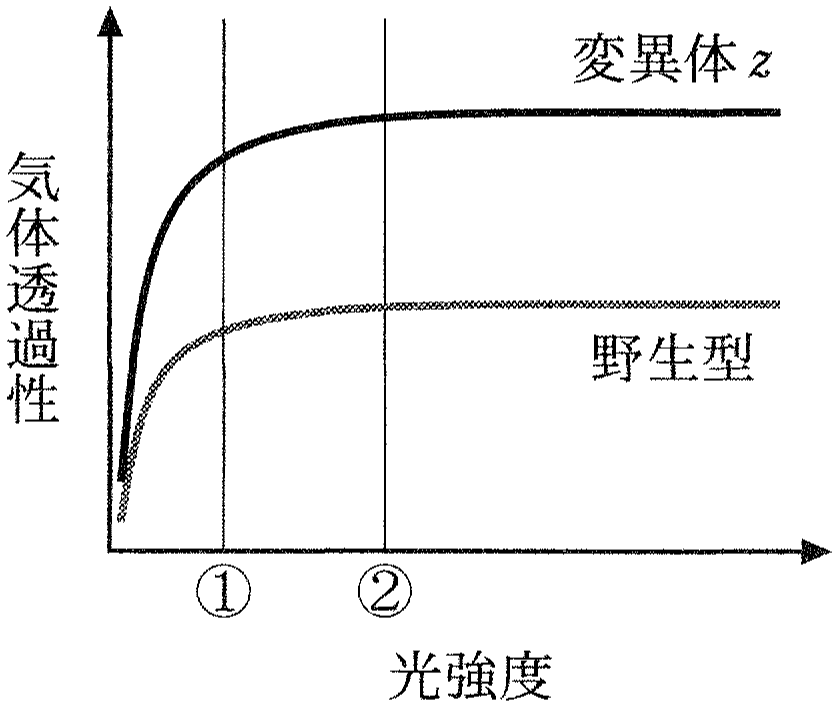
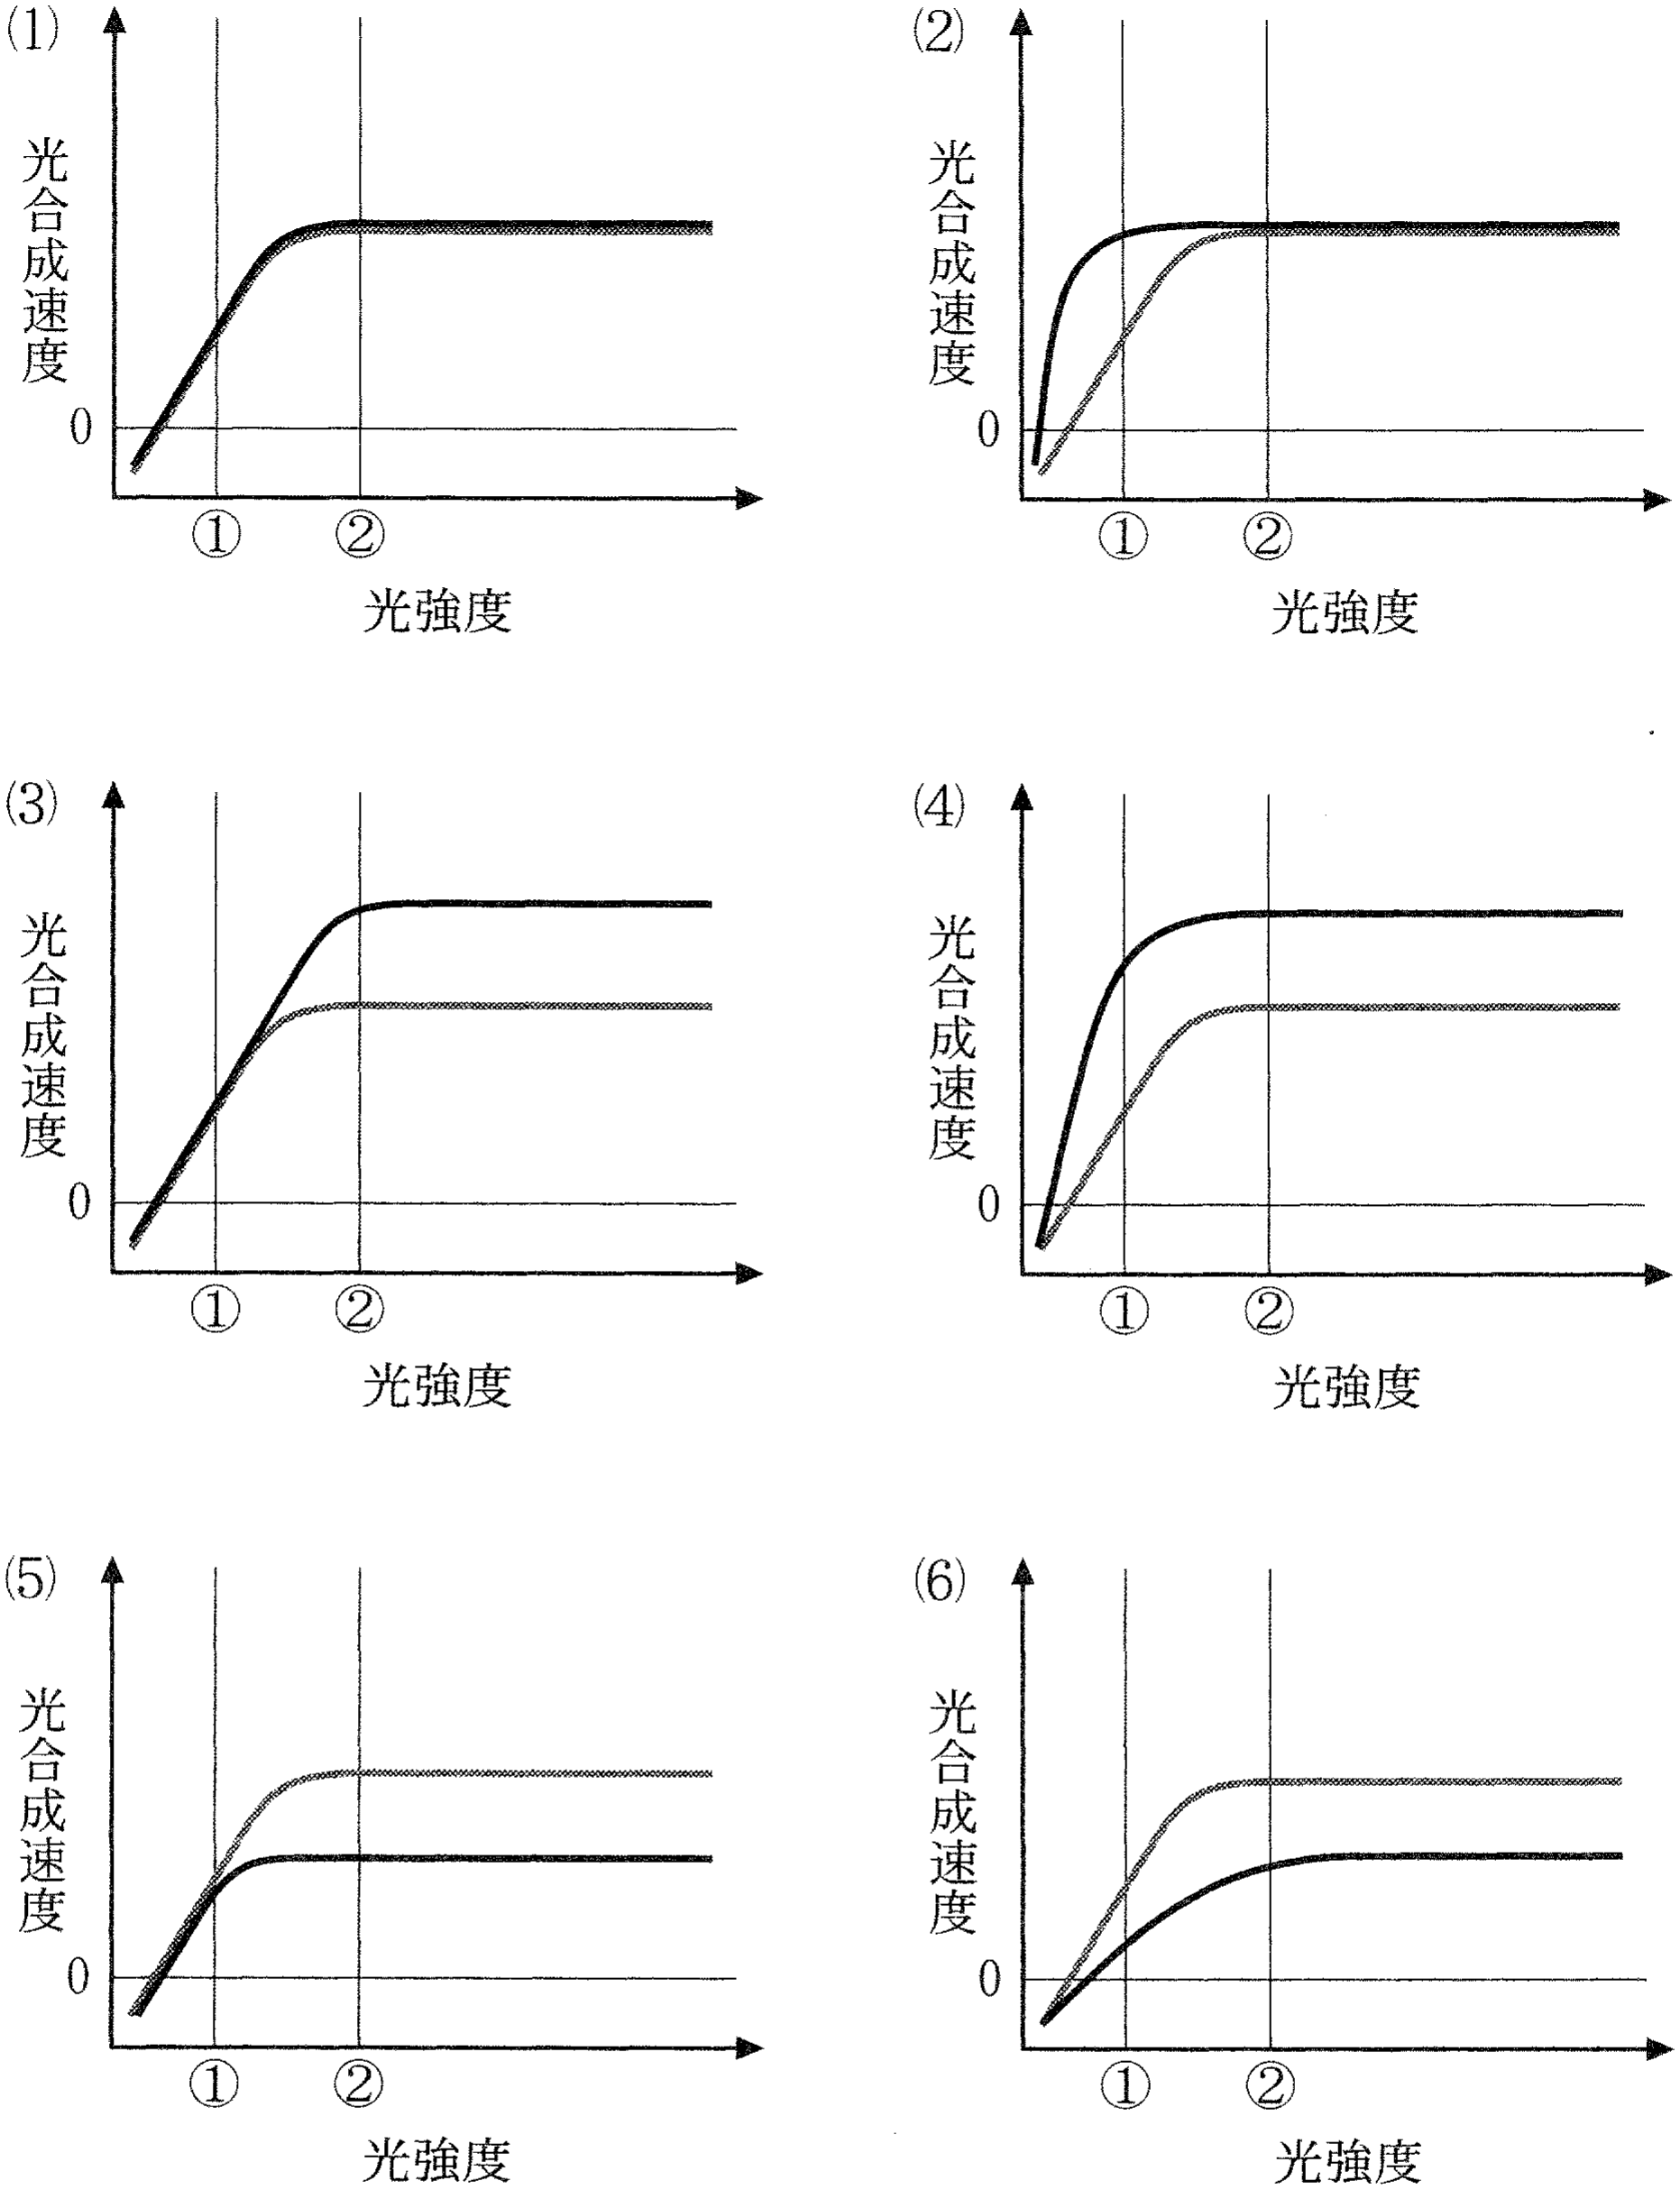
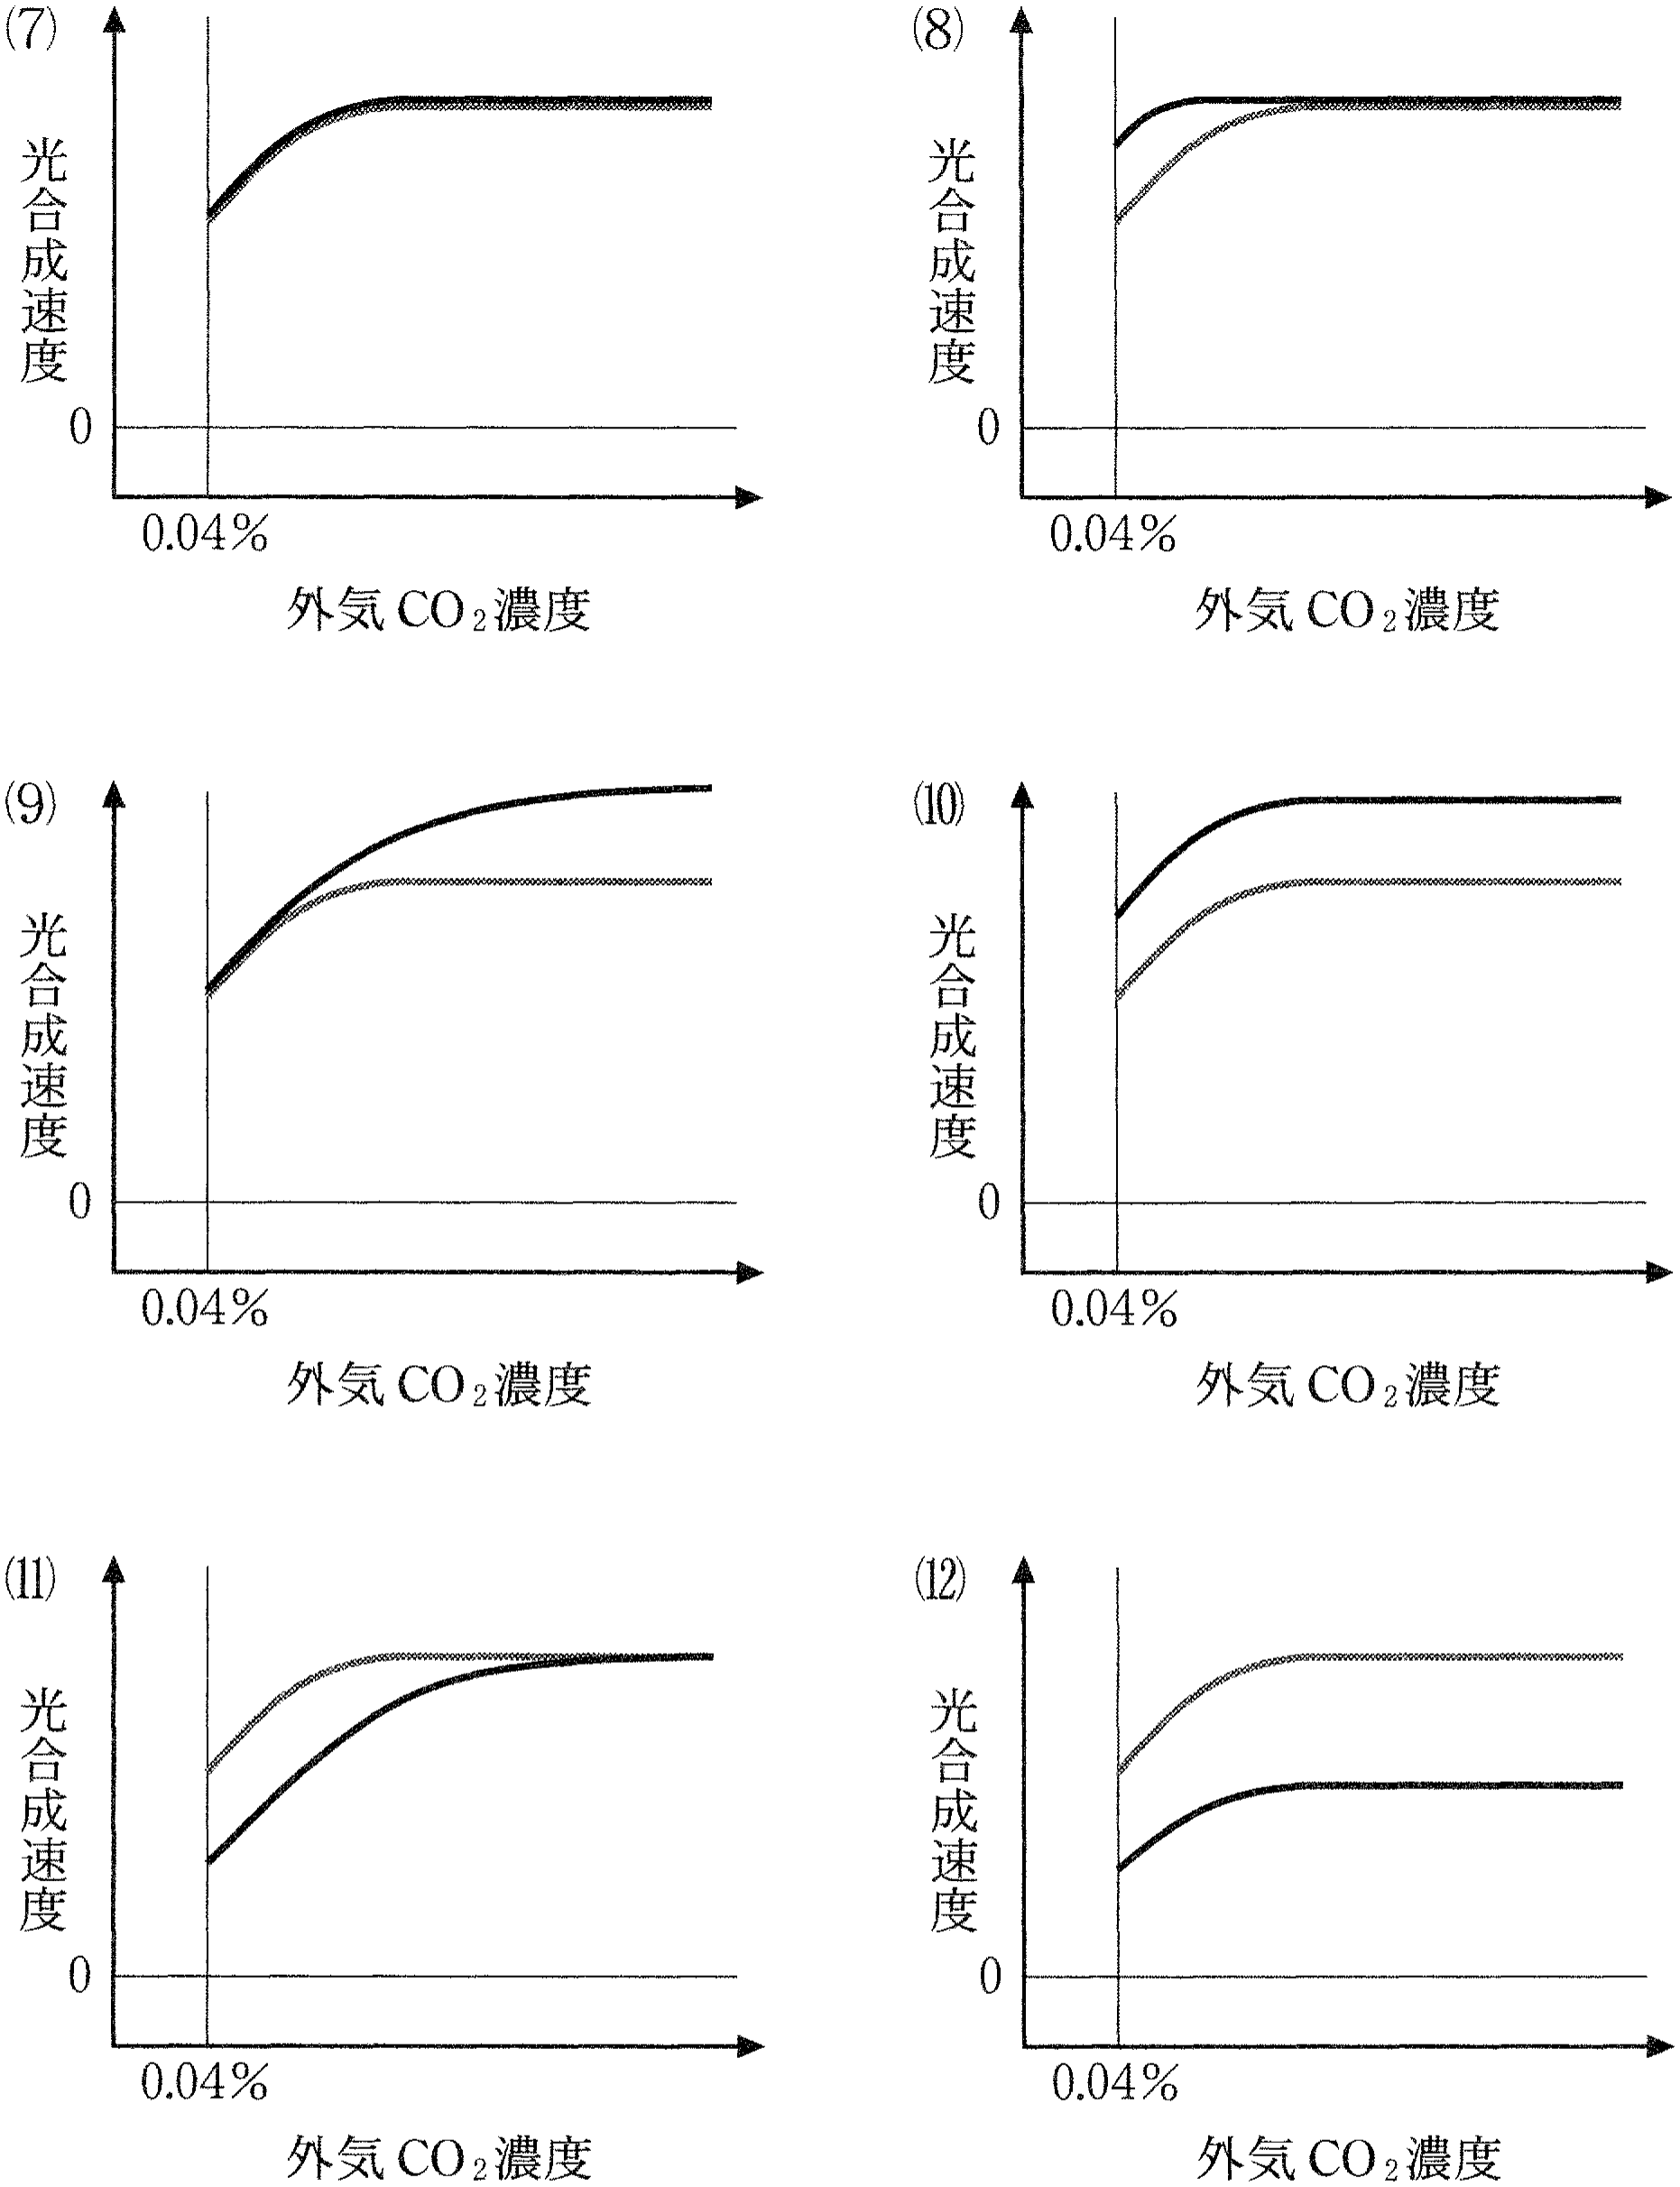
C 下線部(オ)について。今ここに気孔の密度が野生型の2倍程度に増大した突然変異体 がある。この変異体を用いて,いろいろな光強度のもとで葉の気体透過性(表皮を横切る気体移動の起きやすさを葉面積当たりで示したもの)を測定してみると,図2—3のようにどの光強度でも野生型より高くなっていた。次にこの変異体の光合成速度を,光強度を変えたり外気の 濃度を高くしたりした条件で測定し,野生型と比べようと思う。どのような結果が予想されるか。外気 濃度 0.04 % のときの光強度—光合成速度のグラフを次ページの(1)〜(6)から,光強度②のときの外気 濃度—光合成速度のグラフを次々ページの(7)〜(12)から,それぞれ最も適切なものを選んで答えよ。なお,測定は,葉の温度を一定に保てる装置を用いて,すべて同一の温度条件で行うものとする。また,各グラフ中の灰色の曲線は野生型の光合成速度を示す。
第3問
次の文1と文2を読み,ⅠとⅡの各問に答えよ。
〔文1〕
遺伝情報の流れは,DNA→RNA→タンパク質であり,セントラルドグマとして知られているが,RNA→DNA という流れもある。この流れは,RNA ウイルスの1種であるレトロウイルスの研究により,RNA を鋳型として DNA 合成を行う逆転写酵素が発見されたことで明らかになった。レトロウイルスが細胞に感染すると,ウイルス粒子がもっている逆転写酵素により RNA ゲノムから2本鎖 DNA が合成され,それが感染細胞の核 DNA に組み込まれる。組み込まれた DNA からは RNA が転写され,これを含むウイルス粒子がつくられる。
細胞のゲノム DNA 中には,レトロトランスポゾンと呼ばれるレトロウイルス様の配列がもともと存在し,そこから逆転写酵素が産生される。そのためレトロウイルスが感染していなくても RNA→DNA という遺伝情報の流れが稀に起きる。したがって長い時間を経てレトロトランスポゾンはゲノム中に広がり,挿入された領域によっては遺伝子の機能に直接影響を与えることもある。
〔文2〕
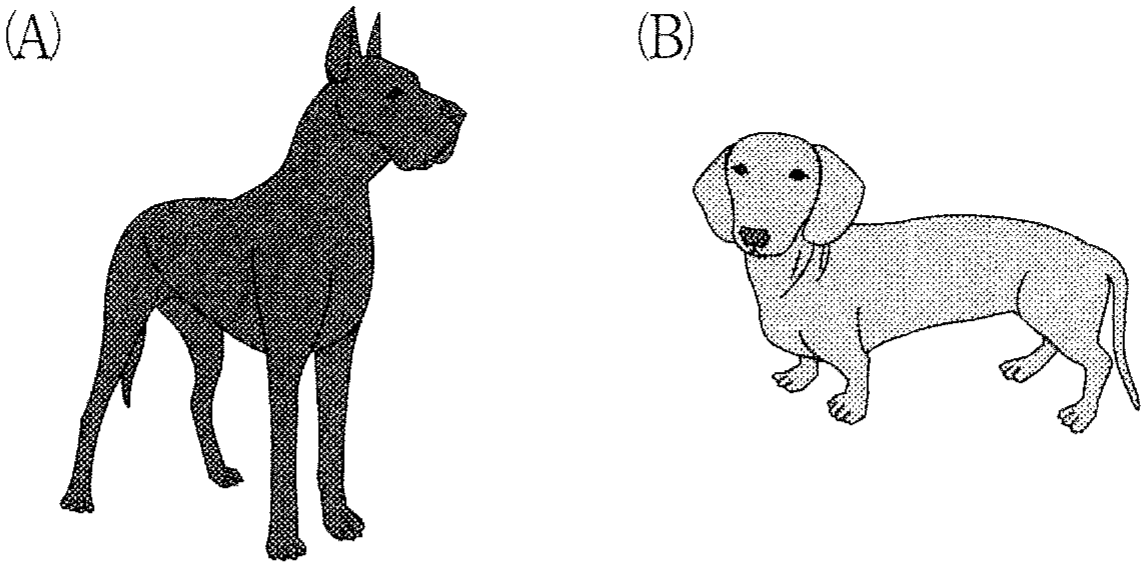
生物は長い歴史の中で,さまざまな形態を進化させてきた。その進化の原動力の1つが「遺伝子の重複」と考えられている。育種は人為的な選別によって進化を速める1つの方法と考えられる。オオカミから家畜化された飼いイヌには,育種によりさまざまな形態をもった 350 以上の血統が存在する。その中に,通常のイヌに比べ,短い脚をもつダックスフントという血統がある(図3—1)。ダックスフントはアナグマの猟犬として育種されたもので,この脚の短さは優性遺伝する。最近,その原因と考えられる遺伝子が発見され,それが遺伝子の重複によってつくられたものであることが,以下の「一塩基多型」(図3—2(A))を用いた研究からわかってきた。
ダックスフントのように脚の短い複数の血統と,通常の脚をもつ複数の血統から,それぞれ多数のイヌを選び出し,それらのゲノムを解析した。その結果,ある染色体上に脚の短さの原因と予想される領域(染色体の一部分)が同定された。そこで,その領域の塩基配列を,脚の短いイヌと通常のイヌとで比較したところ,脚の短いイヌのゲノムにおいて 5,000 塩基対の DNA の挿入が見いだされた(図3—2(B)と(C))。挿入 DNA の塩基配列を解析した結果,その配列は,同じ染色体上で,挿入箇所から遠く離れた遺伝子の とよく似ていた。そこで,この挿入 DNA を と呼ぶ。
と の配列をさらに詳細に比較したところ, の配列(5,000 塩基対)は全域にわたって, の遺伝子全長(6,200 塩基対)とほぼ一致していたが, には にない領域が2箇所あった。一方, と の mRNA(伝令 RNA)は共に 5,000 塩基程度であり,かつ全く同じアミノ酸配列をコードしていた。以上の結果は, が重複によってできた遺伝子であり,その発現のしかたがダックスフントの脚の短さの原因であることを予想させる。しかしそれを実証するためには,さらに実験が必要である。それに加えて, がどのように形成されたかを考察する必要がある。
ゲノムのある特定の領域や遺伝子の個体識別マーカーとして一塩基多型が使われている。一塩基多型とは,個体間にみられる配列上の一塩基の違いのことをいう。そこで一塩基多型に着目して, の起源を探った。まず,挿入箇所の周辺領域(以下,被挿入領域という)と および の一塩基多型を調べた(図3—2)。その結果,これらの領域や遺伝子に,互いに強く連鎖した(組換え価が小さい)3つから4つの一塩基多型が見いだされた。このような一塩基多型のセットは「ハプロタイプ」と呼ばれる。ここでは,その塩基を並べたものをハプロタイプの名称とする。図3—2(A)にその例として,被挿入領域のハプロタイプを示す。これらの配列から読み取れるように,被挿入領域のハプロタイプには,TCAG,TTAG,GTTA などがあった。一方, のハプロタイプは,血統1では GCG であり(図3—2(B)),ダックスフントの では ATG であったが, のハプロタイプは ACA であった(図3—2(C))。一般に,このようなハプロタイプは進化の過程で受け継がれると考えられている。そこで,イヌとオオカミの被挿入領域のハプロタイプと のハプロタイプを用いて, の起源を探った。
(注1) 血統を,ここでは純系であるとみなす。
(注2) 遺伝子の大きさとは,ここでは転写される領域と定義する。
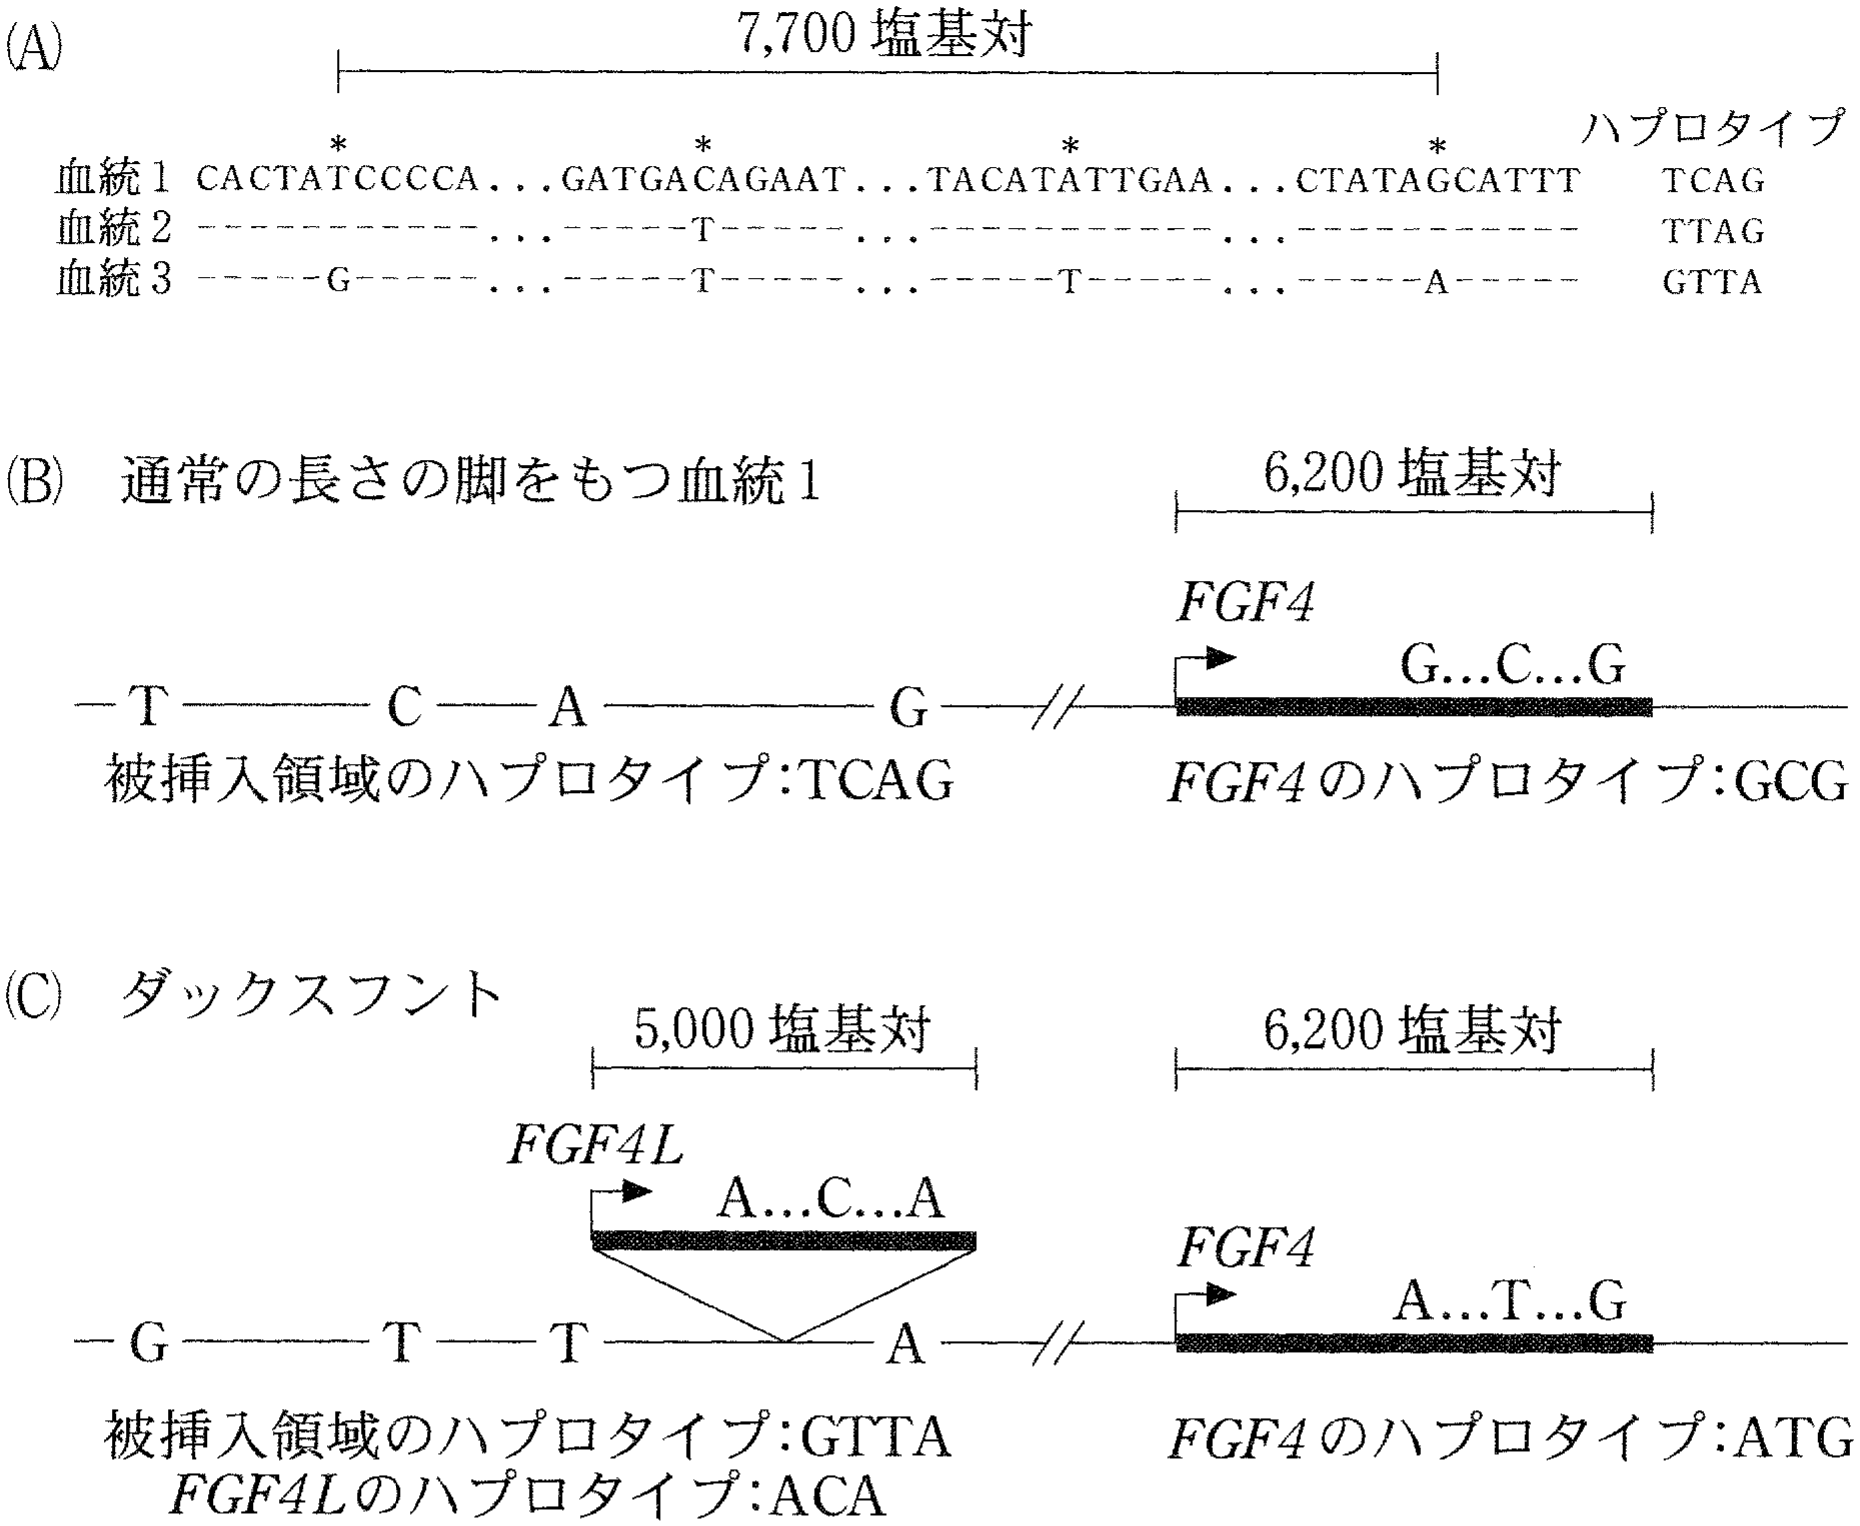
(A)被挿入領域の一塩基多型とハプロタイプの例。DNA 鎖の片方の配列を並べて血統間で比較した。星印(*)は一塩基多型の位置である。ハイフン(-)は,血統1の塩基配列と同じであることを表し,「...」は塩基配列の省略を表す。
(B),(C)被挿入領域, と のハプロタイプ, の挿入位置。細い線は DNA 鎖,太い線は遺伝子を表す。被挿入領域の DNA 鎖の中に一塩基多型の塩基を,下にハプロタイプを示す。遺伝子の上に一塩基多型の塩基を,下にハプロタイプを示す。 の一塩基多型は, の配列と比較したものである。矢印は転写開始点と方向を示す。
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。ヒトに感染し,病気を引き起こすレトロウイルスとしてどのようなものがあるか,1つ答えよ。
B 下線部(イ)について。以下の文章の空欄1〜3に適切な語句を入れよ。
真核生物の遺伝子は 1 と 2 からなる構造をもち,それが転写されるには,調節領域と 3 が必要である。転写後,2 に相当する部分は切り取られる。したがって,レトロトランスポゾンが 1 に挿入されると正常なタンパク質が形成されない,あるいは 3 に挿入されると転写が阻害される,などの影響が通常現れる。なお,レトロトランスポゾンでなくても,任意の DNA 断片はゲノム中の任意の箇所に挿入され得る。もしそれが 3 の近傍に挿入されると,その DNA から RNA が転写されることがある。
Ⅱ 文2について,以下の小問に答えよ。
A 下線部(ウ)について。ある表現型の原因遺伝子であることを実証するためには,その遺伝子が「必要」であること(必要条件)と,その遺伝子があれば「十分」であること(十分条件)を示す必要がある。ここではイヌを使った実験により, が脚の短さの原因遺伝子であることを示したい。なお,遺伝子操作として,クローニング(単離),ゲノム DNA への組み込み,欠失は自由に行えると仮定する。
(a) 十分条件を示す実験について述べた以下の文章の空欄4〜7に入る適切な語句を,以下の選択肢(1)〜(7)から選べ。なお空欄5と6には脚の表現型が入る。
4 遺伝子を含む DNA 領域をクローニングして,それを 5 をもつイヌの,任意の相同染色体の一方に組み込む。その染色体をもつ個体の表現型が 6 になり,かつその遺伝形式が 7 であることを示せば良い。
(1)
(2)
(3) 通常の長さの脚
(4) 短い脚
(5) 中間の長さの脚
(6) 優性
(7) 劣性
(b) 必要条件を示す実験について,行なう遺伝子操作,ならびに脚の表現型と遺伝形式を含めて,3行程度で述べよ。
B 下線部(エ)について。 は からどのような過程で生じたと考えられるか,またそれは体内のどの細胞で起きたと考えられるか,根拠と共に4行程度で述べよ。
C 下線部(オ)について。 のハプロタイプと,被挿入領域のハプロタイプを調べた結果を表3—1に示す。ダックスフントの血統が樹立される過程で,これらのハプロタイプにほとんど変化がなかったと仮定すると, の起源はどのように推察できるか。図3—2を参照しながら,以下の考察の空欄8〜13に入る適切なハプロタイプを答えよ。ただし,異なる番号が異なるハプロタイプを示すとは限らない。
考察: のハプロタイプは 8 であるので, は 8 のハプロタイプをもつ を起源とすると考えられる。しかし表3—1では と同じ個体にある のハプロタイプは 9 と 10 なので, はこれらの から由来したとは考えにくい。
の起源を探るには,8 のハプロタイプをもつ と,被挿入領域のハプロタイプとの関係を考える必要がある。表3—1において, をもつイヌの被挿入領域のハプロタイプは主として 11 であるが, のハプロタイプが 8 と同じ個体でみられる被挿入領域のハプロタイプは,イヌでは 12 のみであった。
一方,表3—1において,オオカミをみてみると,8 のハプロタイプをもつ と同じ個体でみられる被挿入領域のハプロタイプに 13 があり,かつその出現頻度が高かったことより,このハプロタイプの組合せをもつオオカミ,あるいはそれ由来のイヌの血統で が形成されたと考えられる。ただし,もしそのイヌの血統があったとしても,現存していない。
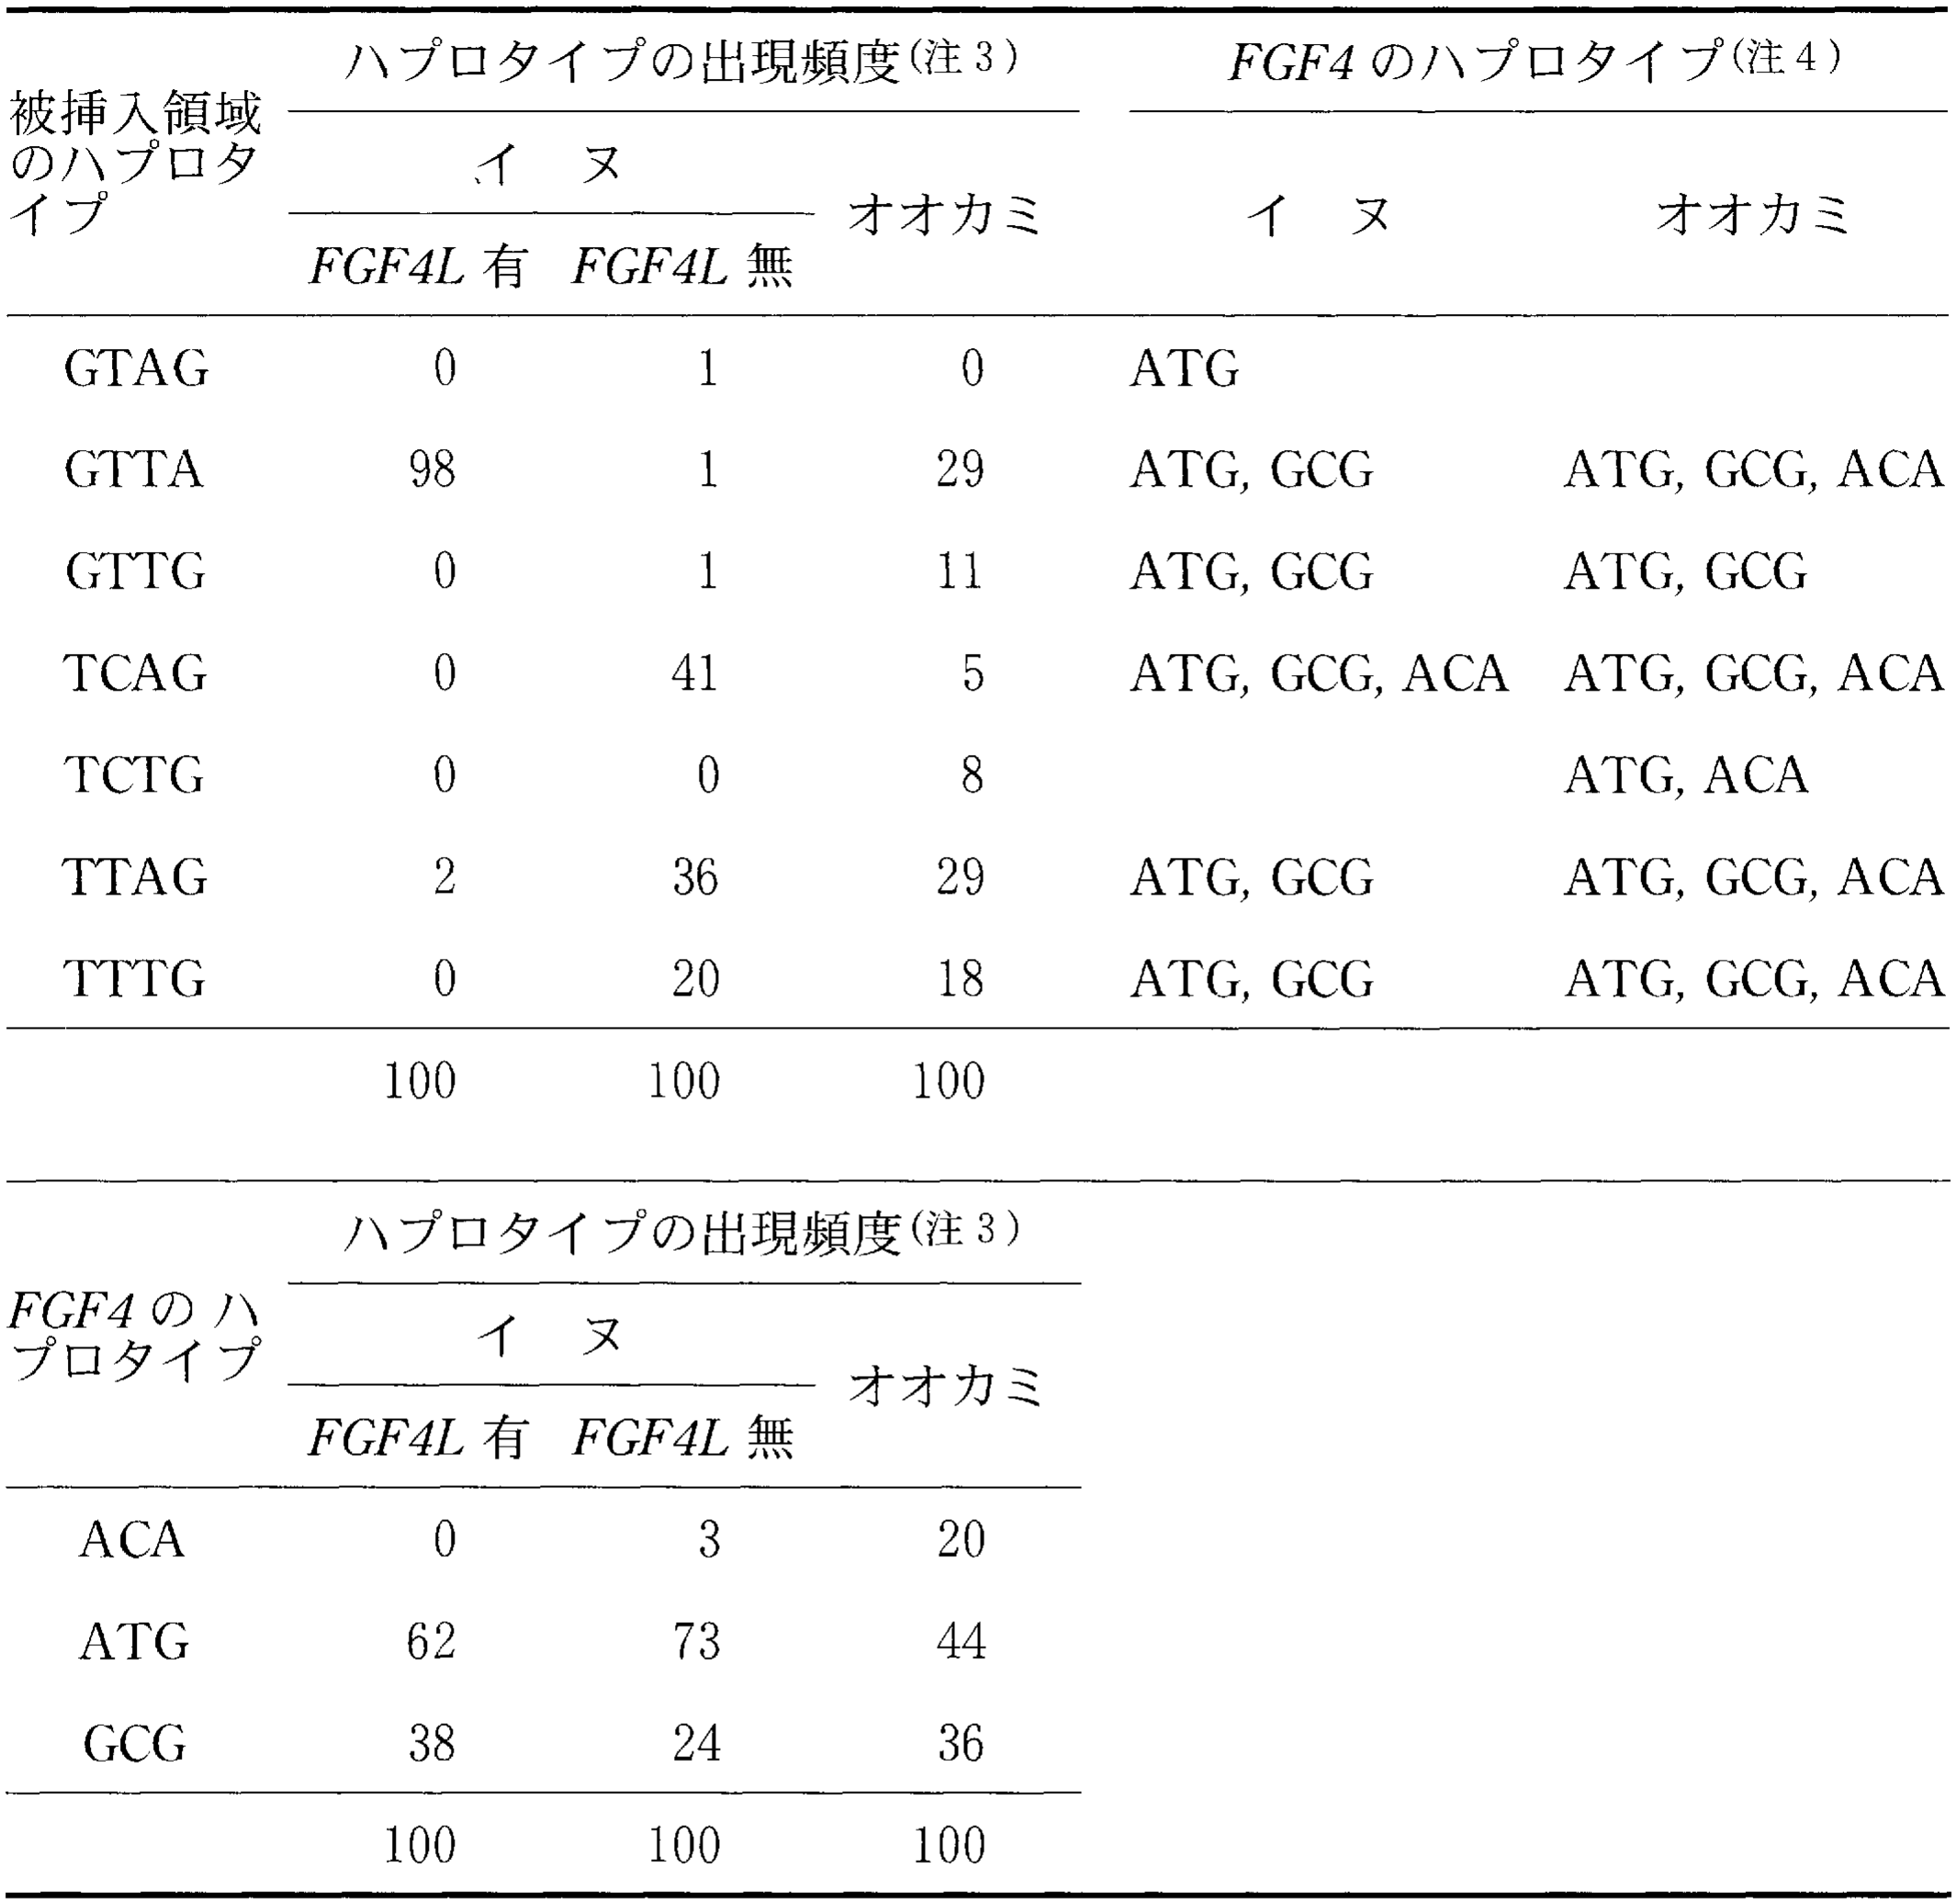
(注3) をもつイヌ( 有),もたないイヌ( 無),およびオオカミにおける被挿入領域と のハプロタイプについて,多数の個体を用いて調べ,その結果を百分率で示した。
(注4) 被挿入領域のハプロタイプごとに,同じ個体でみられる のハプロタイプを列挙して示す。例えば,被挿入領域のハプロタイプ TTTG と同じ個体にみられる のハプロタイプには,イヌでは ATG,GCG があるが,オオカミでは ATG,GCG,ACA がある。