— 38 —
生 物
第1問
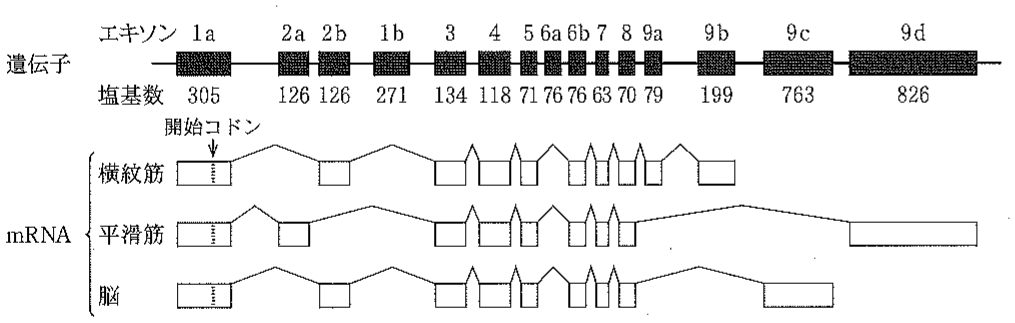
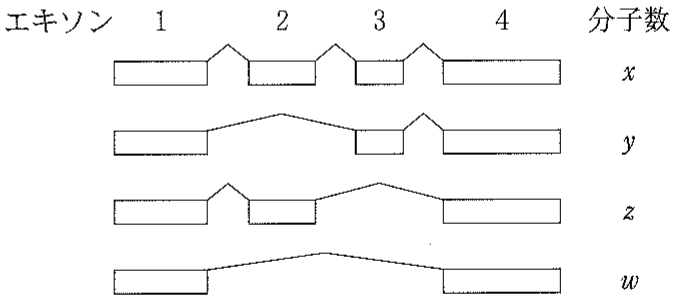
次のⅠ,Ⅱの各問に答えよ。なお,図1—1,図1—2,図1—6の中,白い四角部分はエキソンをあらわし,山型の実線はスプライシングにより除去される領域をあらわす。
Ⅰ 次の文章を読み,問A〜Dに答えよ。
真核細胞において,核内で DNA から(ア) (イ) (ウ) α
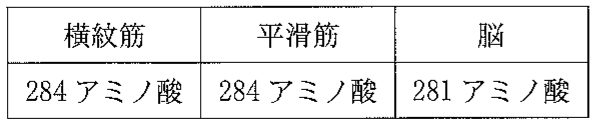
図1—1 α 表1—1 各発現部位における α — 39 —
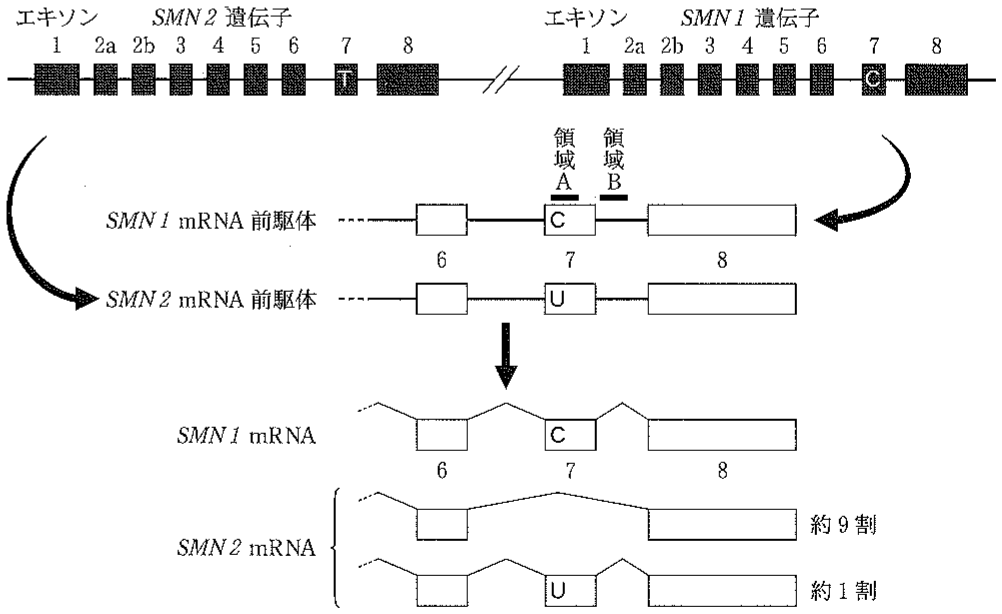
近年,スプライシングを補正してヒトの遺伝病の治療につなげようとする研究が精力的に行われている。ヒトの5番染色体に存在する S M N 1 S M N 2 (エ) S M N 1 S M N 2 S M N 2 Δ S M N 2 S M N 1 S M N 1 (オ)
図1—2 ヒトの S M N 1 S M N 2 — 40 —
〔問〕
A 下線部(ア)について。真核生物における転写の基本的なメカニズムについて,以下の語句をすべて用いて3行程度で説明せよ。同じ語句を繰り返し使用してもよい。
基本転写因子,プロモーター,RNA ポリメラーゼ,片方の DNA 鎖,5′→3′
B 下線部(イ)について。異なる塩基配列の6つのエキソン(エキソン1〜6と呼ぶ)を持つ遺伝子があるとする。スプライシングの際,エキソン1とエキソン6は必ず使用されるが,エキソン2〜5がそれぞれ使用されるかスキップされるかはランダムに決まるとすると,理論上,合計で何種類の mRNA が作られるか答えよ。ただし,スプライシングの際にエキソンの順番は入れ替わらず,エキソンとイントロンの境目の位置は変わらないものとする。
C 下線部(ウ)について。α α
— 41 —
D 下線部(エ)および(オ)について。以下の文中の空欄 a 〜 e に当てはまるもっとも適切な語句を,以下の選択肢①〜⑩から選べ。同じ選択肢を繰り返し使用してもよい。解答例:a—①,b—②
S M N 1 S M N 2 a となっており,ここにはタンパク質 Y は結合できない。これらのことから,タンパク質 Y には,スプライシングの際にエキソン7が b されることを促進するはたらきがあると考えられる。
一方,S M N 1 S M N 2 c されることを促進するはたらきがあり,人工核酸分子 X は,d 遺伝子のスプライシングを補正することによって,e 型 SMN タンパク質を増加させる作用を持つと考えられる。
① TAGACAA
② CATACAA
③ UAGACAA
④ CAUACAA
⑤ 使 用
⑥ スキップ
⑦ S M N 1
⑧ S M N 2
⑨ Δ
⑩ 全 長
— 42 —
Ⅱ 次の文章を読み,問E〜Hに答えよ。
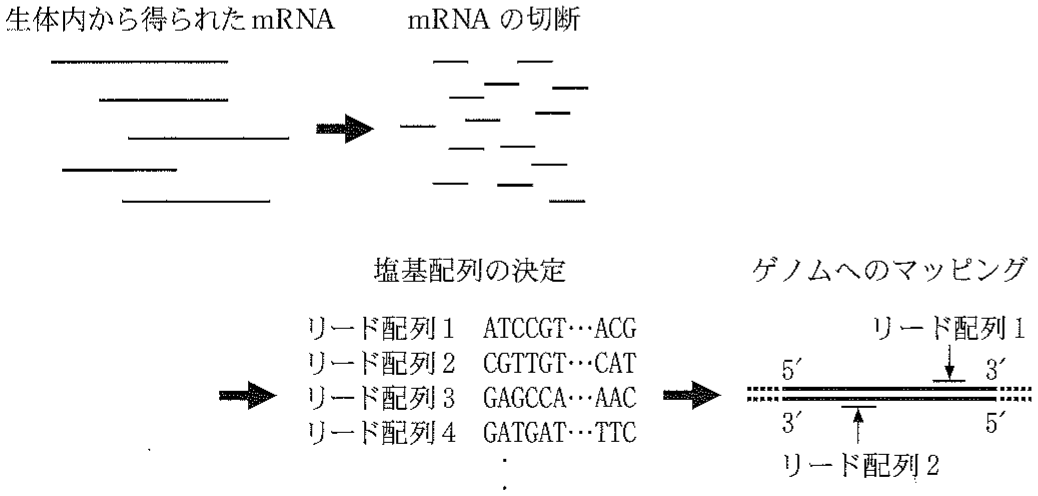
近年の塩基配列解析装置の急速な進歩によって,生体内に存在する RNA を網羅的に明らかにする「RNA-Seq」と呼ばれる解析を行うことが可能になった(図1—3)。例えば,今日用いられているある装置を用いて RNA-Seq を行った場合,長い RNA の塩基配列全体を決定することはできないが,それらの RNA を切断することで得られる短い RNA について,数千万を超える分子数の RNA の塩基配列を一度に決定することができる。こうして決定される一つ一つの短い塩基配列を「リード配列」と呼び,DNA に含まれる4種類の塩基を表す A,C,G,T のアルファベットをヌクレオチド鎖の 5′→3′ の順に並べた文字列として表す(塩基配列決定の際に RNA は DNA に変換されるため,U は T として読まれる)。リード配列を決定した後,そのリード配列の元となった短い RNA がゲノム中のどの位置から転写された RNA に由来するかを決めるためには,コンピュータを用いて,ヌクレオチド鎖の向きも含めてリード配列と一致する塩基配列がゲノムの中に出現する位置を見つける「マッピング」と呼ばれる解析を行う。今日の生物学では,このように膨大なデータを情報科学的に解き明かしていくバイオインフォマティクスが重要となっている。
図1—3 mRNA を対象とした RNA-Seq の概略図 — 43 —
〔問〕
E ヒトのゲノム(核相 n 3 × 10 f
F 一般に,真核生物の遺伝子から転写された mRNA 前駆体には,スプライシングが起きるほか,アデニンが多数連なったポリ A 配列と呼ばれる構造が付加される。これを利用して,真核生物の生体内から得られた RNA を,ある塩基が多数連なった一本鎖の DNA が結合した材質に吸着させることで,mRNA を濃縮して解析することができる。その塩基の名称をカタカナで答えよ。
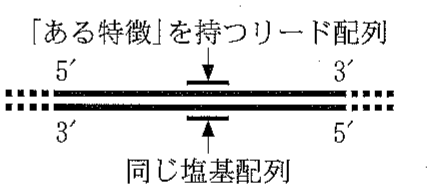
G リード配列が「ある特徴」を持つ場合,そのリード配列と一致する塩基配列はゲノムの2つのヌクレオチド鎖の全く同じ位置に出現する(図1—4)。「ある特徴」とはどのようなものかを考え,その特徴を持つ10塩基の長さの塩基配列の例を1つ答えよ。塩基配列は A,C,G,T のアルファベットを 5′→3′ の順に並べた文字列として表すものとする。
図1—4 「ある特徴」を持つリード配列のマッピング — 44 —
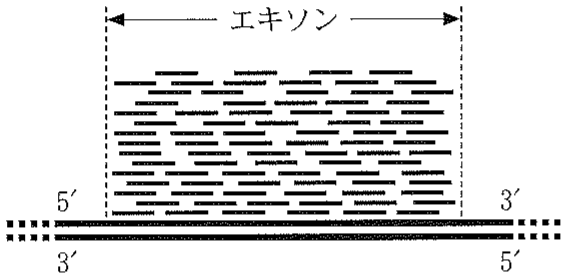
H 真核生物の生体内から得られた mRNA サンプルに対して RNA-Seq を行い,得られたリード配列をゲノムに対してマッピングし,各遺伝子の各エキソン内にマッピングされたリード配列の数を数えた(図1—5)。RNA-Seq において mRNA は短い RNA にランダムに切断され,解析装置に取り込まれて塩基配列が決定されたとする。リード配列は各エキソンの長さに比べれば十分に短い一定の長さを持ち,いずれかの遺伝子のエキソン内の1カ所に明確にマッピングされたものとして,以下の問(あ)〜(う)に答えよ。
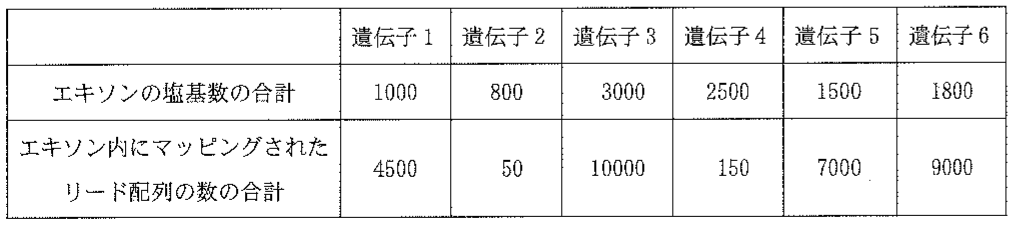
図1—5 ある遺伝子のエキソンに多数のリード配列がマッピングされた様子 (あ) 遺伝子1〜6のエキソンの塩基数の合計と,エキソン内にマッピングされたリード配列の数の合計は表1—2に示すとおりであった。このことから,遺伝子1〜6のうち,mRNA の分子数が最も多かったものは遺伝子 g ,最も少なかったものは遺伝子 h であったと考えられる。空欄 g,h に入る数字を答えよ。ただし,遺伝子1〜6は選択的スプライシングを受けないものとする。解答例:g—1,h—2
表1—2 RNA-Seq の結果(遺伝子1〜6) — 45 —
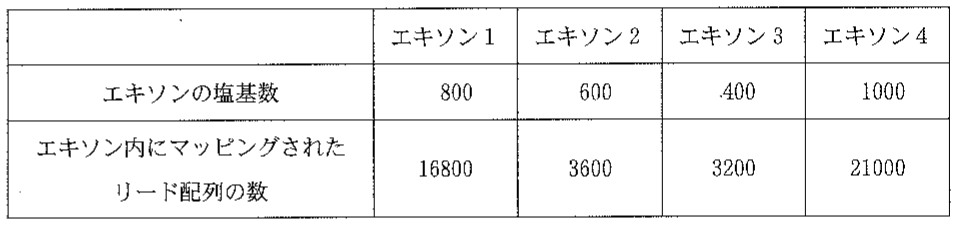
(い) 遺伝子7は4つのエキソンを持ち,各エキソンの塩基数と,エキソン内にマッピングされたリード配列の数は表1—3に示すとおりであった。遺伝子7は選択的スプライシングを受け,エキソン2かエキソン3のいずれか,あるいは両方がスキップされることがある。図1—6に示すように,エキソンが一つもスキップされない mRNA の分子数を x y z w x y z w
表1—3 RNA-Seq の結果(遺伝子7) 図1—6 遺伝子7の選択的スプライシング (う) 遺伝子7について,x x y z w
(1) x < y
(2) x + z < y + w
(3) x < w
(4) y > z
(5) y > w
(6) z < w
— 46 —
第2問
次の文章を読み,問A〜Jに答えよ。
オーストラリア南東部のタスマニア島には,タスマニアデビル(図2—1)と呼ばれる体長 50〜60 cm の(ア)
近年,野生のタスマニアデビルの顔や首の傷口の周囲に,大きな瘤(こぶ)ができているのが見つかるようになった。調査の結果,この瘤は悪性腫瘍(がん)とわかった。悪性腫瘍とは,体細胞の突然変異によって生じた,無秩序に増殖し他の臓器へと広がる異常な細胞集団である。この悪性腫瘍は急速に大きくなるため,これをもつタスマニアデビル個体は口や眼をふさがれてしまい,発症から数ヶ月で死に至る。悪性腫瘍をもつ個体は頻繁に見られるようになり,短期間のうちに野生のタスマニアデビルの生息数は激減した。現在,タスマニアデビルは絶滅の危機に瀕しており,様々な保護活動が行われている。
タスマニアデビルの悪性腫瘍について,以下の実験を行った。
図2—1 タスマニアデビル — 47 —
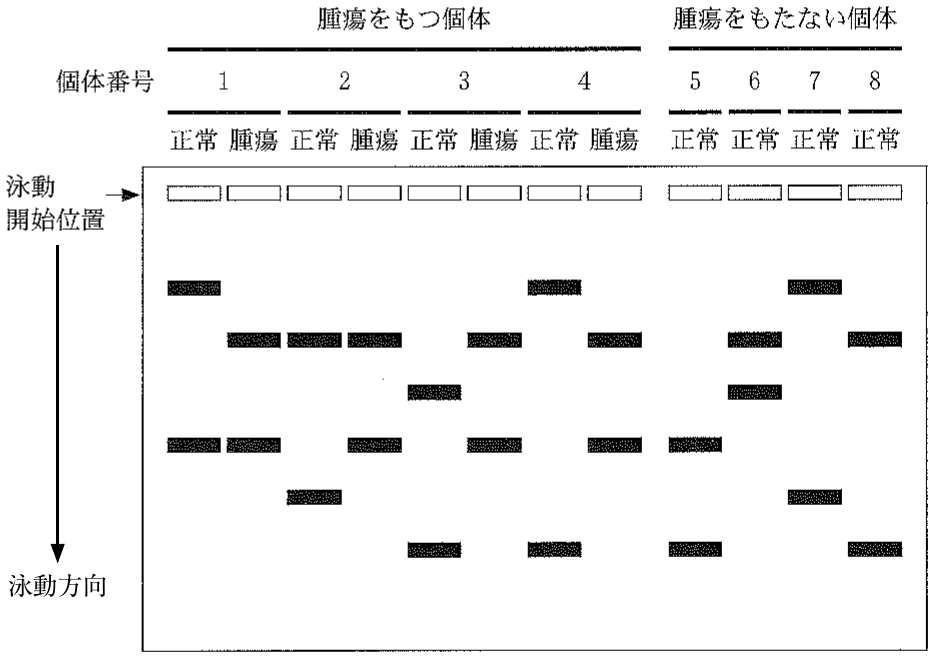
実験1 悪性腫瘍をもつ4頭のタスマニアデビルを捕獲し,腫瘍の一部と,腫瘍とは別の部位の正常な体組織を採取し,DNA を抽出した。また,悪性腫瘍をもたないタスマニアデビル4頭を捕獲し,同様に体組織を採取し DNA を抽出した。これらの DNA 検体を用いて,あるマイクロサテライトを含む DNA 領域を(イ)
図2—2 ゲル電気泳動の結果 — 48 —
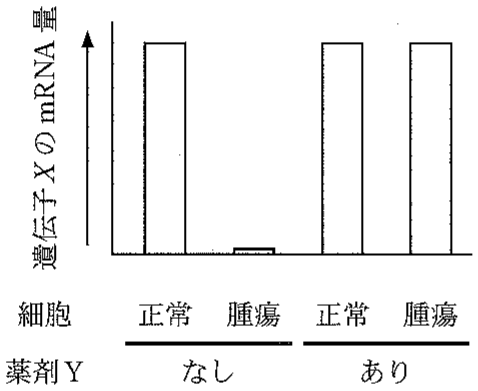
実験2 タスマニアデビルの悪性腫瘍,および様々な正常な体組織から mRNA を抽出し,それを鋳型として(ウ) (エ) X X
図2—3 正常なシュワン細胞と悪性腫瘍細胞における遺伝子 X — 49 —
実験3 遺伝子 X X X X (オ) X
図2—4 正常マウスと遺伝子 X — 50 —
〔問〕
A 下線部(ア)について。有袋類はオーストラリア地域に多く生息しているが,他の地域にはほとんど見られない。その理由を3行程度で説明せよ。
B 下線部(イ),(ウ)に用いられる酵素の名称と,それらの酵素の遺伝子は何から発見されたものか,それぞれ答えよ。解答例:イ—○○(酵素名),△△(酵素遺伝子の由来)
C 下線部(エ)について。以下の文中の空欄1〜8に適切な語句を記入せよ。解答例:1—○○,2—△△
哺乳類では,シュワン細胞は末梢神経において,1 は中枢神経において,ニューロンの 2 を包み込む 3 を形成する。3 をもつ 4 神経繊維では,5 の部位においてのみ興奮が生じるため,6 が起こる。そのため,3 をもたない 7 神経繊維と比べて興奮の伝導速度が 8 。
D 実験1に用いられた個体のうち,個体7と8はつがいであった。個体1〜6のうち,個体7と8の子供である可能性がある個体をすべて選べ。
— 51 —
E 実験1の結果から,タスマニアデビルの悪性腫瘍について考察した以下の(1)〜(5)のうち,可能性があるものをすべて選べ。
(1) 個体1〜4の悪性腫瘍は,それぞれの個体の正常細胞から発生した。
(2) 個体1と2は兄弟姉妹であり,これらの悪性腫瘍は親の正常細胞から発生したものが伝染した。
(3) 個体3と4は兄弟姉妹であり,これらの悪性腫瘍は親の正常細胞から発生したものが伝染した。
(4) すべての悪性腫瘍は,個体1〜4のうち,いずれか1頭の個体の正常細胞から発生し,個体間で伝染した。
(5) すべての悪性腫瘍は,個体1〜8とは別の個体の正常細胞から発生した。
F 実験2の結果から,タスマニアデビルの悪性腫瘍では,遺伝子 X
G 実験3の結果から,遺伝子 X
(1) 遺伝子 X
(2) 遺伝子 X
(3) 遺伝子 X
(4) 遺伝子 X
(5) 遺伝子 X
— 52 —
H 実験2と3の結果から考察した以下の(1)〜(5)のうち,適切なものを2つ選べ。
(1) 遺伝子 X X
(2) タスマニアデビルの悪性腫瘍では,MHC の mRNA 量が減少していると考えられる。
(3) タスマニアデビルの悪性腫瘍では,細胞膜上の MHC タンパク質の量が減少していると考えられる。
(4) タスマニアデビルの悪性腫瘍を薬剤 Y で処理すると,細胞膜上の MHC タンパク質の量が回復すると予想される。
(5) 遺伝子 X
I 下線部(オ)の結果が得られたのはなぜか,その理由を3行程度で説明せよ。
J タスマニアデビルがこの悪性腫瘍によって絶滅しないために,有利にはたらくと考えられる形質の変化は何か。以下の(1)〜(6)のうち,適切なものをすべて選べ。
(1) 攻撃性が強くなり,噛みつきによる同種間の争いが増える。
(2) 攻撃性が低下し,穏やかな性質となる。
(3) 同種間では儀式化された示威行動によって争うようになる。
(4) トル様受容体(TLR)による病原菌の認識能力が高まる。
(5) ナチュラルキラー(NK)細胞による異物の排除能力が高まる。
(6) ウイルスに対して抗体を産生する能力が高まる。
— 55 —
第3問
次のⅠ,Ⅱの各問に答えよ。
Ⅰ 次の文章を読み,問A〜Cに答えよ。
植物の発生や成長は,様々な環境要因の影響を受けて調節されている。環境要因の中でも,温度は,光と並んで,植物の発生・成長の調節において,とくに重要な意味をもつ。温度と光で調節される発生現象の顕著な例の一つが,花芽形成である。日長に応じて花芽を形成する植物は多いが,その中には一定期間低温を経験することを前提とするものがある。低温を経験することで,日長に応答して花芽を形成する能力を獲得するのである。これを春化という。花芽形成に春化を要求する植物は,一般に長日性である。こうした植物では,低温の経験の後に適温と長日条件の2つが揃ったときに,花芽の形成が促進される。
植物はどういうときにどこで低温を感じ取り,それはどのように春化につながるのだろうか。これらの問題に関しては,古くから工夫を凝らした生理学的実験が数多く行われている。例えば,(ア) (イ)
シロイヌナズナを用いた分子生物学的解析からは,F L C F L C (ウ) F L C F L C
— 56 —
〔問〕
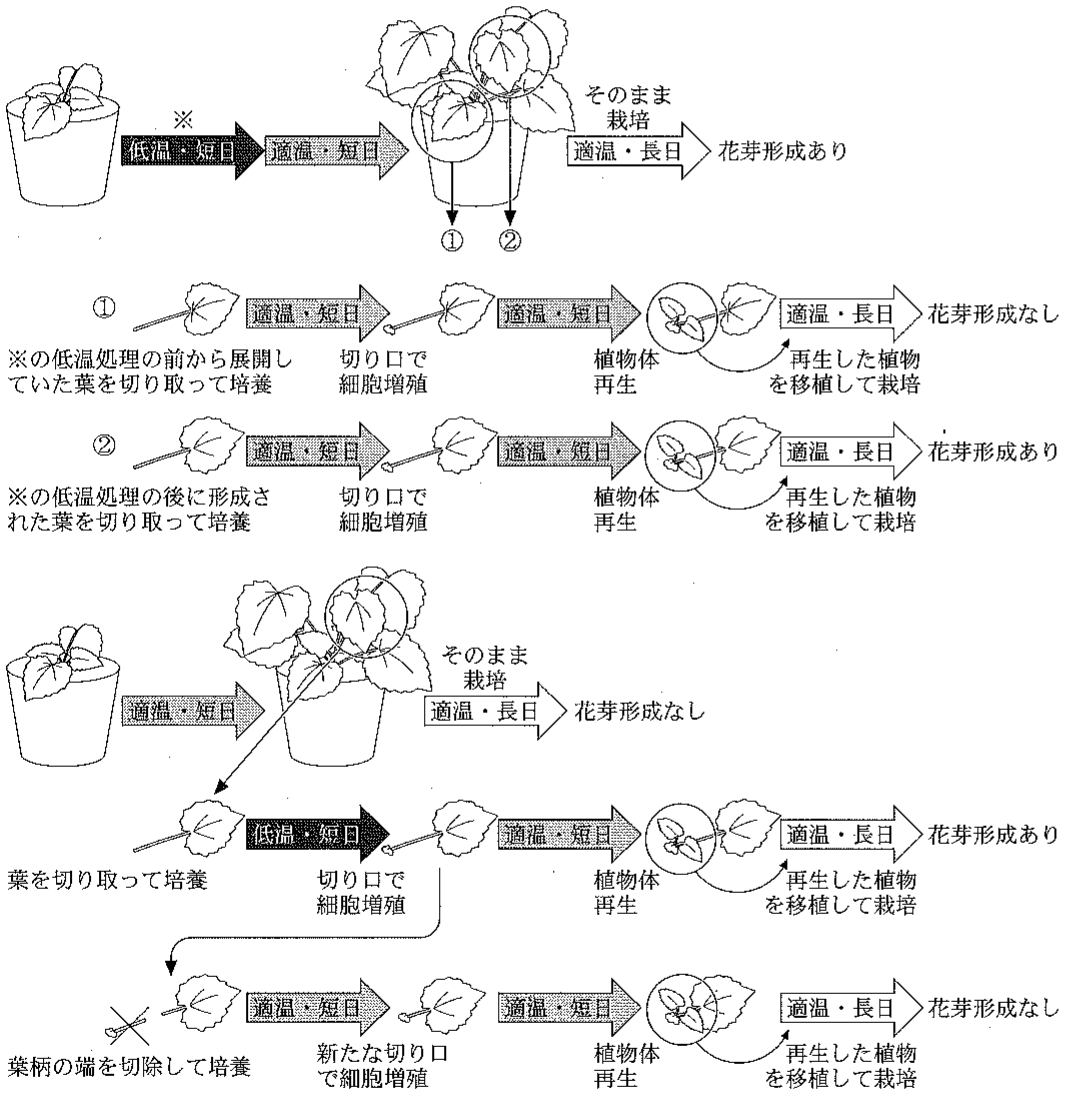
A 下線部(ア)について。ゴウダソウは春化要求性の長日植物である。ゴウダソウの葉を切り取って培養すると,葉柄の切り口近傍の細胞が脱分化して分裂を始め,やがて分裂細胞の集団から芽が形成されて,植物体を再生する。この植物体再生と低温処理を組み合わせて,春化の特徴を調べる実験が行われた。この実験の概要と結果をまとめたのが図3—1である。
図3—1 ゴウダソウの植物体再生を利用した花芽形成実験 — 57 —
以下の(1)〜(5)の記述のそれぞれについて,図3—1の実験結果から支持されるなら「○」,否定されるなら「×」,判断できないなら「?」と答えよ。
(1) 一旦春化が成立すると,その性質は細胞分裂を経ても継承される。
(2) 植物体の一部で春化が成立すると,その性質は植物体全体に伝播する。
(3) 春化の成立には,分裂している細胞が低温に曝露されることが必要である。
(4) 春化は脱分化によって解消され,春化が成立していない状態に戻る。
(5) 低温処理時の日長によって,春化が成立するまでにかかる時間が異なる。
B 下線部(イ)について。春化による花芽形成能力の獲得には,花成ホルモンを産生する能力の獲得と,花成ホルモンを受容し応答する能力の獲得の2つが考えられる。これらそれぞれを判定するための,春化要求性長日植物を用いた接ぎ木実験を考案し,判定の方法も含めて実験の概要を5行程度で説明せよ。なお,図を用いてもよい。
C 下線部(ウ)について。春化における F L C F L C
(1) 大腸菌にラクトースを投与すると,ラクトースオペロンの抑制が解除される。
(2) 酸素濃度の高い条件で酵母を培養すると,アルコール発酵が抑えられる。
(3) エンドウの果実から種子を取り除くと,さやの成長が止まる。
(4) ショウジョウバエの受精卵で,母性効果遺伝子の mRNA の局在が分節遺伝子の発現パターンを決める。
(5) 雌のマウスで,2本ある X 染色体の一方が不活性化されている。
(6) ヒトのある地域集団で,A,B,AB,O の各血液型の割合が,世代を経てもほぼ一定に保たれている。
— 58 —
Ⅱ 次の文章を読み,問D〜Gに答えよ。
植物の成長は,成長に適した温度域における,比較的小さな温度の違いにも影響を受ける。最近,シロイヌナズナの胚軸の伸長に対する温度の影響に着目した研究から,フィトクロムの関与を示す画期的な発見があった。
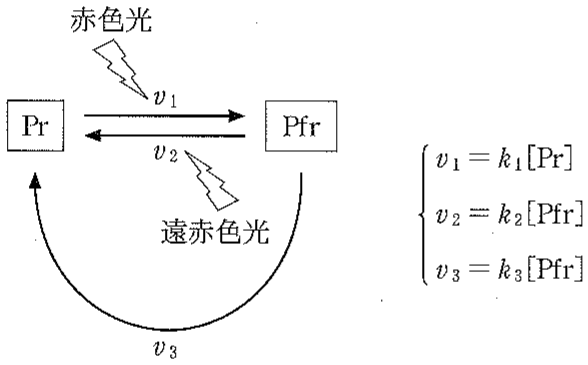
フィトクロムは,光受容体として光応答にはたらく色素タンパク質である。フィトクロムには,赤色光吸収型の Pr と遠赤色光吸収型の Pfr が存在し,Pr は赤色光を吸収すると Pfr に変換し,Pfr は遠赤色光を吸収すると Pr に変換する。また,Pfr から Pr への変換は,光とは無関係にも起きる。図3—2に示すように,各変換の速度 v 1 v 3 [ P r ] [ P f r ] k 1 k 3
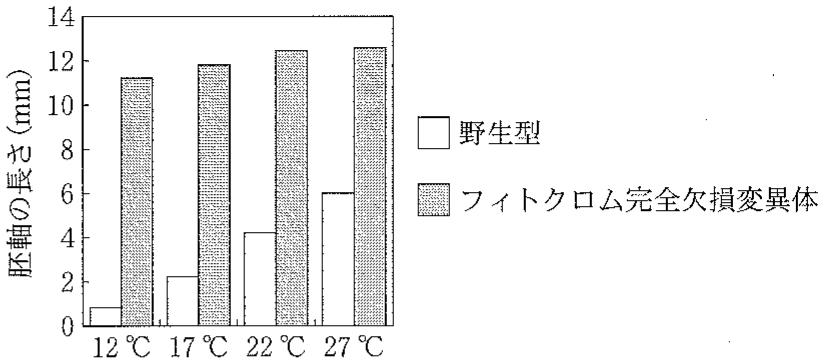
図3—2 フィトクロムの Pr と Pfr の変換 シロイヌナズナの胚軸の伸長は,明所では抑制され,暗所で促進される。これに対して,(エ)
— 59 —
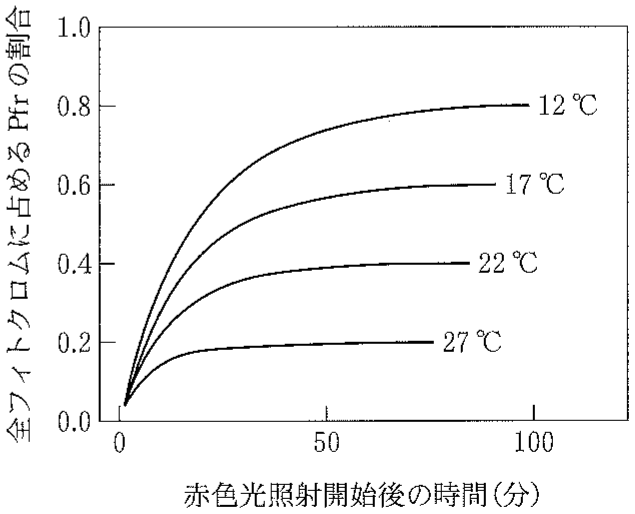
図3—3 シロイヌナズナの胚軸の伸長に対する温度とフィトクロム欠損の影響 さらに精製フィトクロムを用いた試験管内実験によって,Pr・Pfr 間の変換に対する温度の影響も調べられた。光による変換の係数である k 1 k 2 k 3 (オ)
図3—4 各温度における Pfr の割合の変化 — 60 —
〔問〕
D 下線部(エ)について。この実験結果から,胚軸伸長の制御において,フィトクロムはどのように作用すると考えられるか。以下の(1)〜(4)のうちから,最も適当なものを1つ選べ。
(1) Pr が伸長成長を促進する。
(2) Pr が伸長成長を抑制する。
(3) Pfr が伸長成長を促進する。
(4) Pfr が伸長成長を抑制する。
E 下線部(オ)について。図3—4の情報に基づいて,k 3 k 3
F 下線部(オ)の実験を,赤色光と同時に遠赤色光を照射して行うと,結果はどのようになると予想されるか。以下の(1)〜(5)のうちから,最も適当なものを1つ選べ。
(1) 温度によらず,定常状態での Pfr の割合はほぼ0となる。
(2) 温度によらず,定常状態での Pfr の割合はほぼ1となる。
(3) 温度が高いほど Pfr の割合が低い傾向は赤色光下と同じであるが,温度の影響は弱くなる。
(4) 温度が高いほど Pfr の割合が低い傾向は赤色光下と同じであるが,温度の影響がより強くなる。
(5) 赤色光下とは逆に,温度が高いほど Pfr の割合が高くなる。
G 高温で伸長が促進される性質は,胚軸だけでなく,茎や葉柄でも見られる。この性質が自然選択によって進化したとすれば,それはどのような理由によるだろうか。自由な発想で考え,合理的に説明できる理由の1つを3行程度で述べよ。
第1問 つなぎ方で変わる mRNA — 読み枠・1文字の変化・リードの数え方 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 Ⅰは、1つの遺伝子から、エキソンのつなぎ方を変えて何種類もの mRNA を作る選択的スプライシング の問題。α-トロポミオシンでは組織ごとに使うエキソンがちがい、ヒトの S M N 2
Ⅱは、RNA-Seq(mRNA を細かく切って塩基配列を読み、ゲノムのどこから来たかを当てはめて数える方法)の問題。読んだ短い配列(リード)の数から、mRNA の分子の数を考える。
どちらも、「数を足す・割る」だけで答えが決まる所 が多い。読み枠は塩基数の足し算、リードは長さで割り算、アイソフォーム(つなぎ方のちがう mRNA)は連立方程式。図と表の数字をていねいに拾うことが大事。
A 真核生物の転写は、RNA ポリメラーゼが単独で始めるのではなく、基本転写因子 (転写を始めるのに必要な、共通のタンパク質の集まり)が先にプロモーター (遺伝子の上流にある、転写の始まりを決める領域)に結合し、そこに RNA ポリメラーゼが結合して転写開始の複合体ができる、という順番がポイント。
そのあと RNA ポリメラーゼは DNA の二本鎖をほどきながら進み、片方の DNA 鎖 だけを鋳型にして、相補的な塩基をもつリボヌクレオチドをつないでいく。
つなぐ向きは、できる RNA の 5′→3′ の方向(新しいヌクレオチドは伸びている鎖の 3′ 末端に足される)。この5つの語句を全部入れて、「結合の順番 → 鋳型 → 向き」の順に3行ほどでまとめる。
答え 基本転写因子がプロモーターに結合し,RNAポリメラーゼがそこに結合して転写を始める。RNAポリメラーゼは二本鎖をほどき,片方のDNA鎖を鋳型として相補的なヌクレオチドを5′→3′の方向につなげ,RNAを合成する。(106字)
B エキソン1 と 6 は必ず使われ、エキソン2〜5 の4つはそれぞれ「使う」か「とばす」かの2通り。順番は入れかわらず、境目の位置も変わらないので、ちがう mRNA は4つの選び方の組み合わせで決まる。
2 × 2 × 2 × 2 = 2 4
全部とばす(1 と 6 だけ)場合も、全部使う場合も1種類として数える。デモでは実際に全部書き出して数え、2 4
C まず図1—1 から、平滑筋の mRNA が使うエキソンを読む:1a・2a・3・4・5・6b・7・8・9d(2b・1b・6a・9a・9b・9c はとばす)。
開始コドンは 1a の 192〜194 塩基目なので、1a の中で翻訳されるのは 305 − 191 = 114 285 番目のコドン で、その1文字目は開始コドンの1文字目から数えて 3 × 284 + 1 = 853
114 + 126 + 134 + 118 + 71 + 76 + 63 + 70 = 772
したがって終止コドンは 9d の 853 − 772 = 81
横紋筋(284 アミノ酸、…8-9a-9b)で同じ計算をすると 9b の 2〜4 塩基目、脳(281 アミノ酸、…8-9c)では 9c の 72〜74 塩基目になり、どちらも最後のエキソンの中に収まる。図の読みが正しいことの確かめになる。2a と 2b はどちらも 126 塩基(3の倍数)なので、入れかえても読み枠はずれない 。
D a:図1—2 で、エキソン7 の中の1文字が S M N 1 S M N 2
b:タンパク質 Y は S M N 1 S M N 1 S M N 2 エキソン7 を使う ことを促している。
c:人工核酸分子 X は領域B にくっついて Z の結合をじゃまし、それで病気の治療に有効(全長型が増える)。Z を外すとエキソン7 が使われやすくなるのだから、Z はふだんエキソン7 をとばす ことを促している。
d・e:患者は S M N 1 S M N 2
なお、全長型のアミノ酸配列が S M N 1 タンパク質のつくりは同じなのに、つなぎ方だけが変わる のがこの病気のしくみ。
E ヒトのゲノム(核相 n 3 × 10 9
F ポリ A 配列は A(アデニン)がたくさん連なった構造。これと相補的に結合する(塩基対をつくる)のは、DNA では T(チミン)。
T がたくさん連なった一本鎖 DNA(オリゴ dT)を材質に結合させておくと、ポリ A をもつ mRNA だけがくっつき、ポリ A をもたない rRNA や tRNA と分けられる。問われているのは塩基の名前なので、カタカナで答える。
G リード配列は、ゲノムの2本の鎖のどちらかに、5′→3′ の向きもこめて一致する所が探される。図1—4 のように「2本の鎖の全く同じ位置」に一致するのは、上の鎖を 5′→3′ に読んだ配列と、下の鎖(相補鎖)を 5′→3′ に読んだ配列が同じ ときである。
相補鎖を 5′→3′ に読むことは、「もとの配列の相補の塩基を、後ろから読む」こと。そこで、前半の5塩基を自由に決め、後半に「前半の相補を逆の順」で並べれば条件を満たす。例えば前半 AAGAA の相補 TTCTT を逆に読むと TTCTT なので、AAGAATTCTT となる。
このような配列は制限酵素の認識配列(例:GAATTC)によく見られる。10 塩基では前半の選び方の数 4 5 = 1024
答え AAGAATTCTT(特徴:相補鎖を5′→3′の向きに読んだ配列が,もとの配列と同じになる)
H (あ) mRNA はランダムに切られ、切れはしの一定の長さのリードが読まれる。同じ分子の数なら、長い mRNA ほど切れはしが多く、リードも多くなる 。リードの数は「分子の数 × エキソンの長さ」に比例するので、分子の数を比べるには、リードの数をエキソンの塩基数の合計で割る。
表1—2 で割り算すると、遺伝子1〜6 は 4.5・0.0625・3.33・0.060・4.67・5.0。いちばん大きいのが遺伝子6、いちばん小さいのが遺伝子4。
リードの数だけを見ると遺伝子3(10000)が最多、遺伝子2(50)が最少に見えるが、それは長さの影響を入れていない。とくに遺伝子2 と4 は割り算した値の差が 4% ほどしかないので、ていねいに計算する。
H (い) 4種類の mRNA が、どのエキソンを使っているかを整理する。エキソン1 と4 は x・y・z・w のすべてが使い、エキソン2 は x と z、エキソン3 は x と y が使う。
(あ) と同じように、1塩基あたりのリードが分子の数に比例するので、表1—3 を塩基数で割る:エキソン1〜4 は 16800 / 800 = 21 3600 / 600 = 6 3200 / 400 = 8 21000 / 1000 = 21
x + y + z + w = 21 , x + z = 6 , x + y = 8
エキソン1 と4 が同じ 21 になっていることは、どの mRNA もこの2つを必ず使うことと合っている。x = 0 z = 6 y = 8 w = 21 − 8 − 6 = 7
H (う) y = 8 − x , z = 6 − x , w = 7 + x
となり、どれも 0 以上なので 0 ≤ x ≤ 6
(2) は x + z = 6 y + w = 15 x < 7 + x 8 − x > 6 − x 6 − x < 7 + x x
(1) x < y x < 4 y > w 8 − x > 7 + x x < 0.5 x
エキソンごとのリードの数は、x 。リードだけでは x x
第2問 うつる腫瘍 — タスマニアデビルの泳動像・目印(MHC)を隠す細胞・生息数 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 タスマニアデビルの顔にできる悪性腫瘍が、実は腫瘍の細胞そのものが噛みつきで個体から個体へうつる ものだった、という話を、3つの実験から読みとる問題。
実験1は、マイクロサテライト(数塩基のくり返しで、くり返しの回数が個体ごとにちがう DNA)の長さを電気泳動で比べる親子判定・個体識別。実験2は、腫瘍で遺伝子 X X
この3つがつながると、「ほかの個体の細胞なのに、目印を出さないので拒絶されずに育つ」というしくみが見えてくる。前半の A〜C は、有袋類・PCR と cDNA の酵素・髄鞘についての知識問題。
A 有袋類が今オーストラリアに多いのは、「オーストラリアでだけ生まれたから」ではなく、他の大陸では残れなかったから と考える。
大陸は移動していて、オーストラリアは早い時期に他の大陸から切りはなされた。その時点ではまだ有胎盤類(胎盤で子を育てるなかま)が広がっておらず、そのあと入りこめなかった。オーストラリアの有袋類は競争相手のいないまま、いろいろな環境に合わせて多様化した(適応放散)。
一方、他の大陸では、あとから多様化した有胎盤類との競争に負けて、有袋類はほとんど姿を消した。「隔離」と「競争」の2つを入れて3行ほどにまとめる。
答え オーストラリア大陸は,有胎盤類が広く分布する前に他の大陸から分離して孤立したため,有胎盤類が侵入できず,有袋類が競争相手なしに多様な環境へ適応放散した。一方,他の大陸では有袋類は有胎盤類との競争に敗れて衰退した。(106字)
B PCR では、DNA を 90 ℃以上に熱して1本ずつにほどく操作をくり返すので、ふつうの酵素ではこわれてしまう。そこで熱に強い DNA ポリメラーゼが使われる。この酵素の遺伝子は、温泉のような高温の場所にすむ細菌(好熱菌)から見つかった。
cDNA は、mRNA を鋳型にして作る DNA。RNA から DNA を作るのは逆転写酵素で、その遺伝子は、RNA を遺伝子としてもち、感染した細胞の中で DNA に写しとるレトロウイルスから見つかった。
答え イ—DNAポリメラーゼ(耐熱性のもの),好熱菌(温泉などの高温の場所にすむ細菌) ウ—逆転写酵素,レトロウイルス
C 髄鞘は、ニューロンの軸索にグリア細胞が何重にも巻きついたもの。末梢神経ではシュワン細胞、中枢神経ではオリゴデンドログリア(オリゴデンドロサイト)が作る。
髄鞘は電気を通しにくいので、髄鞘のある所では興奮が起きず、髄鞘と髄鞘のすき間(ランビエ絞輪)でだけ興奮が起きる。興奮は絞輪から絞輪へとびとびに伝わる(跳躍伝導)ので、髄鞘をもつ有髄神経繊維は、もたない無髄神経繊維より伝導速度が大きい。
空欄3 は3か所あるが、どこも同じ「髄鞘」が入ることを確かめておく。
答え 1—オリゴデンドログリア(オリゴデンドロサイト),2—軸索,3—髄鞘,4—有髄,5—ランビエ絞輪,6—跳躍伝導,7—無髄,8—大きい(速い)
D マイクロサテライトは、父から1本・母から1本を受けつぐので、1頭につきバンドは2本(同じ長さなら1本)になる。子の2本のうち、1本は父の2本のどちらか、もう1本は母の2本のどちらかと一致するはず。
図2—2 のバンドの高さを上から 1〜6 と番号をつけると、個体7 は 1 と 5、個体8 は 2 と 6。子は「1 か 5」と「2 か 6」を1本ずつもつので、1-2・1-6・2-5・5-6 の4通り。
個体1〜6 の正常な組織 のバンドと比べる(腫瘍のバンドはその個体の型ではないかもしれないので使わない)。1 は 1・4、2 は 2・5、3 は 3・6、4 は 1・6、5 は 4・6、6 は 2・3。4通りに入るものを選ぶ。
E まず、4頭の腫瘍のバンドが全部同じ位置(2 と 4) で、しかも個体1〜8 のどの正常な組織の型とも一致しないことを押さえる。
(1) 自分の正常細胞からできたなら、腫瘍の型は自分の正常な型と同じになるはず。どの個体でもちがうので矛盾。(4) 1〜4 のどれかの細胞がもとなら、腫瘍の型はその個体の正常な型と同じになるはずだが、一致する個体がない。
(2)(3) は、腫瘍の型(2・4)が兄弟の親の型になる。個体1(1・4)と個体2(2・5)は、片方の親から 4 と 2 を、もう片方の親(1・5 の型)から 1 と 5 をもらえば生まれるので矛盾しない。個体3(3・6)と個体4(1・6)はどちらも 2 も 4 ももたないので、2・4 の親からは生まれない。
(5) 腫瘍の型は個体1〜8 の誰ともちがうので、別の個体から来たと考えても矛盾しない。
F 図2—3 の左で、腫瘍では遺伝子 X
戻るということは、遺伝子 X ということ(mRNA の量が戻ることだけでは、遺伝子の中に変異が無いことまでは言えない)。DNA はヒストンに巻きついてクロマチンを作り、きつく巻かれて凝縮していると転写が起きにくい。腫瘍では、X
薬剤 Y が何をするか(ヒストンの結合をじゃまする)を必ず答えの理由に入れる。
答え 腫瘍細胞でも遺伝子Xは失われていないが,ヒストンが結合してクロマチンが凝縮した状態になっているため転写が抑制され,mRNAがほとんど作られない。(72字)
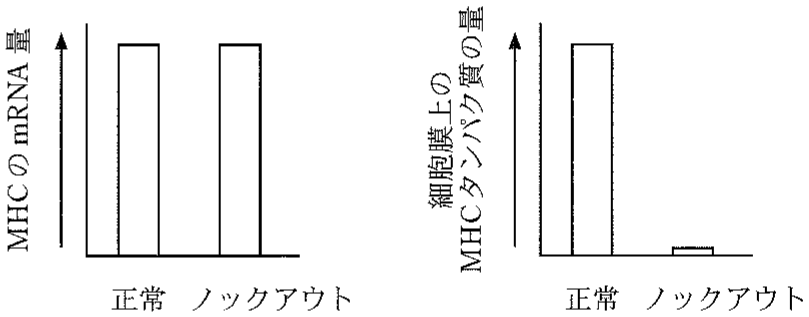
G 図2—4 で、ノックアウトマウスでは MHC の mRNA の量は正常と同じなのに、細胞膜の上の MHC タンパク質はほとんど無い。
(2):X X X
(1):染色体の上で近くにあるかどうかは、この実験の結果(量の変化)からは何も言えない。(5):遺伝子再編成は抗体や T 細胞受容体の遺伝子で起こるもので、MHC の遺伝子では起こらない。この2つが不適切。
H 実験2(腫瘍では X X
(3):腫瘍では X X
(1)(5):ノックアウトマウスは X X
I ちがう系統のマウスの皮膚を移植すると拒絶されるのは、系統ごとに MHC の型がちがい、移植先の T 細胞が移植片の細胞の MHC を「自分のものではない」と見分けて攻撃する(細胞性免疫)から。
X MHC タンパク質が細胞膜の上にほとんど出ていない (図2—4 右)。見分ける手がかりになる目印そのものが表に出ていないので、T 細胞は非自己だと認識できず、拒絶反応が起きない。
タスマニアデビルの腫瘍も X
答え 遺伝子Xが無いとMHCタンパク質が細胞膜上にほとんど提示されないため,移植先のT細胞が,系統ごとに異なるMHCを手がかりに移植片を非自己と認識できず,細胞性免疫による拒絶反応が起こらなかったから。(98字)
J この腫瘍は、噛みつきで腫瘍の細胞そのものがうつり 、MHC を出していないので相手の体で拒絶されない。絶滅しないためには、「うつる回数を減らす」か「うつってきた細胞を排除できる」ことが役に立つ。
(2) 攻撃性が低下する、(3) 争いが儀式化されて噛みつかなくなる、はどちらも噛みつきが減るのでうつりにくくなる。(1) は逆。
(5) NK 細胞(ナチュラルキラー細胞)は、MHC を出していない細胞を異常な細胞として攻撃する。MHC を隠しているこの腫瘍の細胞は、まさに NK 細胞のねらう相手。
(4) TLR(トル様受容体)は、細菌やウイルスなどの病原体に特有の成分を見分けるしくみ、(6) はウイルスに対する抗体で、どちらもデビル自身の細胞から生じたこの腫瘍を見分けるものではない。デモの模型では、腫瘍の個体1頭が一生のうちにうつす頭数 R0 が 1 を切ると、腫瘍の方が先に消える。
第3問 植物と温度 — 冬を覚える細胞・光の受容体が温度計になる 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 Ⅰは春化 (一定期間の低温を経験すると、そのあと長日で花芽をつけられるようになること)。葉を切りとって切り口から植物体を再生させる実験で、「どの細胞が低温を覚えるのか」「その記憶は細胞分裂や脱分化のあとも残るのか」を調べている。記憶の正体は、遺伝子 F L C
Ⅱはフィトクロム 。赤色光で Pr→Pfr、遠赤色光で Pfr→Pr に変わり、さらに Pfr→Pr は光がなくても起きる。変わる速さは「濃度 × 係数」で、係数のうち光による k 1 k 2 k 3 落ち着いた状態では、行きと帰りの速さがつり合う 、という1本の式で E・F が解ける。
A 図3—1 の6つの結果を、1つずつ「何が言えるか」に直す。
低温処理の前から広がっていた葉①は、植物体といっしょに低温を経験したのに、そこから再生した株は花をつけない。葉①の細胞は低温のとき分裂していなかった。一方、低温の後に(春化した茎頂の分裂で)できた葉②から再生した株は花をつける。
低温なしの株の葉を切りとり、切り口の細胞が分裂している間に低温にあてると、再生した株は花をつける。ところが、その切り口の部分を切り落とし、新しい切り口から再生させると花をつけない。低温のときに分裂していた細胞(とその子孫)だけが春化している と読める。
(1):葉②や、低温中に分裂した細胞は、そのあと何回も分裂して植物体を作っても春化したまま → 支持。(3):上のとおり支持。(2):植物体全体が春化していても葉①は春化していないので否定。(4):葉②の細胞は脱分化して再生しても花をつけるので否定。
(5):低温処理はすべて短日で行われていて、日長を変えた比べ方がないので判断できない。デモでは 32 通りの仮説をためし、6つの結果に全部合う仮説が「日長」の所だけちがう2通りになることを確かめている。
答え (1)○,(2)×,(3)○,(4)×,(5)?
B 花をつけるには、葉で花成ホルモンを作る ことと、茎頂でそれを受けとって応える ことの両方が要る。接ぎ木を使えば、作る側(葉を残した枝)と応える側(葉を全部とって茎頂だけにした株)を、別々の植物から組み合わせられる。
作る能力を調べるには、応える側を「確実に応えられる」春化した株にし、作る側を春化していない株の葉にする。花芽ができなければ、作る能力は春化で得られると判定できる。
応える能力を調べるには、作る側を「確実に作れる」春化した株の葉にし、応える側を春化していない株にする。花芽ができなければ、応える能力は春化で得られると判定できる。
どちらも適温・長日(ホルモンが作られる条件)で育てる。春化した株どうしの接ぎ木で花芽ができること(接ぎ木そのものが邪魔をしていないこと)を対照として確かめておくと、判定がはっきりする。デモでは、4つの仮説それぞれで2つの接ぎ木の結果の組がすべてちがうことを確かめている。
答え 春化した株と春化していない株を用い,葉を残した枝を,葉を全て除いた株に接ぎ木して適温・長日で育て,葉を除いた側の茎頂に花芽ができるかを調べる(葉が産生側,茎頂が応答側)。未春化株の葉を春化株に接いで花芽ができなければ産生能力,春化株の葉を未春化株に接いで花芽ができなければ受容・応答能力の獲得に春化が必要と判定する。春化株どうしの接ぎ木を対照とする。(175字)
C F L C クロマチンの状態が変わって 遺伝子がはたらかなくなり、②その状態が細胞分裂のあとも受けつがれる、の2つ。
(5) の X 染色体の不活性化は、2本ある X 染色体の一方が凝縮した状態(ヘテロクロマチン)になって遺伝子がはたらかなくなり、それが分裂しても同じ X 染色体で続く。2つの特徴がそろっている。
(1) はリプレッサーの結合・解離、(2) は代謝の切りかえ、(3) は植物ホルモン、(4) は mRNA のかたよりによる調節、(6) は集団の遺伝子頻度の話で、どれもクロマチンの状態の記憶ではない。
D 明所では赤色光で Pr が Pfr に変わるので Pfr が多く、暗所ではほとんど Pr のまま。野生型の胚軸は、明所で短く、暗所で長い。
フィトクロム完全欠損変異体は、Pr も Pfr も無いのに、明所でも暗所と同じく長くなる。つまり「フィトクロムが無い状態」=「伸びる状態」で、フィトクロムは伸長を止める 側にはたらいている。そして止めているのは、明所で多い方、つまり Pfr。
(1)(3) の「促進する」なら、欠損変異体は伸びないはず。(2) の「Pr が抑制」なら、Pr の多い暗所で短くなるはず。どれも合わない。さらに図3—3 で、温度が高いほど野生型が長くなるのは、あとの図3—4 で温度が高いほど Pfr が少ないことと合う。
E 赤色光だけを当てているので、遠赤色光による Pfr→Pr(k 2
k 1 [ P r ] = k 3 [ P f r ] ⟹ k 3 k 1 = [ P r ] [ P f r ] = 1 − f f
ここで f k 3 / k 1 0.25 , 0.667 , 1.5 , 4
k 1 k 3 1 16 , 1 6 , 3 8 , 1
答え 横軸に温度,縦軸に k3(27℃を1)をとり,12℃で約0.06(1/16),17℃で約0.17(1/6),22℃で約0.38(3/8),27℃で1の点を通る,温度が高いほど急に大きくなる右上がりの曲線(下に凸)をかく。
F 遠赤色光も当てると、Pfr→Pr の道が1本増える(k 2 > 0
k 1 [ P r ] = ( k 2 + k 3 ) [ P f r ] ⟹ f = k 1 k 1 + k 2 + k 3
k 1 k 2 k 3 f k 2 k 3
例えば k 2 = k 1 1 / ( 1 + 1 + 0.25 ) = 0.44 1 / ( 1 + 1 + 4 ) = 0.17
G 自然選択で進化したのなら、「高温のときに茎や葉柄を伸ばすと、生き残りや子孫の数で得をする」理由を考える。
高温のとき、地面の近くは照り返しや地面からの熱で特に暑い。茎や葉柄を伸ばして葉を地面から離し、葉どうしの間隔を広げれば、熱がこもりにくく風が通りやすくなり、蒸散による冷却も進む。葉の温度が上がりすぎるのを防げれば、熱による傷害を避けて光合成を続けられる。
このように、「伸びる → 葉の位置や広がりが変わる → 温度・光合成で有利」という筋道で、3行ほどにまとめる。まわりの植物より高く葉を出して光を得る、など別の筋道でも、高温と結びつけて合理的に説明できればよい。
答え 高温のとき茎や葉柄を伸ばして葉を地面から離し,葉どうしの間隔を広げると,熱がこもりにくく風通しがよくなって蒸散による冷却が進むため,葉の温度が上がりすぎず,高温による傷害を避けながら光合成を続けられるから。(103字)