— 38 —
生 物
第1問
次の文1から文3を読み,ⅠとⅡの各問に答えよ。
〔文1〕
カモノハシなどの 1 類やコアラなどの 2 類を除く大部分のほ乳類では,胎仔は胎盤を介して母体から供給される栄養分と酸素に依存して発育する。そのため,胎盤に深刻な異常が生じると,胎仔の発育は停止し死に至る。胎盤で母体の血液が胎仔血管に流れ込むことはなく,赤血球が母体の肺から胎仔の末梢組織へ酸素を直接届けることはできない。胎盤で胎仔が酸素を受け取ることができるのは,(ア)
〔文2〕
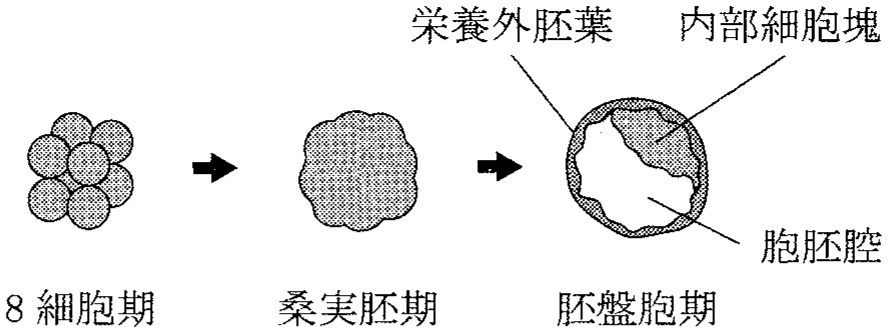
マウスの初期胚発生では,胚盤胞期に胞胚腔が形成され,それを囲む栄養外胚葉と,内側に存在する内部細胞塊の,2つの細胞集団が現れる(図1—1)。成熟した胚盤胞が子宮の内壁に着床すると,栄養外胚葉の細胞は胎盤や胎膜を形成するが,胎仔の体細胞や生殖細胞には分化しない。一方,内部細胞塊からは胎盤細胞への分化は起こらず,胎仔の体をつくる三胚葉が派生する。さらに,中胚葉の一部の細胞が生殖細胞へと分化する。胚性幹細胞(ES 細胞)は内部細胞塊から樹立され,その分化能をよく保持している。
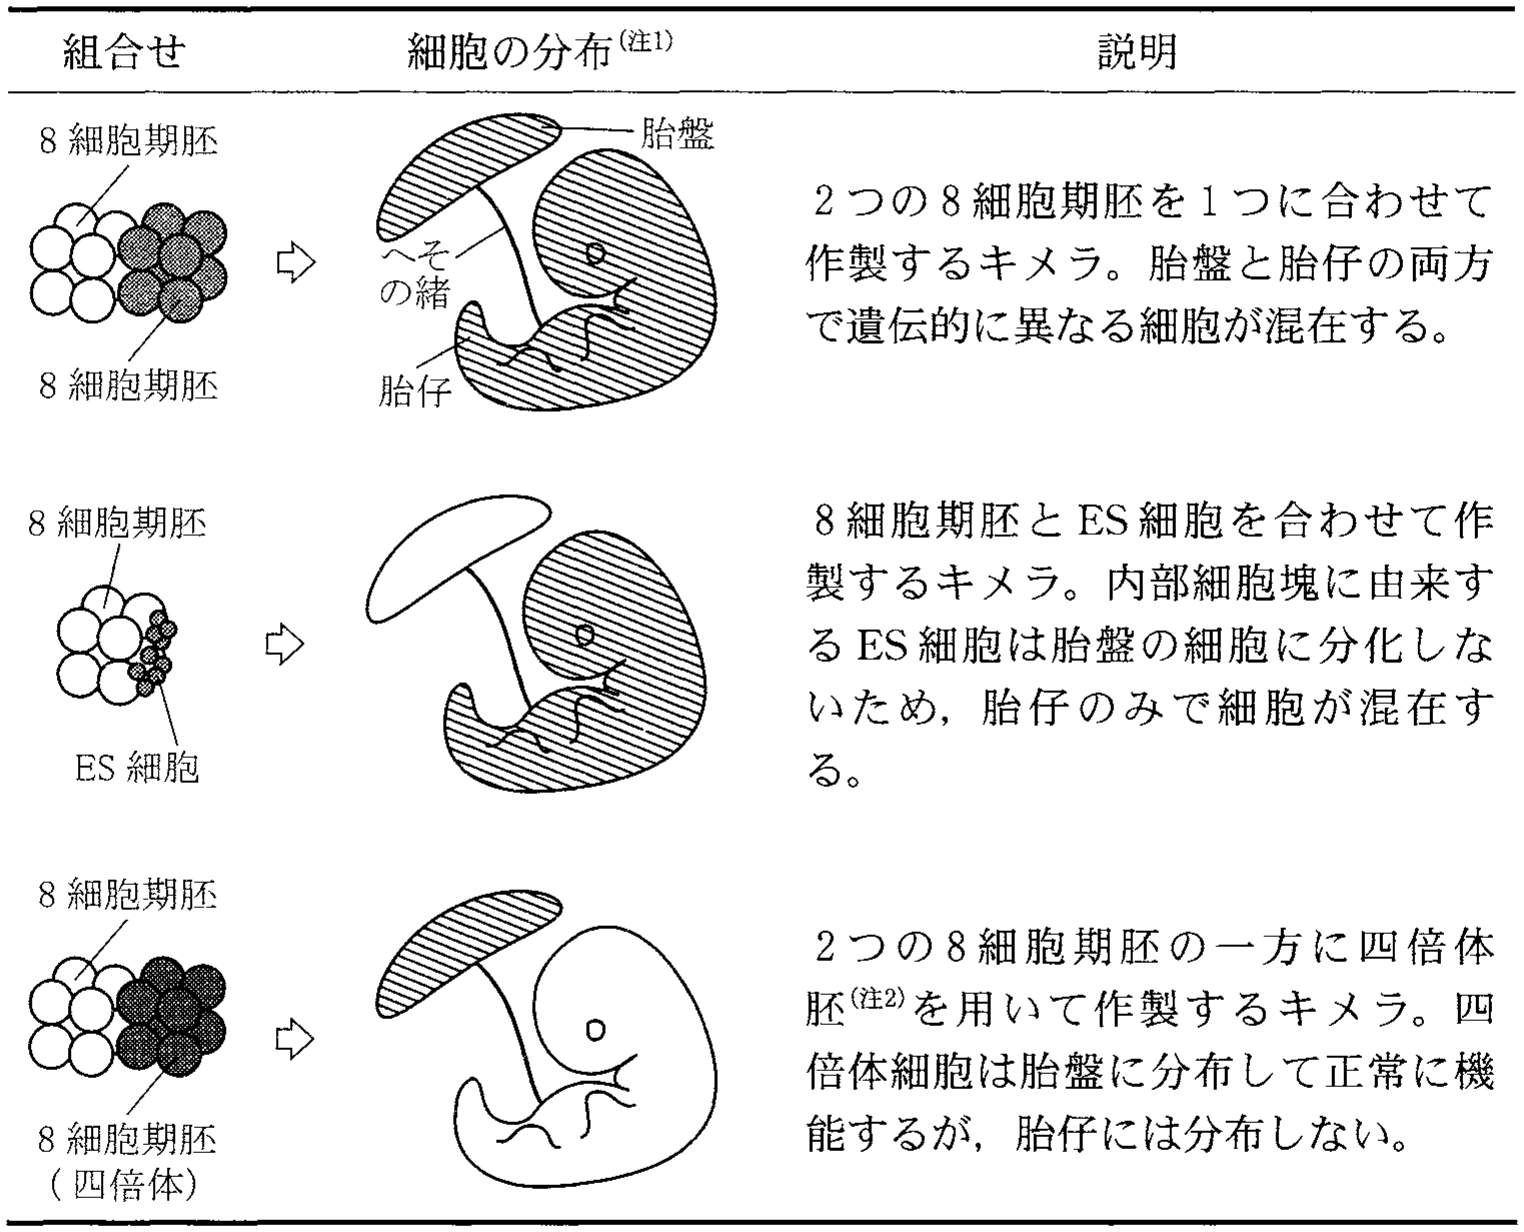
また,マウスでは,2つの8細胞期胚を合わせて1つの胚にしたり,8細胞期胚と ES 細胞を合わせて胚に ES 細胞を取り込ませたりすることによって,遺伝的に異なる細胞が混在する個体(キメラとよばれる)をつくることができる。キメラにおける細胞の分布様式は,表1—1に示すように,用いる細胞の組合せによって異なる。
— 39 —
図1—1 マウスの8細胞期から胚盤胞期までの発生を示した模式図 桑実胚期には割球の境界が不明瞭になる。胚盤胞は内部構造を表すために,その断面図を示した。
表1—1 異なる細胞の組合せで作製されるキメラ (注1) 斜線部分が遺伝的に異なる2種類の細胞からなる。
(注2) 2細胞期胚の割球を人工的に融合して四倍体化した胚を発生させたもの。
— 40 —
〔文3〕
ほとんどの動物は,精子に由来する父由来染色体と卵に由来する母由来染色体をもつ二倍体であり,多くの場合,どちらの染色体上の対立遺伝子もともに発現し得る。しかし,ほ乳類では,父由来染色体と母由来染色体は機能的に等価ではないことが知られている。たとえばある遺伝子座では,常に父由来染色体上の対立遺伝子のみが発現し,母由来の相同染色体上の対立遺伝子は不活性化されて発現しない(この逆のケースもある)。この現象は,親の始原生殖細胞において,その性に応じてオス型あるいはメス型の印が染色体上につけられるために起こるもので,「ゲノム刷り込み」とよばれている。(イ)
ここで,胎盤と胎仔の両方で発現する遺伝子 A
実験1 まず,バイオテクノロジーの手法を用いて遺伝子型 A a A a (ウ) A a A a
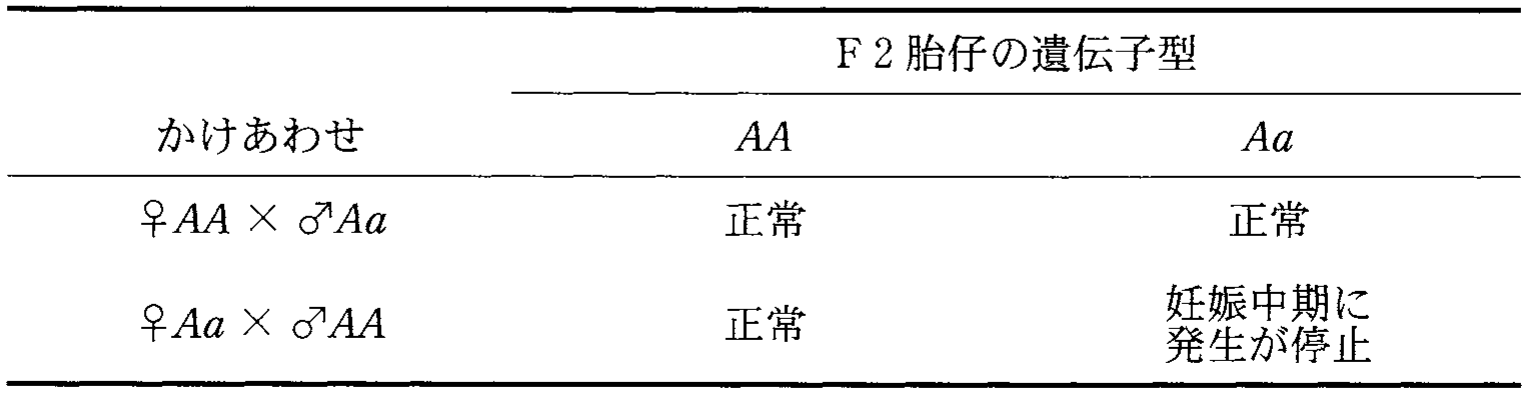
表1—2 A a — 41 —
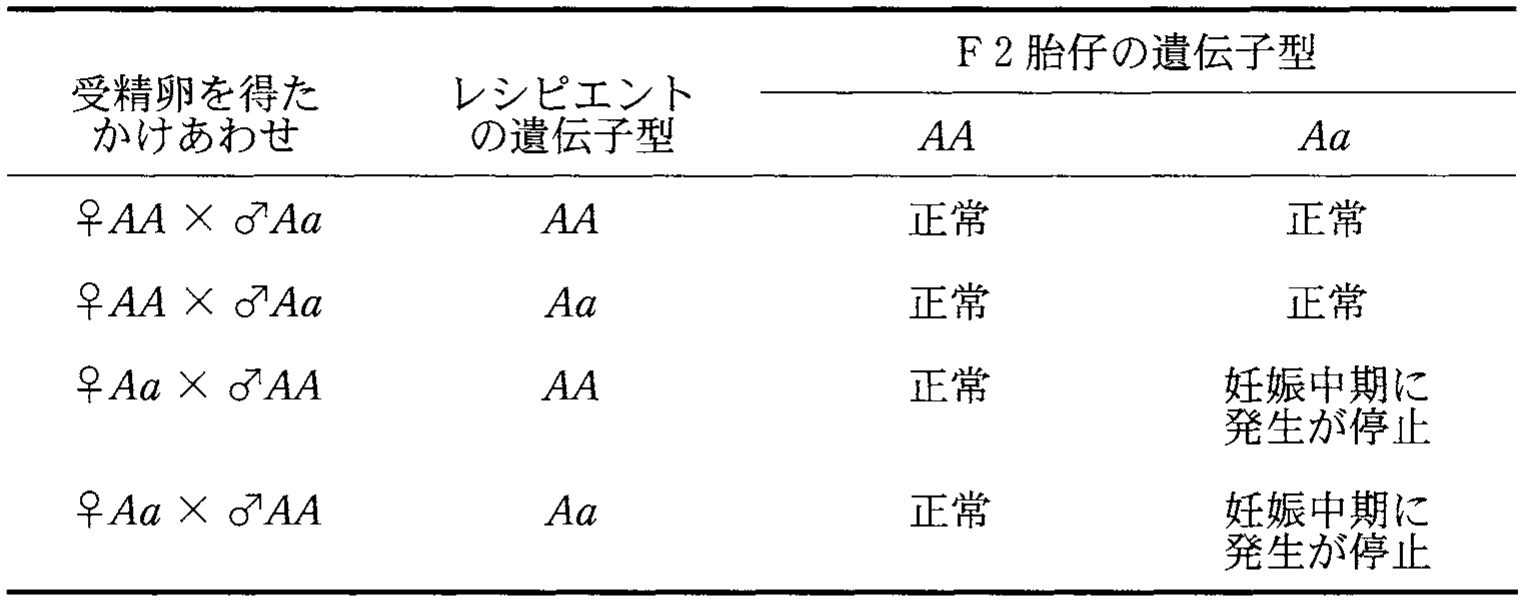
実験2 実験1の結果を受け,受精卵の移植実験を行った。F1 個体のかけあわせで得られる受精卵を体外に取り出し,異なる遺伝子型のメスマウス(レシピエントとよぶ)に移植して胎仔を発生させたところ,表1—3の結果が得られた。なお,レシピエント自身の卵は受精しないため,それに由来する胎仔は存在しない。また,胚操作によるダメージの影響はないものとする。
表1—3 胚移植実験で得られた F2 胎仔の表現型 実験3 実験1,2において発生が停止した F2 個体を精査したところ,そのすべてにおいて,胎盤の形態に顕著な異常が見られた。一方,発生が停止する直前の時期の胎仔には形態的な異常が認められなかった。このことから,「発生停止は胎盤の機能が不十分なために起こる二次的な表現型である」との仮説を立て,その検証のためのキメラ作製実験を計画した。キメラ作製実験でこの仮説を検証するには,(エ)
— 42 —
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 空欄1,2にそれぞれ適切な漢字二文字を入れよ。
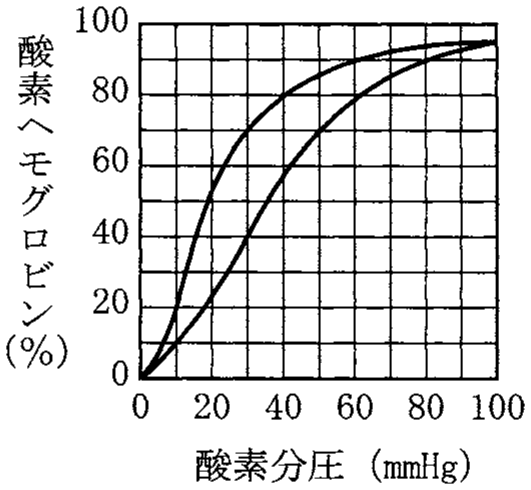
B 下線部(ア)について。図1—2は,胎盤における二酸化炭素分圧のときの,成体型ヘモグロビンと胎仔型ヘモグロビンの酸素解離曲線である。胎盤では成体型ヘモグロビンの40 %が酸素結合型(酸素ヘモグロビン)であり,胎仔末梢組織における酸素分圧が 10 m m H g 100 m L m L 100 m L 20 m L
図1—2 ヘモグロビンの酸素解離曲線 2本の曲線のいずれか一方が成体型ヘモグロビンの,他方が胎仔型ヘモグロビンの酸素解離曲線を表す。
Ⅱ 文2および文3について,以下の小問に答えよ。
A ES 細胞と四倍体8細胞期胚を合わせてキメラを作製した場合,どのような細胞の分布が期待されるか。表1—1を参考に,1行程度で答えよ。
B 下線部(イ)について。マウスでは,二倍体である体細胞の核をもちいた核移植により,正常なクローン個体を得ることができる。しかし,精原細胞の核を移植してクローン胚を作製した場合には,精原細胞も二倍体であるにもかかわらず正常な個体まで発生するものはまったく得られない。その理由を3行程度で答えよ。
— 43 —
C 下線部(ウ)について。以下は,A a A
考察:かけあわせに用いたオスキメラ個体において,3 の 4 %は野生型8細胞期胚に由来する細胞であった。
D 実験2により,A a
E どちらも遺伝子型が A a a a A a
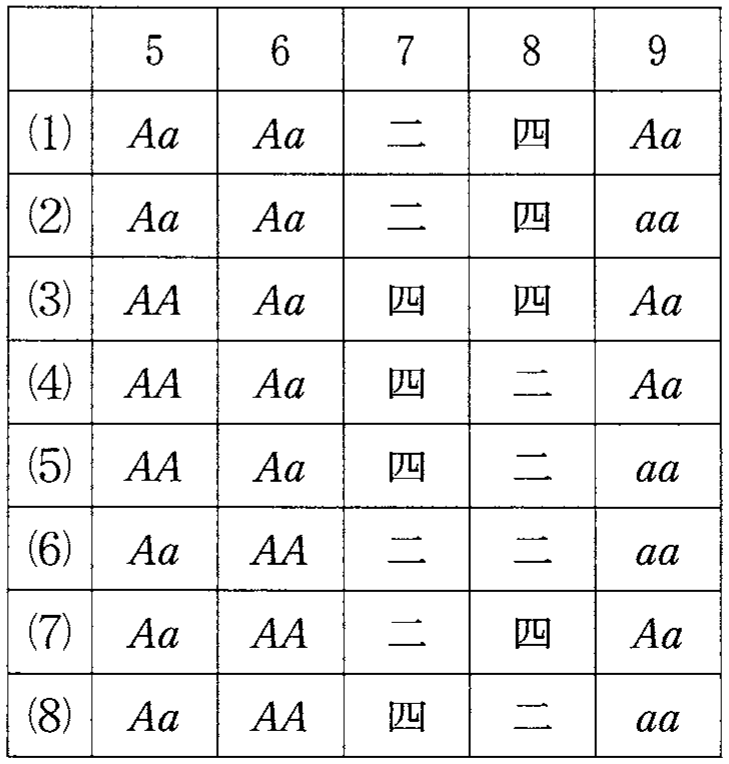
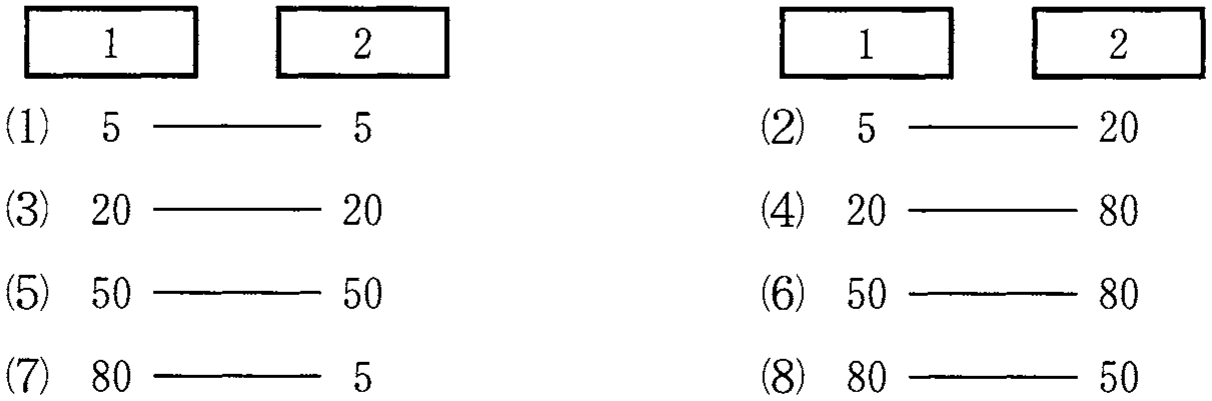
F 下線部(エ)について。表1—1を参考に,このキメラ作製実験に関する次の考察の空欄5〜9に当てはまる語の組合せで正しいものを以下の表からすべて選び,(1)〜(8)の番号で答えよ。ただし,四倍体胚の遺伝子型も,便宜上それらが由来する二倍体胚の遺伝子型を用いて表すものとする。
考察:遺伝子型 5 のメスと遺伝子型 6 のオスとのかけあわせから得られる8細胞期胚(7 倍体)と,遺伝子型 A A 8 倍体)を用いてキメラを作製する。妊娠後期まで生き残ったキメラの遺伝子型を解析し,遺伝子型 9 の細胞だけからなる正常な胎仔が確認されれば,胎仔の形態形成や体細胞の生存には遺伝子 A
— 45 —
第2問
次の文1と文2を読み,ⅠとⅡの各問に答えよ。
〔文1〕
植物は,土壌から根を通して,さまざまな無機養分を吸い上げて利用している。この無機養分の中でも主要なものの一つに,無機窒素化合物が挙げられる。
土壌に存在する無機窒素化合物のかなりの部分は,(ア) N H 4 + N 2 N H 4 +
土壌の N H 4 + N O 2 − (イ) N O 2 − N O 3 − N H 4 + N O 3 − N O 3 − N O 3 − N O 2 − N H 4 + (ウ) N H 4 +
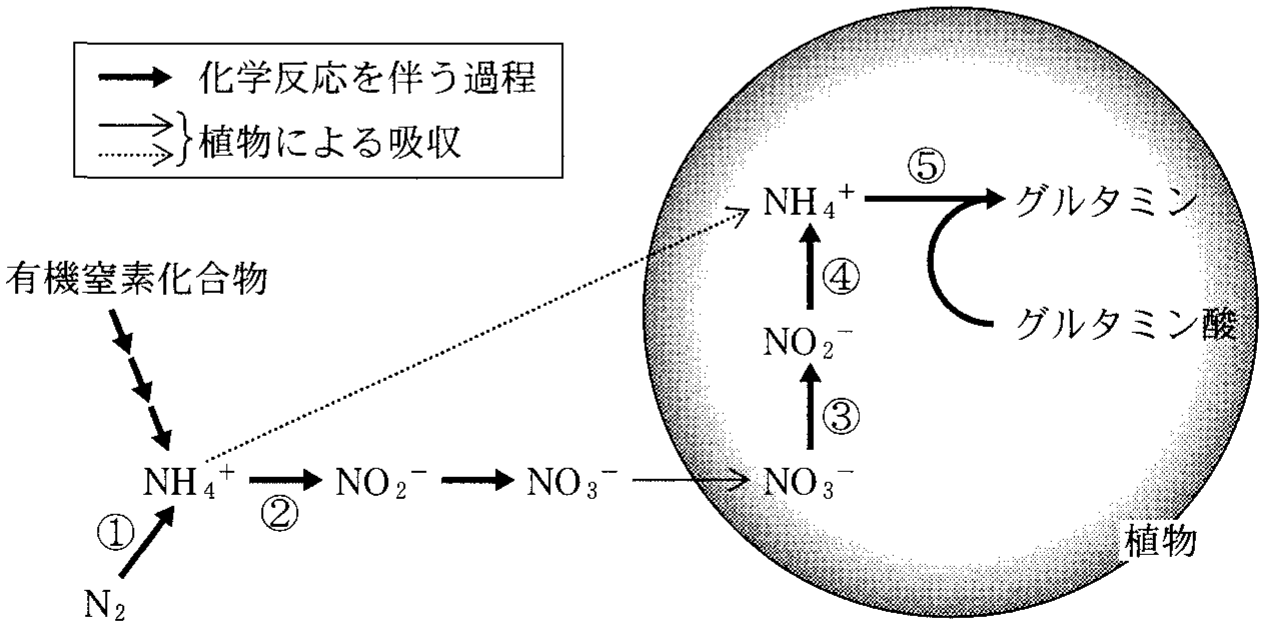
図2—1 植物の窒素同化に至る土壌中と植物体内における窒素化合物の変換の流れ — 46 —
〔文2〕
マメ科植物の根に根粒菌が感染すると,組織の一部で細胞分裂が引き起こされる。細胞分裂により細胞集塊が形成され,その中に根粒菌が入り込んで増殖する。この細胞集塊は,やがて丸い瘤のような構造体に発達する。これが根粒である。
根粒の中では,根粒菌が窒素固定を行い,N 2 (注1) (エ)
(注1) ミヤコグサは小型のマメ科植物で,遺伝学的解析によく用いられる。
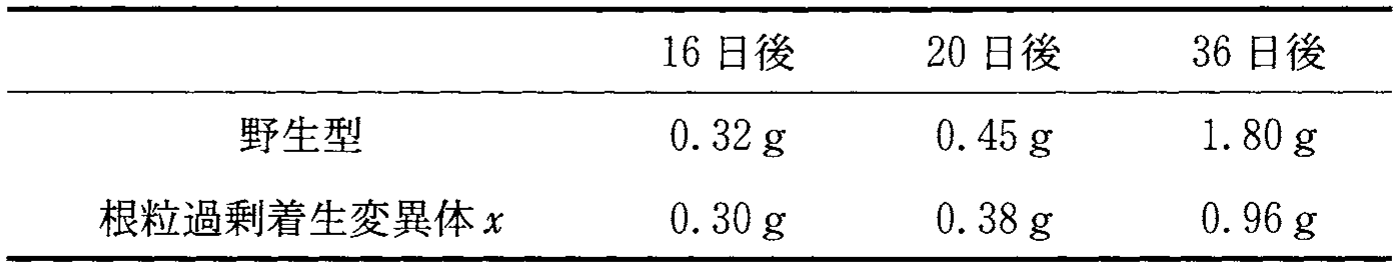
実験1 ダイズの根粒過剰着生変異体 x x x
表2—1 ダイズの野生型と根粒過剰着生変異体 x — 47 —
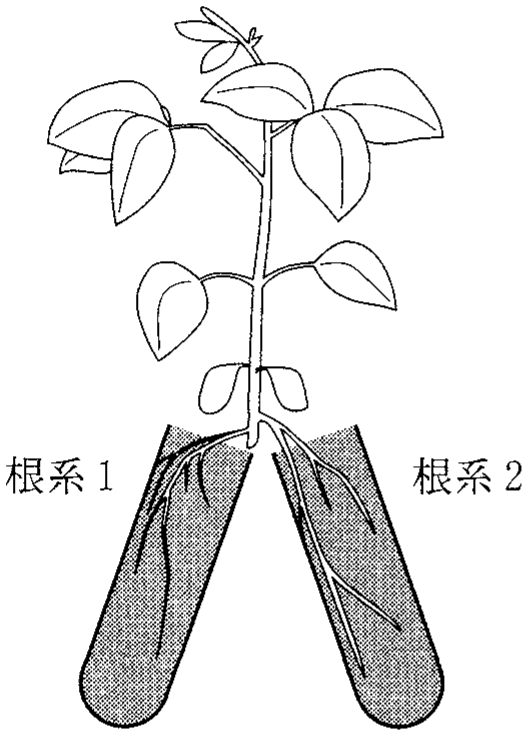
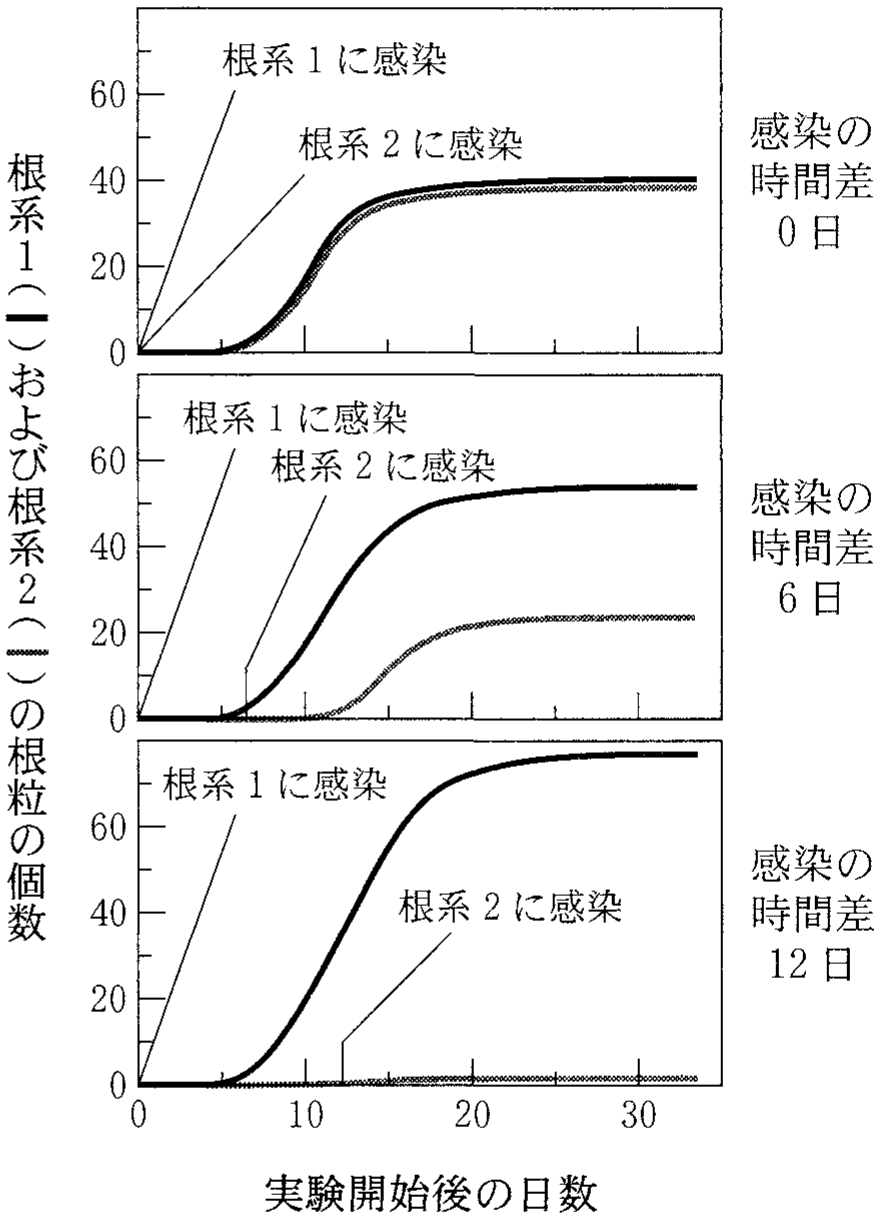
実験2 発芽直後のダイズの主根を切り取り,発根を促すことによって,根系が大きく2つに分かれた植物体を用意した。図2—2のように,これらの根系を別々の容器に入れ,それぞれに独立に根粒菌を感染させられるようにした。2つの根系に同時にあるいは時間差をつけて根粒菌を感染させ,各根系に生じた根粒の数の変化を調べたところ,図2—3に示すような結果が得られた。
図2—2 根系が2つに分かれたダイズ 図2—3 ダイズの2つの根系に時間差をつけて根粒菌を感染させたときの根粒数の変化 根系1と根系2の根粒数をそれぞれ黒色と灰色の曲線で表す。
— 48 —
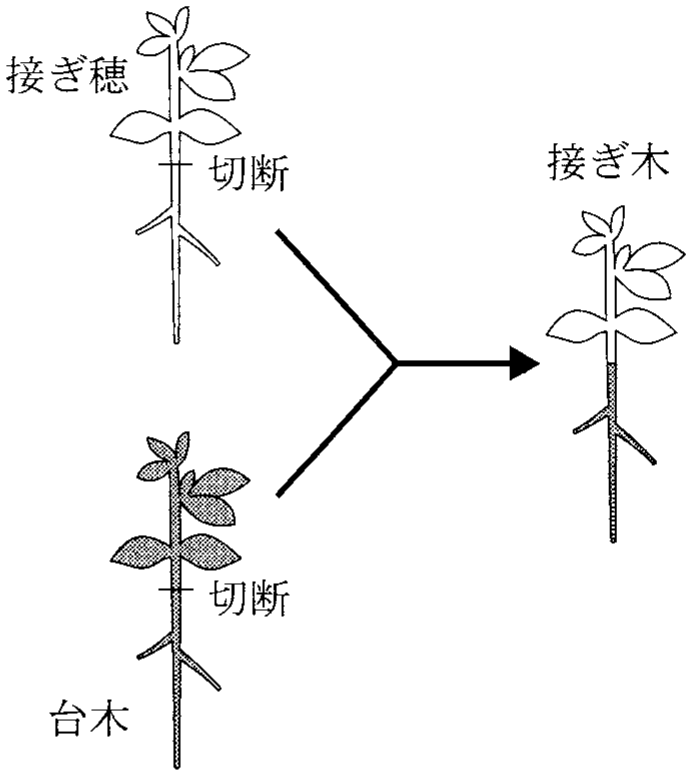
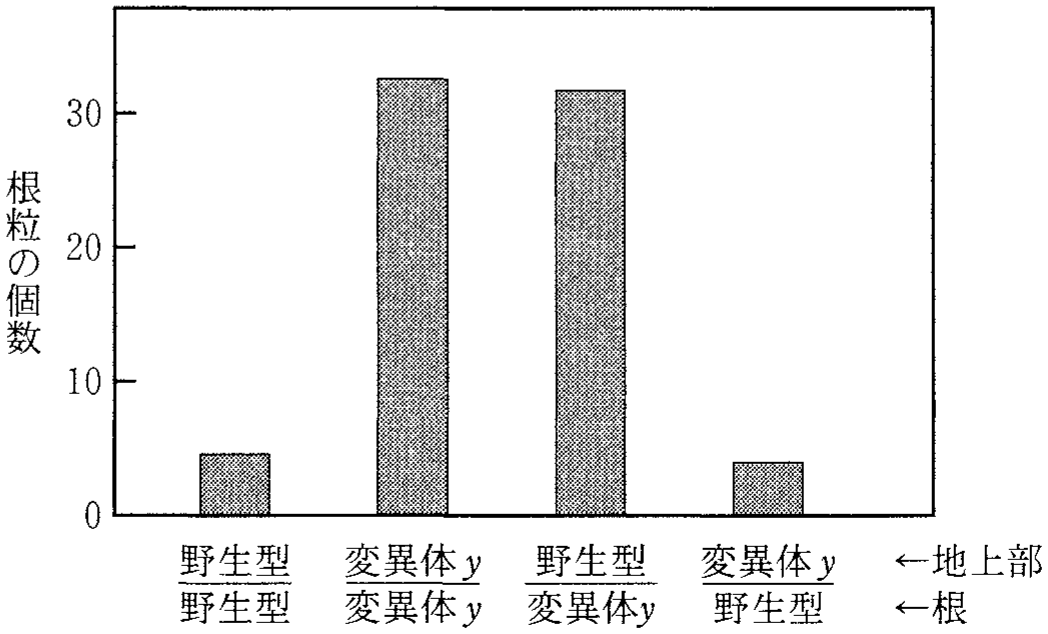
実験3 ミヤコグサの根粒過剰着生変異体 y y
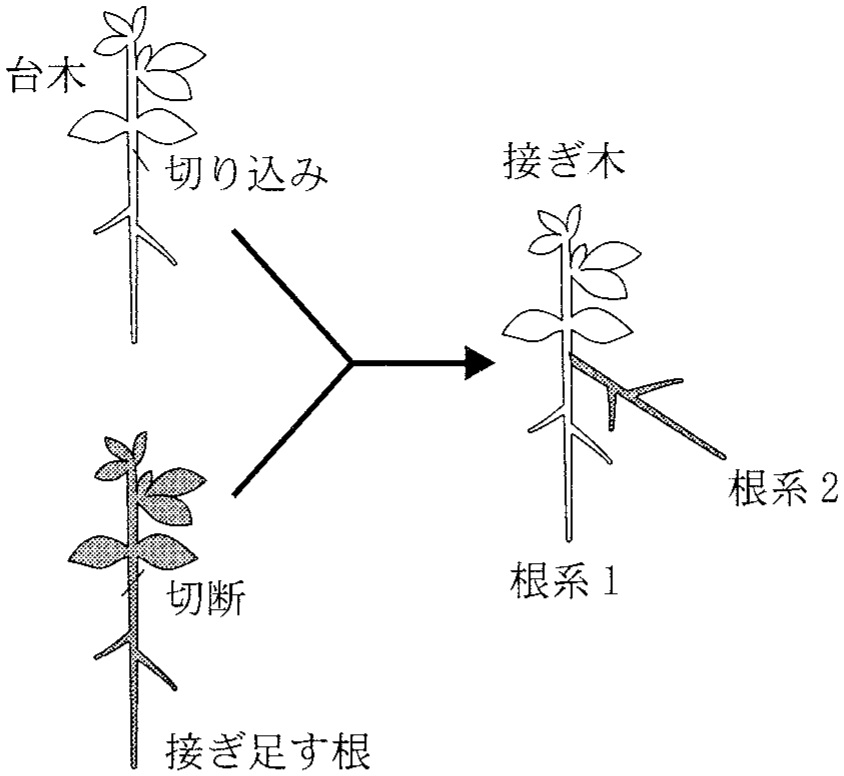
図2—4 地上部と根が遺伝的に異なる植物体を作出するためのミヤコグサの接ぎ木 図2—5 地上部と根が遺伝的に異なるミヤコグサにおける根粒形成 — 49 —
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。次の物質のうち,窒素を含む有機化合物はどれか。該当するものすべてを選び,過不足なく答えよ。
RNA,ATP,グリコーゲン,コラーゲン,脂肪,DNA,乳酸,尿酸
B 下線部(イ)について。N O 2 − N O 3 − N O 2 −
N O 2 − + 1 2 O 2 ⟶ N O 3 − となるが,実際には電子伝達系に電子を与える反応(電子供与反応)と電子伝達系から電子を受け取る反応(電子受容反応)から成り立っている。この電子供与反応と電子受容反応を,[ H ] e −
C N O 2 − N O 3 −
D 下線部(ウ)について。グルタミン合成酵素による反応は,通常,植物の生育にとって必須である。実際,グルタミン合成酵素阻害剤のグルホシネートは,除草剤として用いられている。グルホシネートで植物を処理すると,窒素同化が遮断されるのと同時に,N H 4 + N H 4 + N H 4 +
— 50 —
Ⅱ 文2について,以下の小問に答えよ。
A 実験1について。盛んに成長している植物では,乾燥重量が2倍になるのにかかる日数(ここでは倍加日数と呼ぶ)がほぼ一定している。そのため,植物間の成長速度を比較するには,倍加日数がよい指標となる。表2—1の結果から,野生型と変異体 x
B 実験2では,根粒菌感染の時間差によらず,根系1と根系2の根粒の総数は最終的にほぼ同じで,一定していた。この理由を下線部(エ)のしくみにもとづいて考察し,4行程度で説明せよ。
C 実験3の結果は,タンパク質 Y が根で根粒数の調節にはたらくことを示している。下線部(エ)のしくみにもとづくと,Y は段階(1)または段階(3)に関わっていると考えられる。このどちらであるかを知るために,図2—6のような接ぎ木を野生型と変異体 y y y y
— 51 —
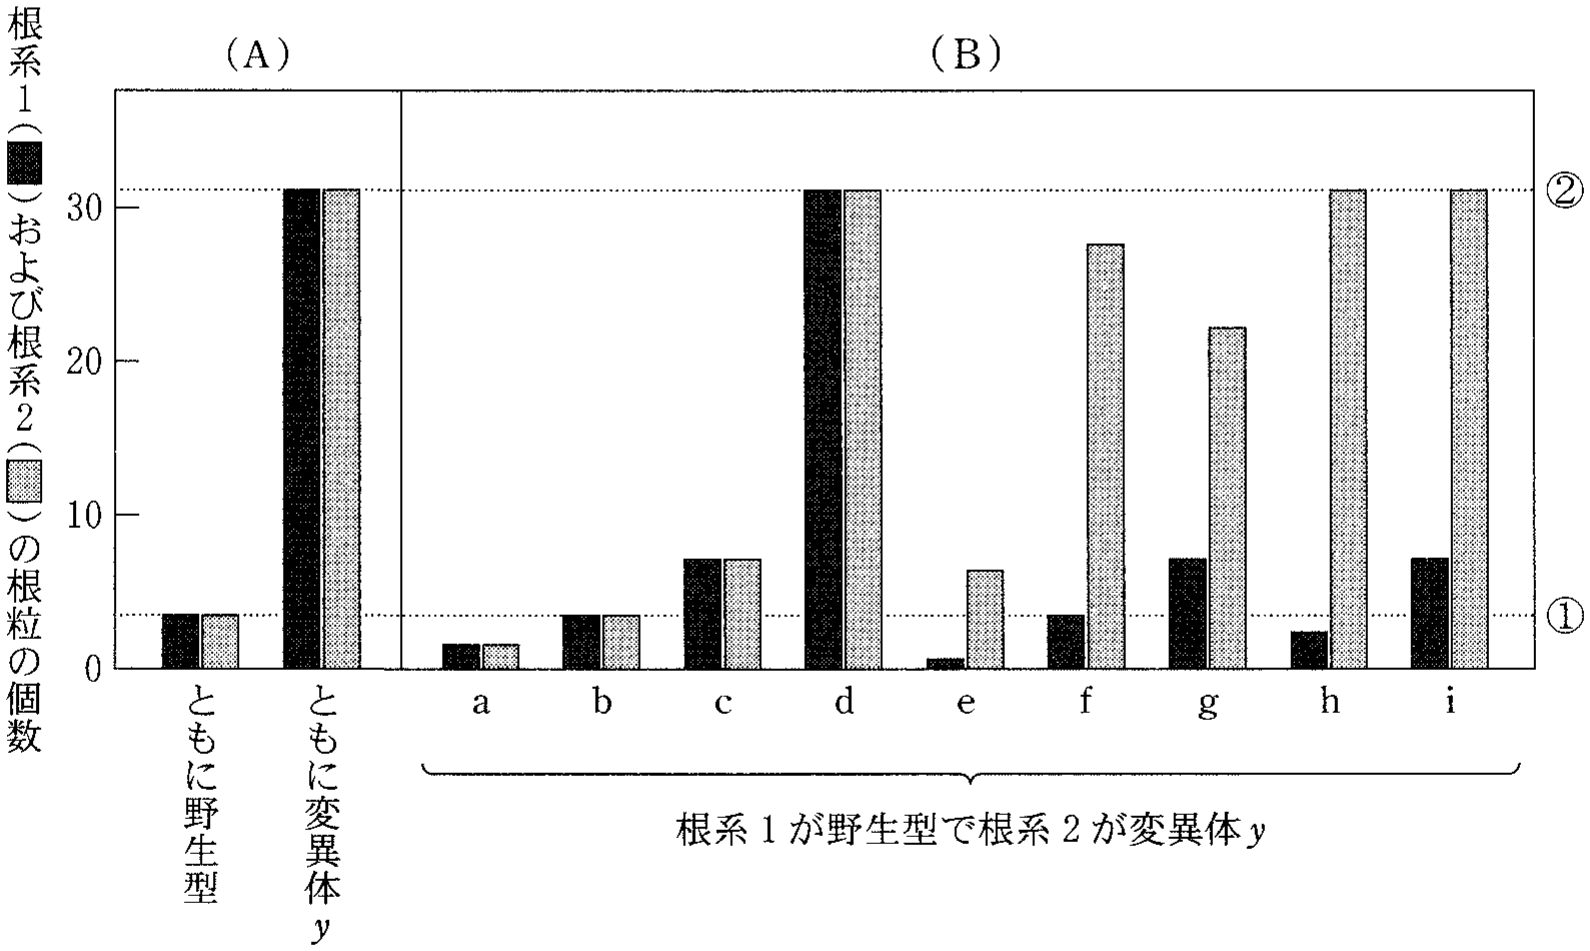
図2—6 遺伝的に異なる2つの根系をもつ植物体を作出するためのミヤコグサの接ぎ木 図2—7 遺伝的に異なる2つの根系をもつミヤコグサにおける根粒形成 根系1と根系2の根粒数をそれぞれ黒色と灰色の柱で表す。また比較のために,(A)の野生型どうしの接ぎ木実験における根系当たり根粒数のレベルと,変異体 y
— 53 —
— 55 —
第3問
次の文1から文3を読み,ⅠからⅢの各問に答えよ。
〔文1〕
(ア) (イ)
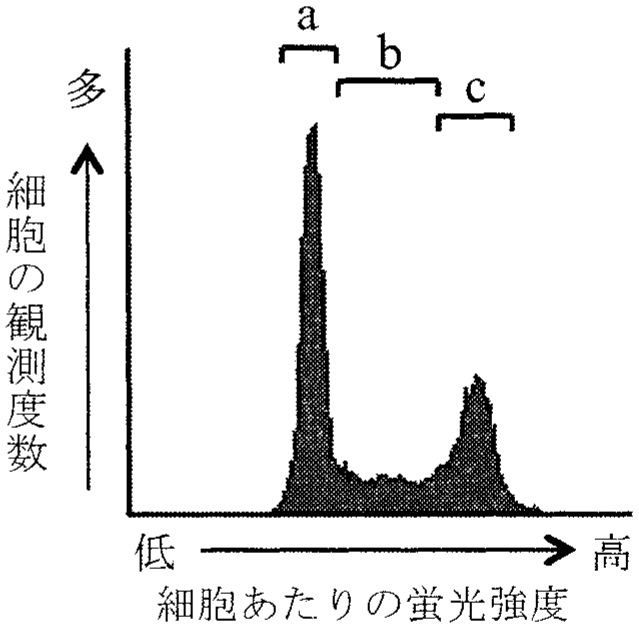
実験1 増殖中のヒト培養細胞の集団から,その一部を採取し,DNA と結合すると蛍光を発する色素を用いて染色した。この方法を用いると個々の細胞内の DNA 量を蛍光強度として検出することができる。その結果,図3—1に示すようなグラフが得られた。
図3—1 細胞あたりの蛍光強度と細胞の観測度数の関係 〔文2〕
細胞周期が正しく進行するには,細胞周期の各段階がそれぞれ誤りなく完全に終了した後に,次の段階に移行する必要がある。たとえば,DNA 複製が完了する前に細胞分裂が始まると,生じる娘細胞は完全な染色体 DNA を引き継ぐことができず,結果として細胞増殖に重大な影響が出てしまう。このようなことが起こらないように,細胞は,細胞周期の各ステップが完全に終了したかどうか,異常が起きていないかどうかを確認する機構を有している。このような細胞周期監視機構の存在は,最も単純な真核生物の一種である出芽酵母(以後,酵母とよぶ)を用いた実験によって解明された。自然界で酵母は二倍体として存在するのみならず,染色体を一組のみもつ一倍体として生育することもできる。一倍体細胞では,各遺伝子が細胞あたり一つずつ存在するため,遺伝子変異が起こると,その影響が直接,細胞の表現型として現れる。このような性質は,特定の機能をもつ遺伝子を同定するのに有用であることから,実験では主に一倍体の酵母が用いられている。
— 56 —
正常な酵母は,X 線照射によって染色体の2本鎖 DNA が切断されると,損傷部位と同じ配列をもつ DNA を利用して修復する。このような修復は,主に細胞周期の G2 期で起こることが知られているが,これは染色体の損傷を修復する際に DNA 複製によって生じたもう一組の染色体を利用するからである。一方,G1 期や M 期の酵母細胞は,X 線による DNA 損傷を修復することができず,そのほとんどが死滅してしまう。DNA 損傷に対する細胞応答の制御には,さまざまな遺伝子が関与することが知られているが,その多くが一倍体酵母細胞を用いた解析によって同定された。
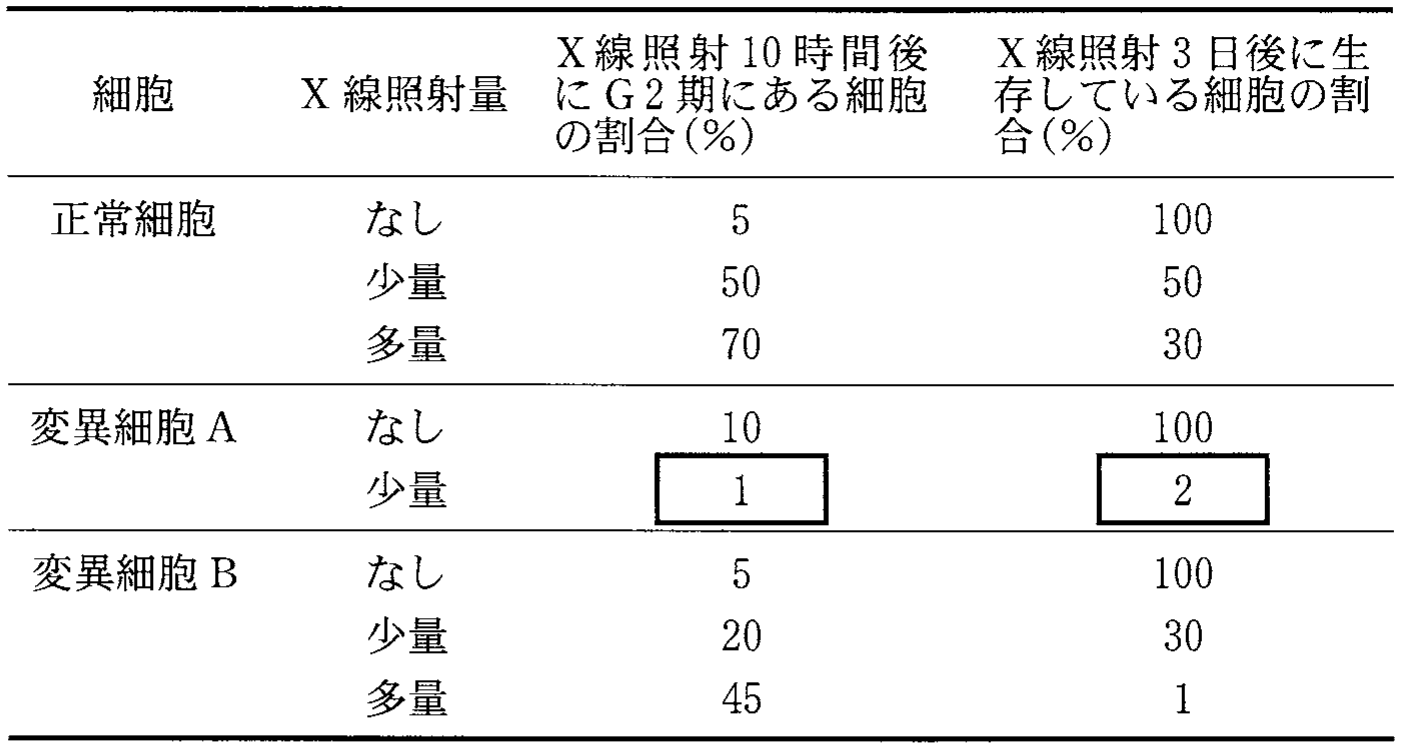
実験2 盛んに増殖している酵母を寒天培地上に散布して X 線を照射し,その10時間後に,G2 期にある細胞の割合を定量的に計測した。また,X 線を照射してから3日後に,形成されたコロニー(生存した細胞が増殖してできた塊)数をカウントし,細胞の生存率を計測した。その結果,表3—1(上段)に示すように,正常な酵母細胞では,少量の X 線照射によって,G2 期にある細胞の割合が著しく増加し,最終的に50 %の細胞が生き残ることがわかった。また,多量の X 線を照射すると,G2 期にある細胞の割合がさらに増加した。一方,DNA 損傷を修復する酵素が完全に機能を失っている変異細胞 A や,未知の遺伝子に欠失がある変異細胞 B では,表3—1(中段,下段)に示す結果となった。
— 57 —
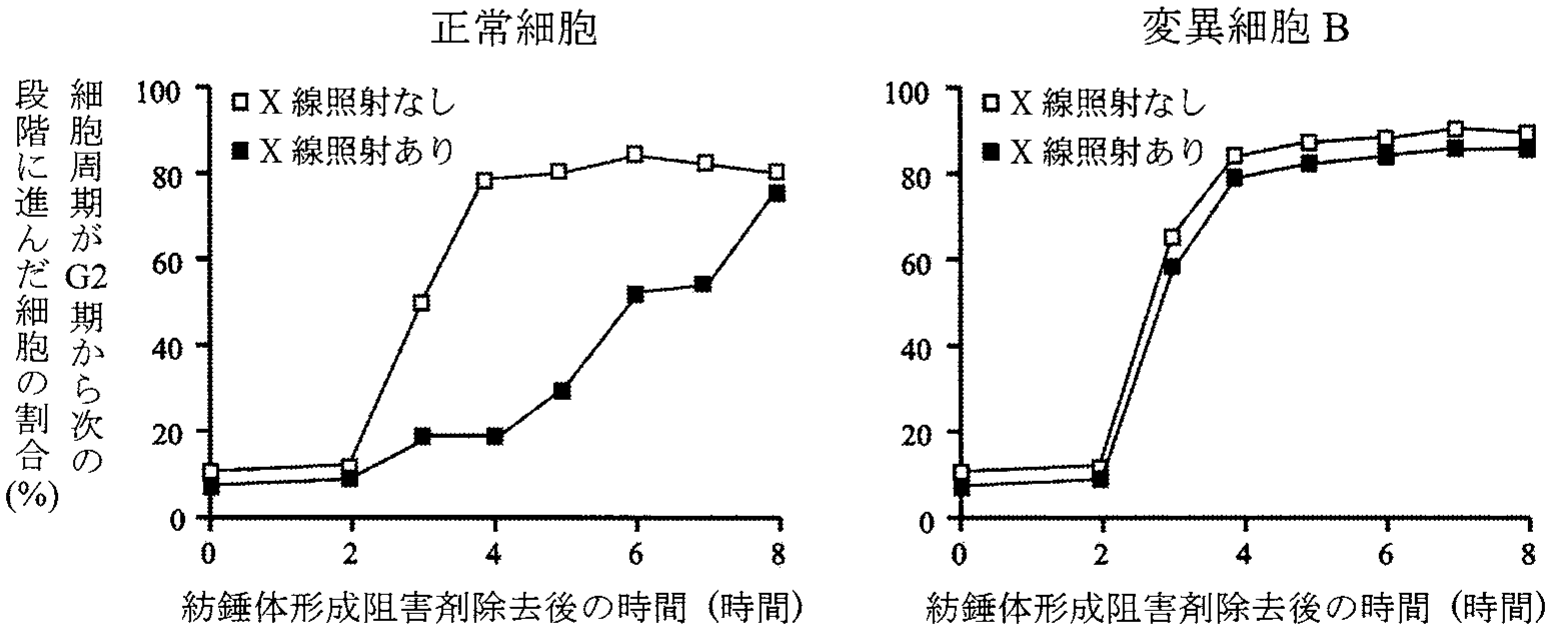
表3—1 X 線照射後の細胞周期分布および細胞生存率の変化 実験3 次に,紡錘体形成を阻害する特殊な薬剤で処理することによって細胞周期を人工的に G2 期で停止させた酵母細胞(正常細胞および変異細胞 B)に X 線を照射し,その後直ちに薬剤を除去して培養を続けた。1〜2時間おきに細胞を観察して,細胞周期が再び回り始め G2 期から次の段階へ進んだ細胞の割合を調べたところ,図3—2のような結果が得られた。なお,酵母の細胞周期は1周期が約2時間である。
図3—2 紡錘体形成阻害剤除去後に細胞周期が進行した細胞の割合 X線を照射した細胞および未照射の細胞から得られたデータをそれぞれ■と□で示す。
— 58 —
〔文3〕
細胞内で,遺伝情報にもとづいて合成されるタンパク質の一部は酵素であり,増殖や分化,代謝など,多彩な細胞機能の調節に重要な役割を果たしている。酵素活性をもつタンパク質は,酵素として働く領域や,その活性を制御する領域など,異なる機能をもつ複数の領域から構成されているものが多い。人工的に遺伝子変異を導入して,タンパク質の特定の領域のみを欠失させることで,酵素タンパク質分子内の各領域が,どのような機能を有しているかを詳細に解析できる。
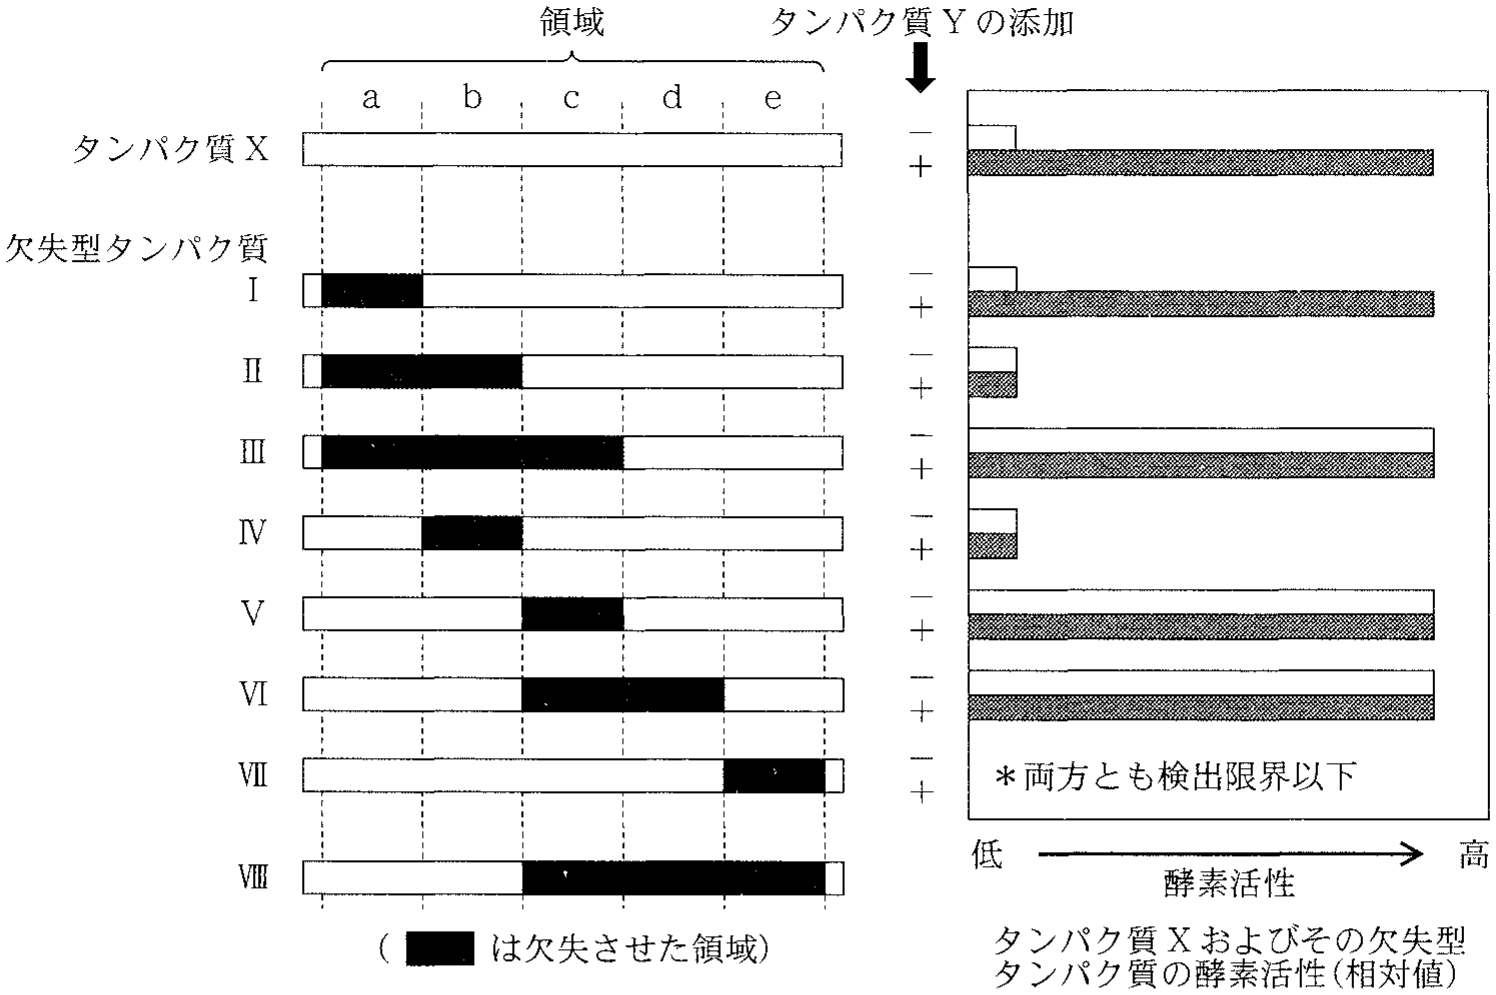
実験4 マウスの細胞内に存在するタンパク質 X は,5つの領域(a〜e)から構成されるタンパク質分子であり(図3—3左上),分子内のどこかに酵素として働く領域をもっている。このタンパク質 X の酵素活性を調節するメカニズムを明らかにするため,細胞内でタンパク質 X と特異的に結合する分子を探索したところ,新たなタンパク質 Y が得られた。タンパク質 Y は,ふだんは細胞内にほとんど発現していないが,ホルモン Z で細胞を刺激すると,その発現量が著しく増加することがわかっている。そこで,タンパク質 Y がタンパク質 X の酵素活性にどのような影響を与えるかを調べるため,以下の実験を行った。
まず,タンパク質 X およびタンパク質 Y を,バイオテクノロジーの手法を用いて大腸菌内で大量合成し,別々に精製した。得られた各タンパク質を試験管内に少量ずつ取り分け,タンパク質 X のみが存在する状態,およびタンパク質 X とタンパク質 Y の両方が存在する状態で,タンパク質 X の酵素活性を測定した。また同時に,タンパク質 X 分子内の5つの領域(a〜e)をさまざまに欠失させた7種類のタンパク質(欠失型タンパク質Ⅰ〜Ⅶ)を作製して,同様の実験を行ったところ,図3—3の棒グラフのような結果となった。ただし,反応に用いた各タンパク質の量や酵素活性の測定条件は同一である。また,タンパク質 X の a〜e 領域以外の部分に特別な機能はなく,タンパク質 Y はタンパク質 X の酵素領域とは直接結合しないことがわかっている。
— 59 —
図3—3 タンパク質 X と各欠失型タンパク質の構造(左)およびタンパク質 Y 添加による酵素活性の変化(右)(「+」および「−」は,タンパク質 Y の有無を示す) — 60 —
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。以下の(1)〜(4)の文章のうち,間違っているものをすべて選んで,その番号を記し,それぞれについて,どこが間違っているかを簡潔に説明せよ。
(1) 真核生物の核 DNA は,ヒストンとよばれるタンパク質に巻きついた状態で存在している。
(2) 原核生物の RNA ポリメラーゼはプロモーターに直接結合するが,真核生物の RNA ポリメラーゼは,プロモーター領域に結合し,転写する際に,基本転写因子を必要とする。
(3) 免疫グロブリンの多様性は,主として,免疫グロブリン遺伝子から転写される RNA が選択的スプライシングを受けることで生み出されている。
(4) 6塩基対の配列を認識する制限酵素を用いて染色体 DNA を処理した場合,切断される塩基配列の出現頻度は,計算上,4096塩基対に1回である。
B 下線部(イ)について。細胞周期の各期(G1,G2,S,M)の細胞は,図3—1に示す領域 a〜c のうち,どの領域に含まれるか。G1—○領域,G2—□領域,のように答えよ。
Ⅱ 文2について,以下の小問に答えよ。
A 表3—1の空欄1および空欄2に入る数字の組合せとして最も適切なものを以下の(1)〜(8)から1つ選べ。
— 61 —
B X 線照射後の細胞の生存率が,正常細胞と比較して変異細胞 B で低下しているのはなぜか。表3—1および図3—2で示した実験結果をもとに考察し,3行程度で説明せよ。
C 変異細胞 B で欠失している遺伝子が,DNA 損傷修復酵素をコードする遺伝子ではないことを確認するために,どのような実験を行ったらよいか。紡錘体形成阻害剤を利用した実験を考案し,予測される結果とともに3行程度で説明せよ。
Ⅲ 文3について,以下の小問に答えよ。
A タンパク質 X 分子内で酵素としての活性をもつのは,a〜e のうち,どの領域であると考えられるか,記号で答えよ。
B タンパク質 Y は,タンパク質 X のどの領域に結合すると予想されるか,記号で答えよ。
C タンパク質 X 分子内の c 領域は,酵素活性の調節において,どのような役割を果たしていると推測されるか。最も適切なものを以下の(1)〜(6)から1つ選べ。
(1) タンパク質 X とタンパク質 Y の結合を促進する。
(2) タンパク質 X とタンパク質 Y の結合を抑制する。
(3) タンパク質 X の酵素活性を増強する。
(4) タンパク質 X の酵素活性を抑制する。
(5) タンパク質 X の立体構造を安定化する。
(6) タンパク質 X の立体構造を不安定化する。
D 細胞をホルモン Z で刺激するとタンパク質 X の酵素活性は,どのように変化すると考えられるか。タンパク質 X 分子内の各領域による酵素活性の制御メカニズムを含めて,3行程度で説明せよ。
— 62 —
E タンパク質 X と新たに作製した欠失型タンパク質Ⅷ(図3—3;c/d/e 領域を欠失しており,a/b 領域のみからなる)を試験管内で混合した後,タンパク質 Y を加えて反応させた。このとき,欠失型タンパク質Ⅷを加えることによって,タンパク質 X の酵素活性にどのような影響が認められるか。次の考察の空欄3と空欄4に入る最も適切な語句を,以下の選択肢(1)〜(5)からそれぞれ1つ選んで番号で答えよ。ただし,同じ語句を2度用いてもよい。
考察:加えた欠失型タンパク質Ⅷの量が,タンパク質 X およびタンパク質 Y の量より十分に多いとき,反応液中のタンパク質 X の酵素活性は,欠失型タンパク質Ⅷが存在しない場合と比較して 3 。一方,タンパク質 Y の量が,欠失型タンパク質Ⅷおよびタンパク質 X の量よりも十分に多いとき,反応液中のタンパク質 X の酵素活性は,欠失型タンパク質Ⅷが存在しない場合と比較して 4 。
選択肢:
(1) 高くなる
(2) 高くなった後,低くなる
(3) 低くなる
(4) 低くなった後,高くなる
(5) 同等である
第1問 胎盤と「父から来たか・母から来たか」 — 酸素の受けわたしとゲノム刷り込み 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 前半(文1)は、胎仔が胎盤で母から酸素を受け取るしくみ。母と胎仔の血は混ざらないので、酸素は母のヘモグロビンからいったん離れ、胎仔のヘモグロビンに移る必要がある。2種類のヘモグロビンの酸素解離曲線(酸素分圧と、酸素がついている割合の関係)のずれ を読むのが中心。
後半(文2・文3)は、遺伝子 A ES 細胞は胎盤にならない 、四倍体の細胞は胎盤にはなれるが胎仔には入れない 。この2つを組み合わせると、「胎盤だけ」「胎仔だけ」を別の細胞で作り分けられる。
もう1つの鍵は「ゲノム刷り込み」。ほ乳類では、同じ遺伝子でも父由来と母由来で片方しかはたらかないものがある。そのため同じ遺伝子型 A a a 。表1—2 の2行の違いは、まさにこれを示している。
Ⅰ A 胎盤を持たない(または胎盤がほとんど発達しない)ほ乳類のなかまを思い出す。
カモノハシは卵を産むほ乳類で、総排出腔(ふんと尿と卵の出口が1つ)を持つなかま。コアラやカンガルーは、未熟な子を産んで腹の袋の中で育てるなかま。どちらも漢字二文字で答える。
Ⅰ B まず、図1—2 の2本の曲線のどちらが胎仔型かを決める。胎仔は母から酸素を「受け取る」側なので、同じ酸素分圧で、より多く酸素と結びつく(左の急な)曲線が胎仔型 、右のなだらかな曲線が成体型。
次に、胎盤の酸素分圧を求める。胎盤では成体型の 40% が酸素ヘモグロビンなので、成体型の曲線でたてが 40% になる所を読むと、横は約 30 mmHg。これが胎盤の酸素分圧。
胎仔の血は、この 30 mmHg の胎盤で酸素を受け取る。胎仔型の曲線を 30 mmHg で読むと約 70%。胎仔の末梢組織(10 mmHg)では、胎仔型の曲線から約 20% まで下がる。
放す酸素は、100% のとき 20 mL が基準なので
( 70 − 20 ) % × 20 m L = 0.50 × 20 m L
となる。もし胎仔も成体型だったら、胎盤で 40%、組織で約 10% なので 6 mL しか運べない。胎仔型は、母が酸素を手放す低い分圧でもしっかり受け取れる のが強み。
Ⅱ A 表1—1 の3行から、細胞ごとの「行き先の決まり」を読む。
8細胞期胚+ES 細胞では、ES 細胞は胎仔にだけ入り、胎盤には入らない(内部細胞塊から作った細胞なので、栄養外胚葉にならない)。8細胞期胚+四倍体胚では、四倍体の細胞は胎盤にだけ入り、胎仔には入らない。
ES 細胞と四倍体胚を合わせると、胎盤になれるのは四倍体の細胞だけ、胎仔になれるのは ES 細胞だけになる。2つの決まりを重ねると、胎盤と胎仔がきれいに分かれる 。1行程度なので、胎盤と胎仔のそれぞれについて何由来かを書く。
答え 胎盤は四倍体胚由来の細胞だけ,胎仔はES細胞由来の細胞だけからなる。(34字)
Ⅱ B 下線部(イ)にあるとおり、正常な発生には「父由来(オス型の印)」と「母由来(メス型の印)」の両方の染色体が必要。体細胞の核は受精卵から来ているので、両方の印を1組ずつ持っている。だから体細胞の核移植ではクローンが育つ。
では精原細胞はどうか。文3に、印は親の始原生殖細胞で、その性に応じてつけられる とある。つまりオスの生殖細胞の系列では、もとの印がいったん消されて、父由来・母由来のどちらの染色体にもオス型の印がつけ直されている。
その核で胚を作ると、染色体は二倍体でも「オス型が2組」でメス型が無い。母由来の染色体からだけ発現する遺伝子(この問題の遺伝子 A 二倍体かどうかではなく、印の組み合わせが問題 という点を書く。
答え ゲノム刷り込みの印は始原生殖細胞で消され,性に応じてつけ直されるので,精原細胞の核では相同染色体の両方にオス型の印がついている。この核からできた胚では,母由来の染色体からだけ発現する遺伝子がはたらかず,正常に発生できないから。(113字)
Ⅱ C キメラのオスは、ES 細胞(A a A A 精子(のもとになる生殖細胞)の何割が ES 細胞由来か 。
ES 細胞由来の精子のうち、a A A A A a a a A a
f 2 = 0.10 ⟹ f = 0.20
残りが野生型8細胞期胚由来の割合になる。ただし書きの「遺伝子 A A a
Ⅱ D 表1—2 の2つのかけあわせは、A a A a A a a A a
実験2では、受精卵をいろいろな遺伝子型のレシピエントに移した。表1—3 を見ると、A A A a A A A a A a A A A a A a おなかの母が何であっても結果が変わらない ので、②の考えが否定された。
①のうち「卵そのもの(細胞質)の影響」はこの実験では否定されていないので、書くのは「母体の遺伝子型」に限る。
答え 母体(レシピエント)の遺伝子型が A a 胎仔の表現型を決めるという可能性。(35字)
Ⅱ E 表1—2・1—3 から、A a 母から a だけ。これは「遺伝子 A
A a A a A a a A A A a a
つまり A a
答え 表現型:約半数は正常に発生し,残りの約半数は妊娠中期に発生を停止する。(31字) 理由:母由来の A だけが発現するため,母から a を受け継いだ個体は A がはたらかないから。(39字)
Ⅱ F 下線部(エ)のとおり、「止まるはずの遺伝子型の胎仔」に、「正常に機能する細胞で作った胎盤」を組み合わせる。表1—1 の3行めから、正常な胎盤だけを補うには、A A (四倍体の細胞は胎盤にだけ入る)。だから 8 は四倍体。胎仔を作る側の胚は二倍体でないと胎仔にならないので、7 は二倍体。
次に、胎仔がその遺伝子型の細胞だけからなって正常に育ったとき、「本来なら止まるはずの胎仔」だったと言い切れる必要がある。a a A a a a A a A A A a a
逆に ♀A a A a A a A
第2問 窒素の行き先と、根粒を数える植物 — 全身で数えて全身で止める 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 前半(文1)は、土の中の窒素が植物に取りこまれるまでの流れ。図2—1 の矢印を、窒素の酸化数(どれだけ電子を手放した状態か) で整理すると、どの反応でエネルギーが取り出せ、どの反応でエネルギーを使うかが一目でわかる。NO3− が一番高く(+5)、NH4+ が一番低い(−3)。
後半(文2)は、マメ科植物が根粒の数をどう調節しているか。下線部(エ)のしくみは3段階:(1) 根が「根粒ができた」と地上部に知らせる → (2) 地上部が「もう作るな」を作って根に送る → (3) 根がそれを受けて止まる 。知らせと抑えが地上部を通ることが大事で、実験2・3 と問Ⅱ C はすべてこの3段階で説明する。
実験1 の数字は倍加日数で比べる。成長が「一定の日数ごとに2倍」になるとき、重さの対数は日数に比例するので、片対数方眼紙で直線になる。
Ⅰ A RNA と DNA はヌクレオチドがつながったもので、塩基(アデニンなど)に窒素がある。ATP もアデニンを含む。コラーゲンはタンパク質なので、アミノ酸のアミノ基に窒素がある。尿酸は、鳥類やは虫類が窒素を捨てる形の物質。
グリコーゲンはグルコースがつながった炭水化物、脂肪はグリセリンと脂肪酸、乳酸は解糖でできる物質で、どれも C・H・O だけからできている。
Ⅰ B まとめた式 N O 2 − + 1 2 O 2 ⟶ N O 3 −
電子を出すのは N O 2 − N O 3 − H 2 O 2 H + 2 e −
電子を受け取るのは O 2 H + H 2 O H + e − [ H ] 2 H + + 2 e − 2 [ H ]
答え 電子供与反応: N O 2 − + H 2 O ⟶ N O 3 − + 2 H + + 2 e − 電子受容反応: 1 2 O 2 + 2 H + + 2 e − ⟶ H 2 O
Ⅰ C 問Ⅰ B と同じく、エネルギーを取り出せるのは窒素が電子を出す反応(酸化)で、その電子を酸素に渡せるもの 。酸化数を計算して、上がる反応を探す。
酸化数は、H を +1、O を −2 として電荷と合うように決める。N 2 N H 4 + N O 2 − N O 3 −
①(0→−3)、③(+5→+3)、④(+3→−3)は下がる向きで、電子をもらう側。窒素固定や植物の中での還元は、むしろエネルギー(ATP や還元力)を使う。⑤は N H 4 +
なお、酸化数は電子がいくつ出入りするかを数える道具で、取り出せるエネルギーの量そのものではない。エネルギーは、電子を出す物質と受け取る物質の組で決まる(酸化数が下がる反応でも、別の物質から電子をもらってエネルギーを得る生物もいる)。ここでは図2—1 の中で、酸素に電子を渡せるのはどれか、植物の中で還元に使われるのはどれか、という区別で選んでいる。
Ⅰ D グルホシネートを与えると、「同化産物が足りなくなる」ことと「N H 4 + 同時に 起こる。このままでは、どちらが原因で枯れたのか区別できない。そこで、片方だけを起こす(または片方だけを消す)条件 を作る。
1つめは、グルホシネートで処理したうえで、グルタミンなどの同化産物を外から与える方法。欠乏は起きないが、N H 4 + 除草剤だけの植物と同じ時期に枯れれば 蓄積が、枯れないか枯れるのが遅れれば 欠乏が引き金と考えられる。
2つめは、グルホシネートを使わずに、体内の N H 4 + 除草剤で処理した植物と同じ速さでたまるように N H 4 +
ここで気をつけたいのは、「高濃度の N H 4 + こと。高濃度の N H 4 + 先に 植物を枯らしたのがどちらか。欠乏の方が早く致命的になっていたなら、N H 4 + 枯れる時期 を比べる。実験1 でも、グルタミンがちゃんと植物に入ったか、N H 4 +
2つの実験で、欠乏説なら「枯れない(遅れる)」、蓄積説なら「同じ時期に枯れる」と予想が分かれる。それぞれ「何をして」「どうなったら何が考えられるか」を2行程度で書く。
答え 実験1:グルホシネート処理した植物にグルタミンを与える。処理だけの植物と同時に枯れれば N H 4 + の蓄積が,枯れないか遅れれば欠乏が引き金と考えられる。(70字) 実験2:グルホシネートは与えず,処理した植物と同じ速さで体内に N H 4 + をためる。同時に枯れれば蓄積が,枯れないか遅れれば欠乏が引き金と考えられる。(69字)
Ⅱ A 倍加日数が一定なら、d 2 t / d log
野生型は 20 日後 0.45 g、36 日後 1.80 g で、ちょうど4倍。4倍は2回の倍加なので、16 日で2回、1回あたり8日。16 日後の 0.32 g からでも同じ直線にのる。
変異体 x
log 2 3.2 = log 10 3.2 log 10 2 ≈ 1.68
なので、倍加日数は 20 ÷ 1.68 ≈ 11.9 根粒を作りすぎた変異体は、成長の速さが野生型の約3分の2に落ちている 。
Ⅱ B 図2—3 で、時間差が 0 日なら根系1 と根系2 はほぼ同じ(約 40 と 38)。6 日なら根系1 が多く(約 54)根系2 は少ない(約 23)。12 日なら根系1 が約 76、根系2 はほとんど0。どの場合も合計は約 77〜78 でほぼ同じ 。
これを3段階のしくみで説明する。先に感染した根系で根粒ができると、その根系が地上部に知らせる(段階(1))。地上部は根粒の数に応じた抑制シグナルを作り(段階(2))、両方の根系に 送る。後から感染した根系も、この抑えを受ける(段階(3))。
先に感染した根系で根粒が増えるほど、後の根系が作れる数は減る。植物全体で見れば、合計が一定の数に達したところで抑えが十分に強くなり、どちらの根系でも新しい根粒ができなくなる。だから感染の時間差によらず合計は一定になる。もし抑えが根系ごとにはたらくなら、遅れて感染した根系2 も根系1 と同じだけ作るはずで、図と合わない。4行程度で、「知らせ→全身への抑え→合計で止まる」の流れを書く。
答え 根粒ができた根系は根粒形成を知らせるシグナルを地上部に送り,地上部は根粒の数に応じた抑制シグナルを両方の根系に送る。抑制は感染の時期によらず全身の根にはたらくので,先に感染した根系で根粒が増えるほど,後の根系での形成は強く抑えられ,両根系を合わせた総数が一定に達するとどちらでも形成が止まるから。(148字)
Ⅱ C まず前提を整理する。実験3 の接ぎ木(図2—5)で、根粒が多くなるのは根が変異体 y y
Y が段階(1)に関わる場合:変異体 y
Y が段階(3)に関わる場合:変異体 y
答え 段階(1)に関与する場合:c,段階(3)に関与する場合:h
第3問 細胞周期の見張り役と、酵素のスイッチ — 止めて直す・外して動かす 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 文1・文2 は細胞周期の話。細胞は DNA を複製してから分裂するが、DNA が傷ついたまま分裂すると娘細胞が困る。そこで 「傷があれば G2 期で止まり、直してから進む」という見張り役(細胞周期の監視機構、チェックポイント) がある。G2 期で直せるのは、複製でできたもう一組の DNA を手本にできるから。
実験2・3 は、この見張り役と修復の道具(修復酵素)のどちらが欠けているかを見分ける。修復酵素が無い細胞は「止まるが直せない」、見張り役が無い細胞は「直せるのに止まらない」 。表3—1 の G2 期の割合と、図3—2 の「G2 期から先へ進む速さ」がその手がかりになる。
文3 は、1つのタンパク質の中の領域の役割を、領域を1つずつ欠かせた実験で決める問題。欠かせたときに活性がどう変わるかから、「酵素そのもの」「ブレーキ」「ブレーキを外すスイッチ(Y がつく所)」を割りふる。
Ⅰ A (1) 真核生物の核の DNA は、ヒストンに巻きついてヌクレオソームを作り、これが折りたたまれて染色体になっている。正しい。(2) 原核生物では RNA ポリメラーゼが直接プロモーターに結合するが、真核生物では基本転写因子が先にプロモーターにつき、それを目印に RNA ポリメラーゼが結合する。正しい。
(4) 6塩基対の並びが決まった1つの並びになる確率は、1か所ごとに 1 4
( 1 4 ) 6 = 1 4096
(3) 免疫グロブリンの多様性は、B 細胞が分化するときに、遺伝子の断片(V・D・J など)がいくつもの中から選ばれてつなぎ合わされる「遺伝子の再編成」によって主に生まれる。選択的スプライシングではないので、ここが誤り。
答え (3) 免疫グロブリンの多様性は,選択的スプライシングではなく,主にB細胞の分化の過程で免疫グロブリン遺伝子のDNAの断片が組み合わされて再編成されることで生み出される。
Ⅰ B 蛍光の強さは、細胞1個の DNA の量に比例する。G1 期の細胞の DNA の量を 1 とすると(ヒトの体細胞なので、染色体としては2組=2n 分)、S 期で複製が進んで少しずつ増え、G2 期で 2 になる。M 期は分裂が終わるまで 2 のまま。
図3—1 の左の高い山(a)は DNA の量が 1 の細胞、右の山(c)は 2 の細胞、その間のなだらかな所(b)は複製の途中の細胞。だから G1 期は a、S 期は b、G2 期と M 期はどちらも c。
左の山の方が高いのは、増えている集団では分裂したばかりの若い細胞が多く、しかも G1 期が長いから。DNA の量だけでは G2 期と M 期を区別できない ことにも気づいておく。
Ⅱ A 変異細胞 A は「DNA 損傷を修復する酵素が完全に機能を失っている」。見張り役は正常なので、X 線で DNA が切れると G2 期で止まる。ところが直す道具が無いので、いつまでたっても直らず、止まったまま になる。
正常細胞は少量の X 線で、10 時間後に G2 期が 50%、生存が 50%。直せた細胞は先へ進むので G2 期の割合は下がっていくが、A では直せる細胞がいないので、G2 期の割合は正常細胞より多くなる。照射なしでも A は G2 期が 10%(正常は 5%)と多いのは、ふだんできる小さな傷も直せずに止まっているから、と読める。
生存率は、傷を直せないので正常細胞の 50% より低くなる。この2つ(G2 期は 50% より多く、生存は 50% より少ない)を両方満たす組み合わせは選択肢に1つしかない。
Ⅱ B 表3—1 で B を見ると、X 線を当てても G2 期の割合は正常細胞ほど増えない(少量で 20%、正常は 50%)。止まるべき細胞が止まっていない 。
図3—2 は、薬で G2 期に止めておいた細胞に X 線を当て、薬を除いて放したときの進み方。正常細胞では、照射した細胞は照射していない細胞より3時間ほど遅れて G2 期を出る。傷を直し終わるまで待っているから。B では、照射してもしなくてもほとんど同じ時刻に進む。傷があっても待たない 。
見張り役(DNA 損傷を感じて G2 期で止めるしくみ)が B では欠けているので、傷を直しきらないうちに分裂期に入る。切れたままの染色体は正しく分けられず、細胞は死ぬ。これが生存率の低い理由。表と図の両方を根拠に書く。
答え 変異細胞BではX線照射後にG2期の細胞の割合があまり増えず,G2期で止めた細胞も照射の有無によらず同じ時間で次の段階へ進む。BはDNA損傷を感知して細胞周期をG2期で止めるしくみを欠くため,損傷を修復しないまま分裂期に進んで死ぬから。(117字)
Ⅱ C B に欠けているのが「見張り役」なのか「修復酵素」なのかを分けたい。見張り役の仕事は「止めて時間を作ること」なので、それを薬で代わりにやってやればよい 。
紡錘体形成阻害剤で B を G2 期に止めたまま X 線を当て、修復に十分な時間(正常細胞が直すのにかかる数時間以上)薬で止めておく。それから薬を除いて、生存率(コロニーの数)を調べる。
B が修復酵素を持っていれば、止めている間に直せるので、生存率は正常細胞と同じくらいまで上がる。もし B に欠けているのが修復酵素なら、いくら待っても直せないので、生存率は低いまま(変異細胞 A のように)。予想される結果まで書くことに注意する。
答え 正常細胞と変異細胞Bを紡錘体形成阻害剤でG2期に止めてX線を照射し,修復に十分な時間阻害剤で止めたままにした後に除去して生存率を調べる。Bの生存率が正常細胞と同程度に回復すれば,Bは損傷を修復できるとわかる。(104字)
Ⅲ A 図3—3 の棒を、「どの領域を除くとどうなったか」で読む。
e 領域を除いた欠失型Ⅶだけが、Y があってもなくても活性が検出限界以下になる。ほかの領域をどう除いても、活性が低いことはあっても 0 にはならない。酵素としてはたらく部分そのものが e 領域にある、と考えられる。
Ⅲ B タンパク質 X は、Y が無いと低く、Y があると高い。Y の効き目が消える(Y があっても低い)欠失型を探す。
a 領域だけを除いた欠失型Ⅰは、X と同じく Y で上がる。a と b を除いたⅡ、b だけを除いたⅣは、Y があっても低いまま。a は関係なく、b が無いと Y が効かない 。問題文に「Y は X の酵素領域とは直接結合しない」とあるので、Y は b 領域について効いていると考える。
Ⅲ C c 領域を除いた欠失型Ⅴ(c だけ)とⅥ(c と d)は、Y が無くても活性が高い 。a・b・c を除いたⅢも同じ。c があるとき(X、Ⅰ)は Y が無いと低い。
つまり c 領域は、e 領域の酵素活性を抑えるブレーキ。c が無ければ最初からブレーキがかかっていないので、Y が要らない。
選択肢の「X と Y の結合を抑制する」だとすると、c を除いても Y が無ければ活性は上がらないはずで、合わない。「立体構造を安定化・不安定化する」は、活性が上がる・下がるの向きと結びつかない。
Ⅲ D ふだん(ホルモン Z の刺激が無いとき)は Y がほとんど無いので、c 領域のブレーキがはたらいて、e 領域の酵素活性は低い。ホルモン Z で刺激すると Y が大量に作られ、Y が X の b 領域に結合する。b に Y がつくと c のブレーキが外れ、e がはたらいて X の酵素活性が高くなる。
「何が増えて」「どこについて」「何が外れて」「どこがはたらくか」の順に、3行程度で書く。
答え ふだんはc領域が,酵素として働くe領域の活性を抑えているため,Xの活性は低い。ホルモンZで刺激するとタンパク質Yの発現が増え,Yがb領域に結合することでc領域による抑制が解除され,e領域がはたらいてXの酵素活性は高くなる。(111字)
Ⅲ E 欠失型Ⅷは a・b だけのタンパク質。b 領域を持っているので Y と結合できる が、e 領域が無いので自分は酵素としてはたらかない。X にとっては、Y を取り合う相手になる。
Ⅷ が X や Y より十分に多いと、Y の大部分はⅧにつかまり、X の b 領域につく Y が少なくなる。X のブレーキが外れにくくなるので、X の活性はⅧが無いときより低くなる。
一方、Y が X とⅧの合計より十分に多いと、Ⅷ がいくらか Y をつかまえても、X にも行きわたるだけの Y が残る。X の b 領域はほとんど Y で埋まるので、活性はⅧが無いときと変わらない。「高くなった後,低くなる」などの時間の変化を表す選択肢は、この考察の比べ方には当てはまらない。