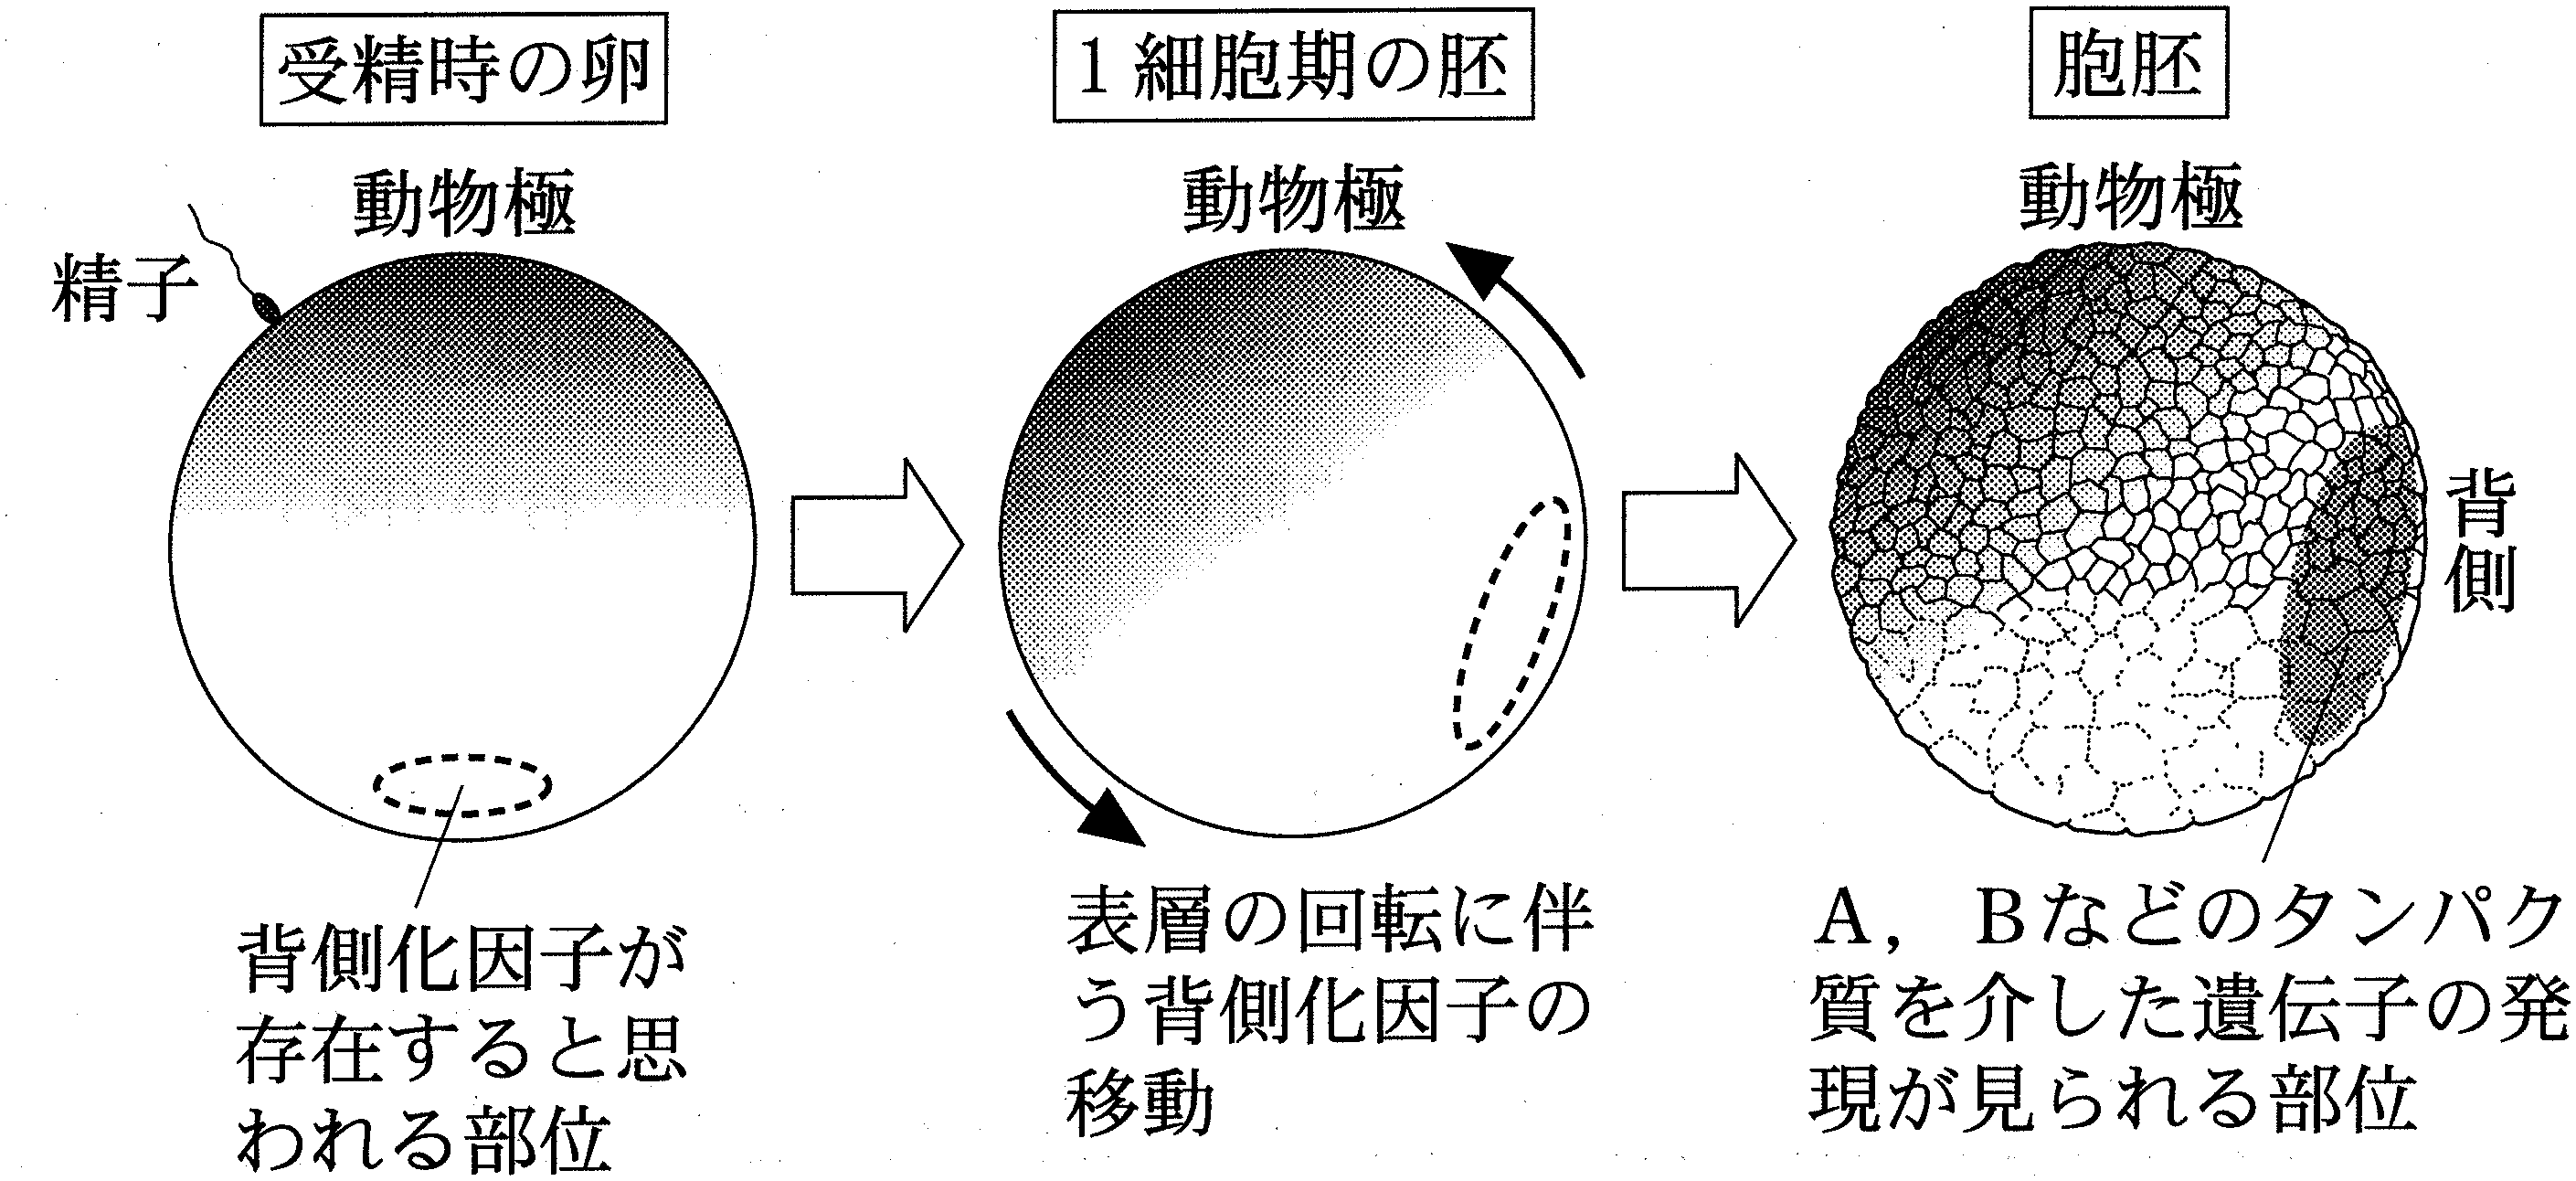
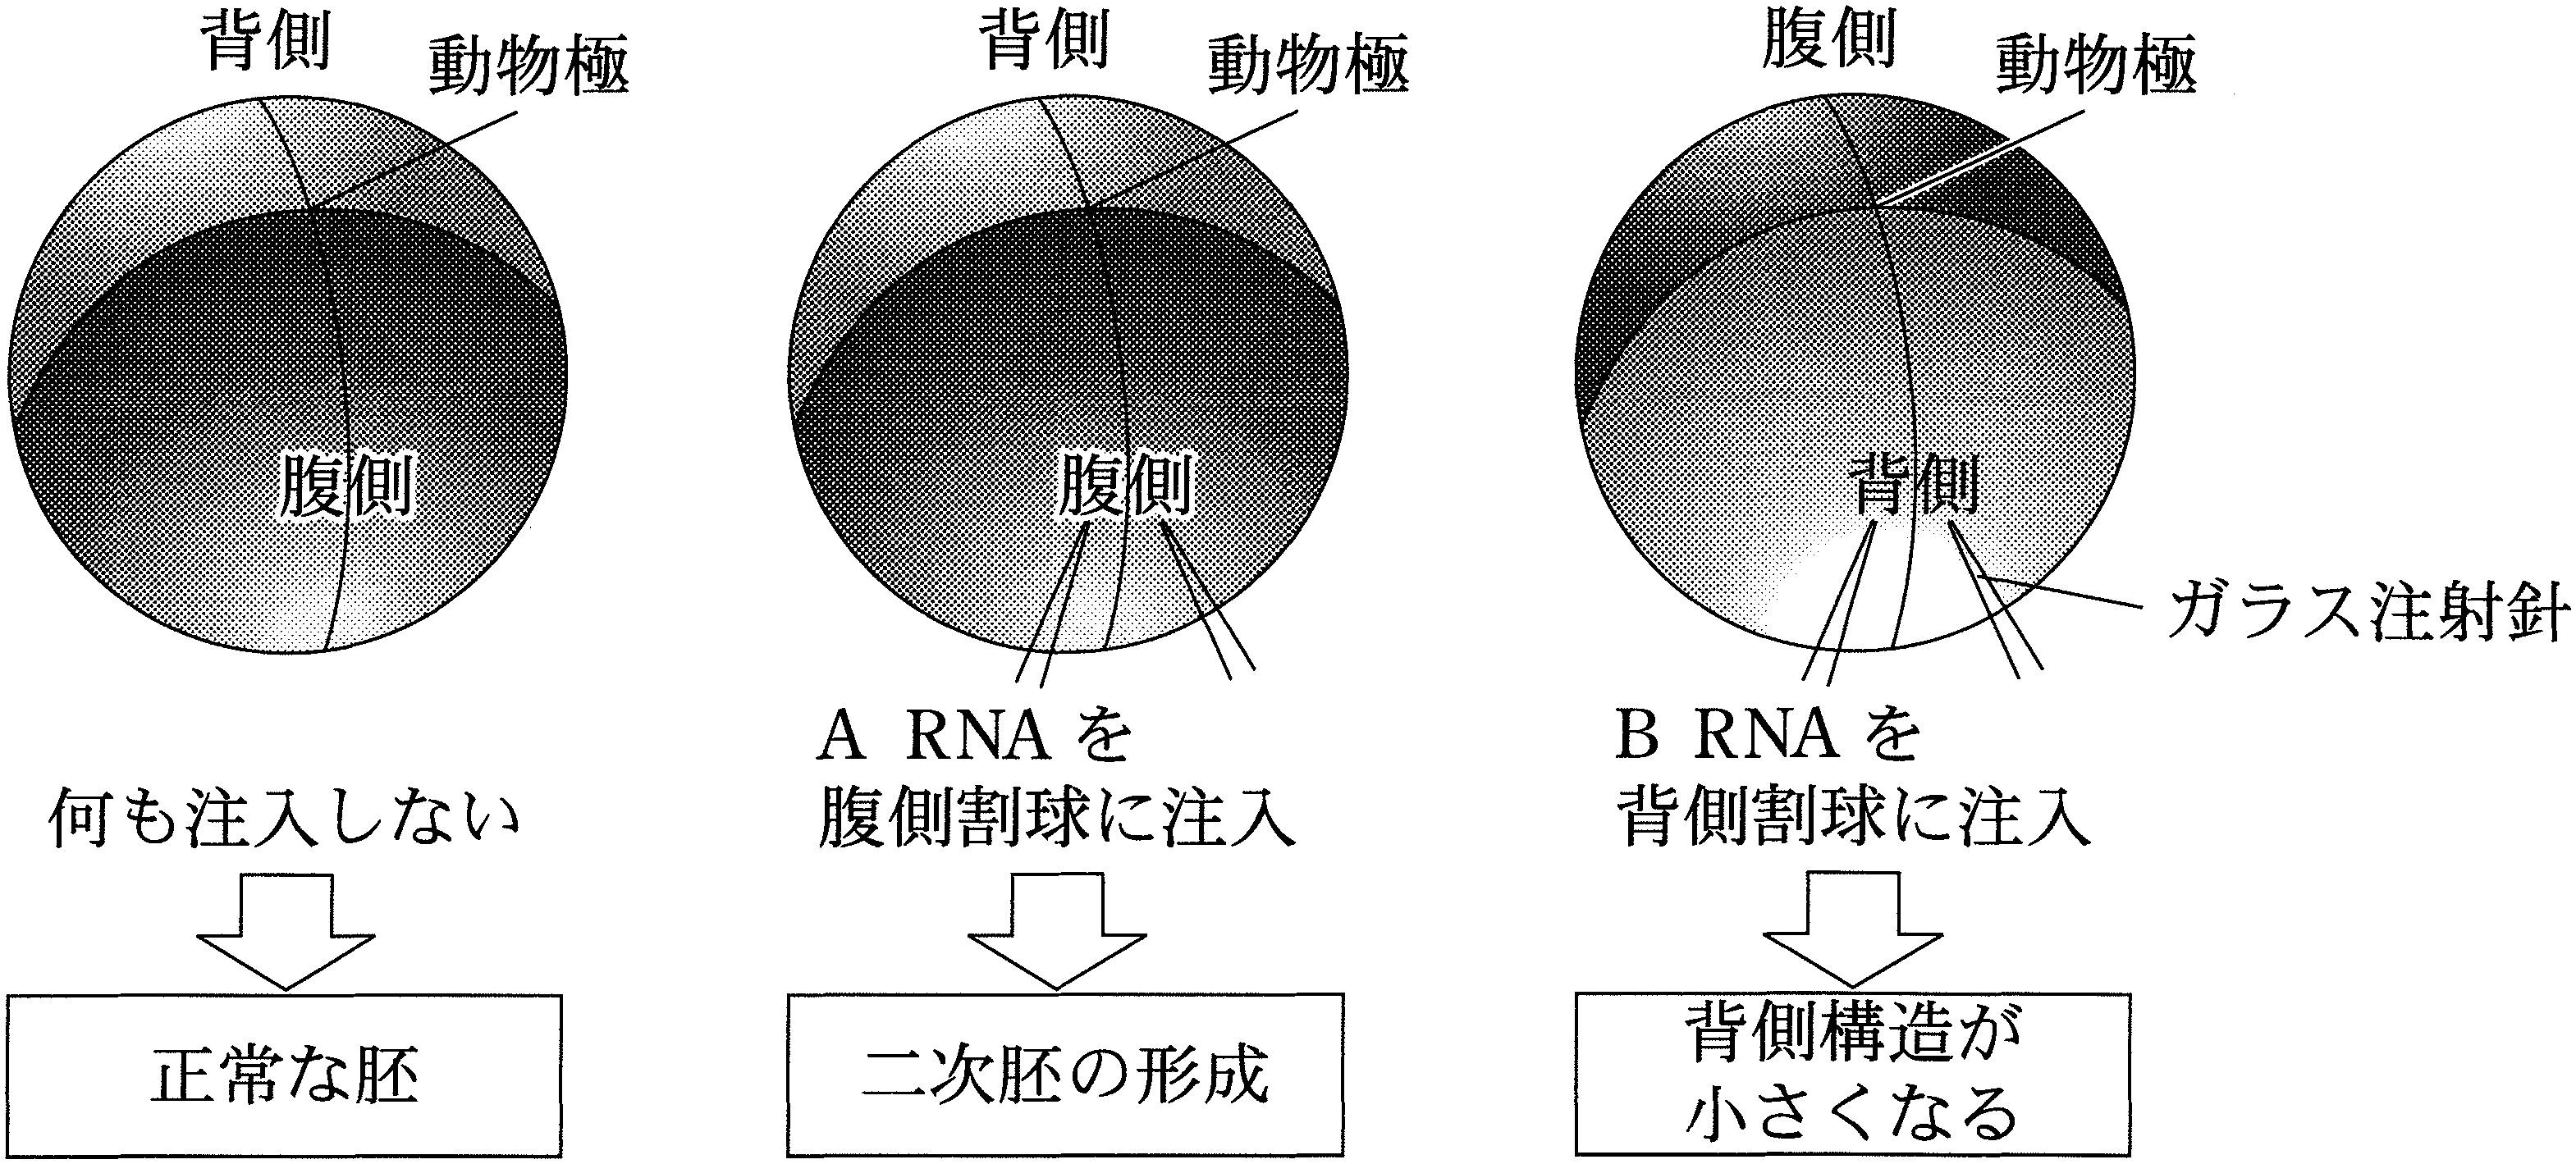
次に,別の母性因子である B タンパク質をコードする伝令 RNA(B RNA)を用意した。B RNA を腹側割球に注入しても,目立った変化はおこらなかったが,図1—2の右に示すように,背側割球に注入すると,背側の構造が小さくなった初期幼生が得られた。このことから,B タンパク質には背側の決定を阻害する効果があることがわかった。なお,別の実験結果から,B タンパク質は A タンパク質のはたらきに対して影響を与えるが,A タンパク質は B タンパク質のはたらきに影響を与えないことがわかっている。
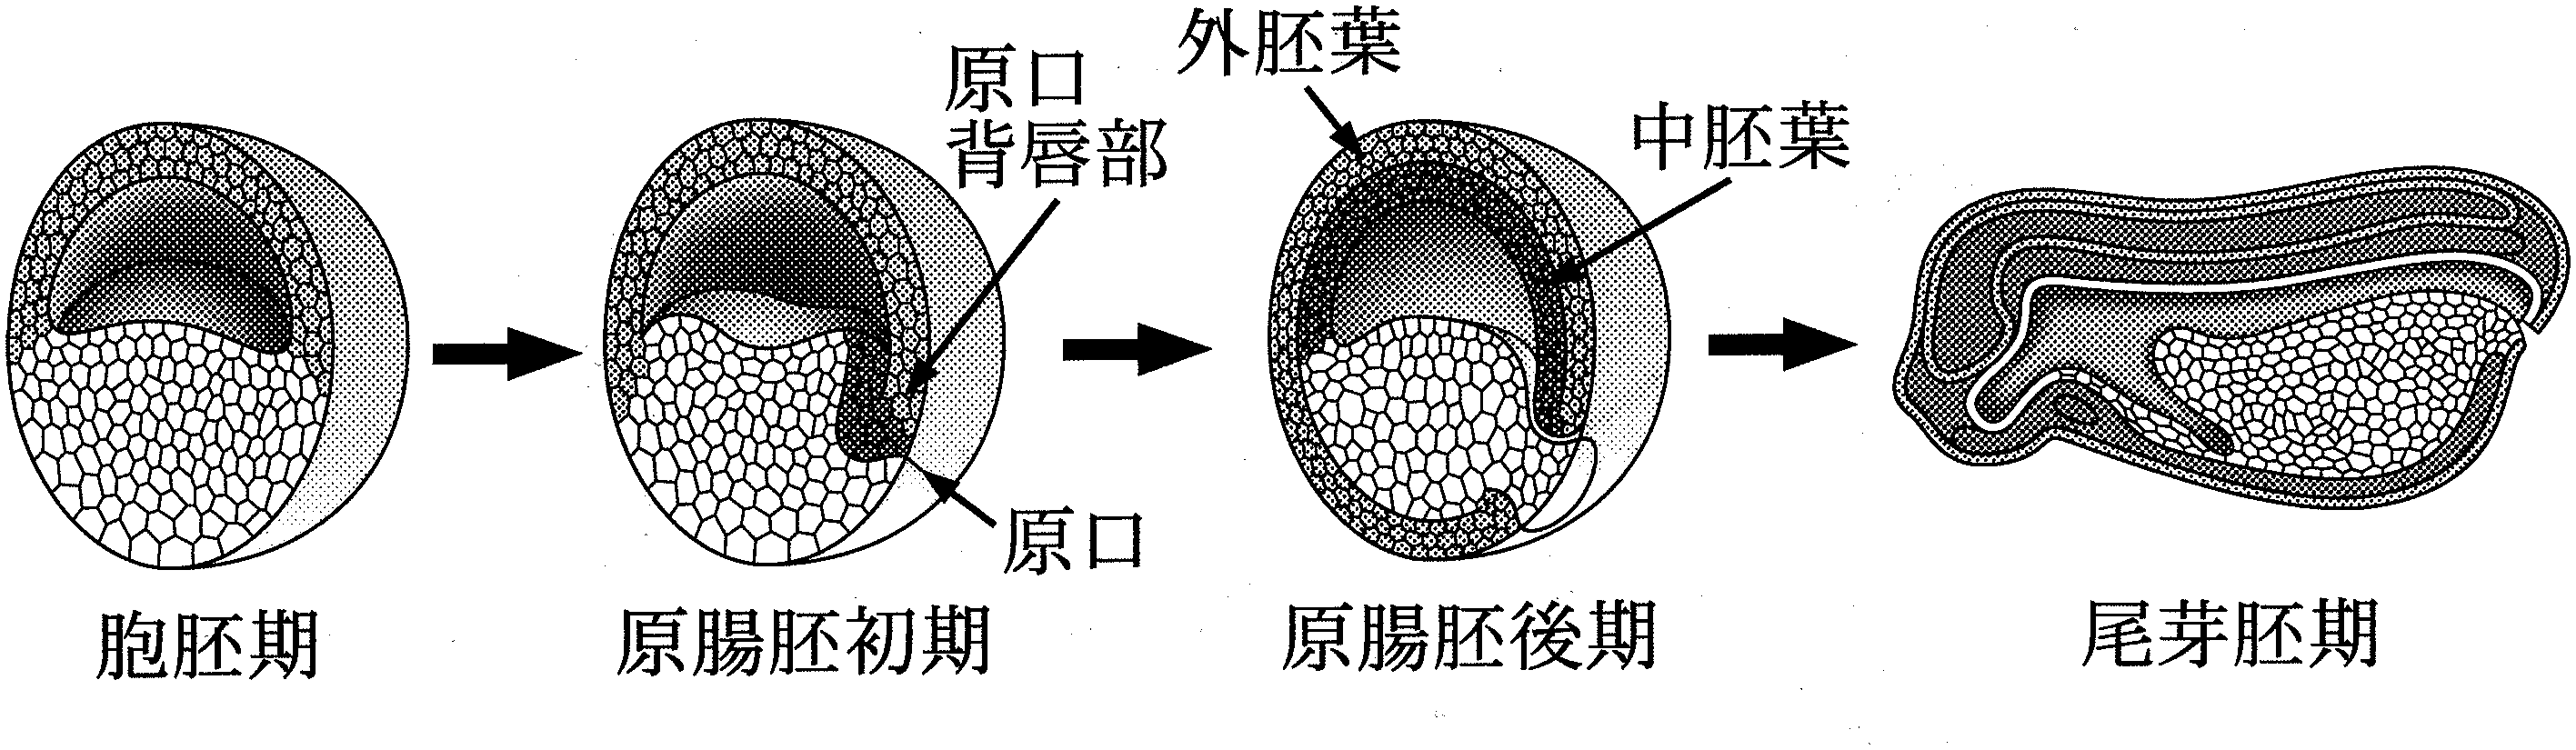
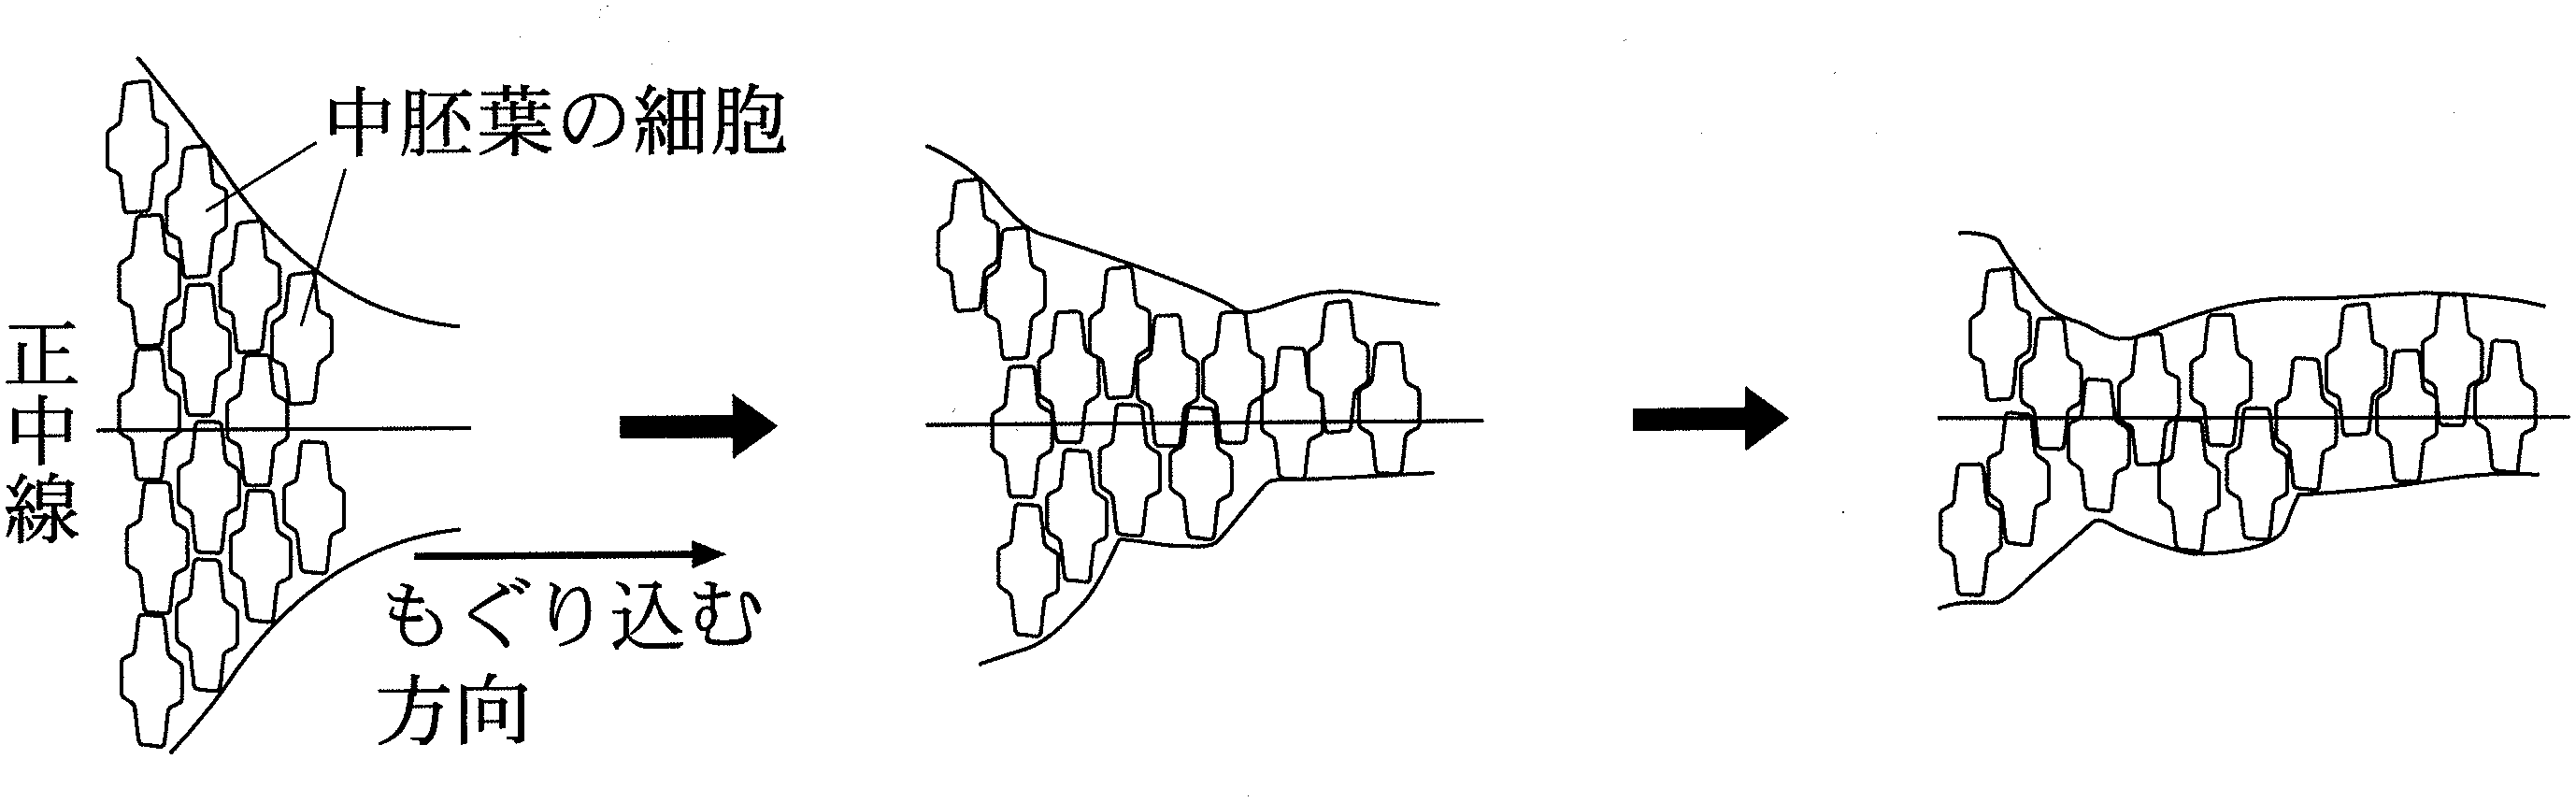
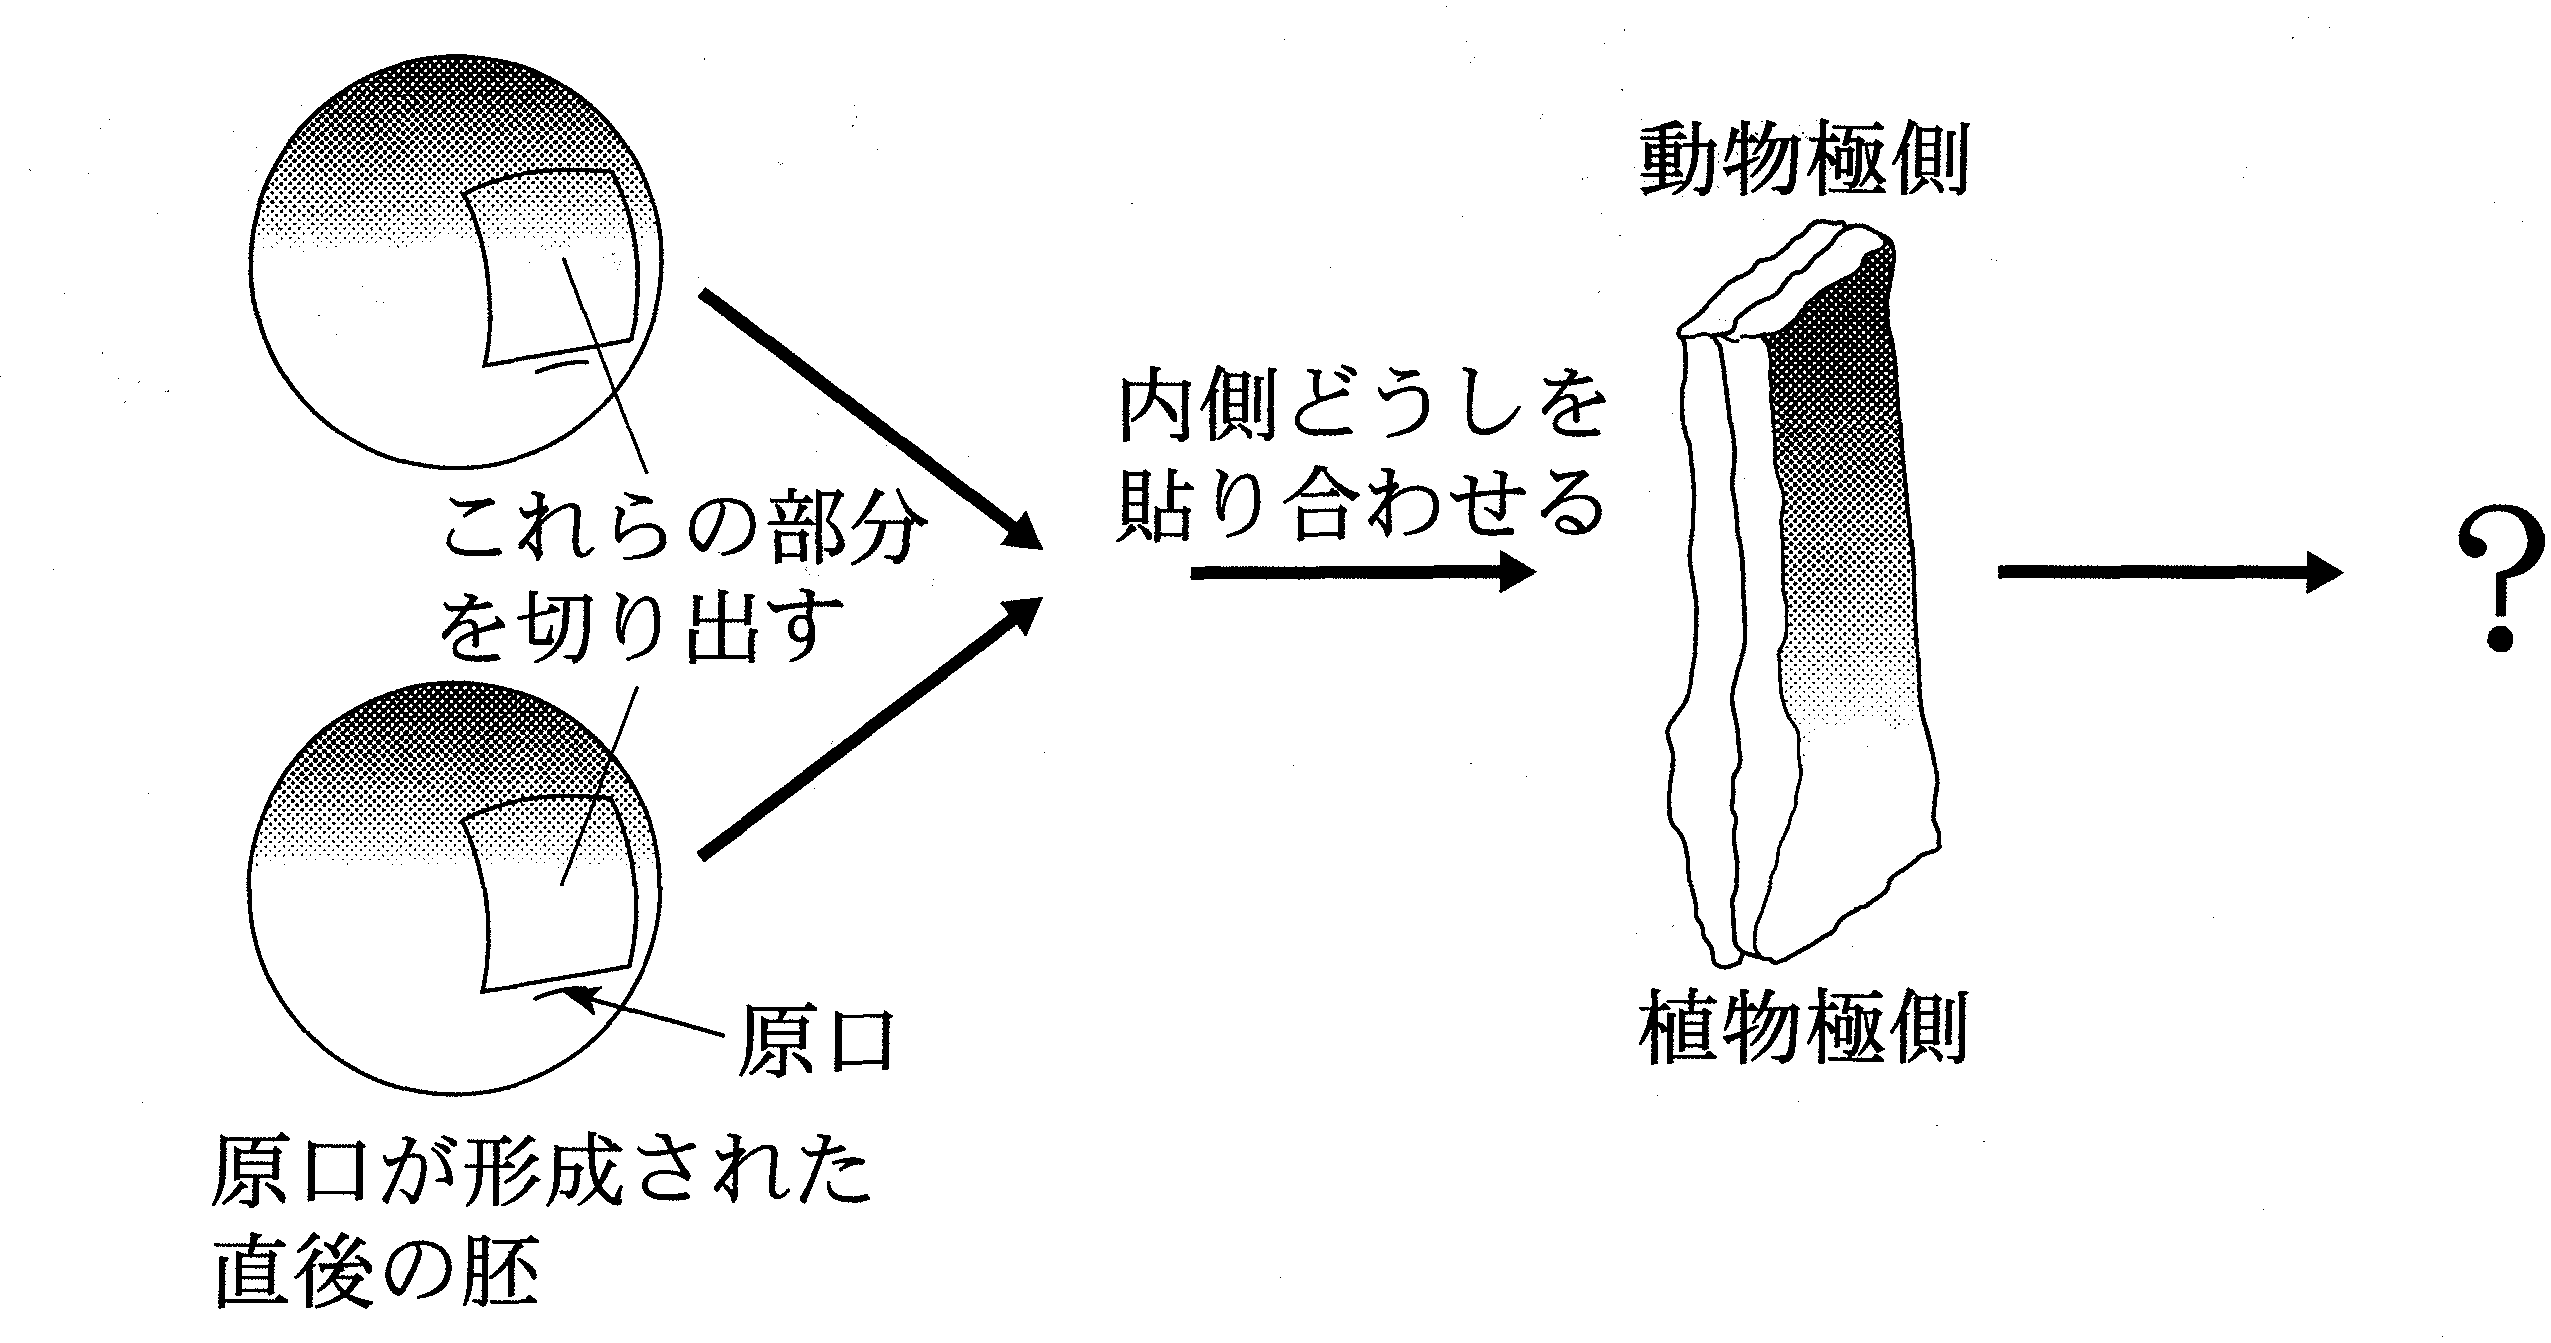
では,中にもぐり込んだ中胚葉の細胞はどのように動くのだろうか。興味深いことに,中胚葉の細胞はおのおの,もぐり込む方向ではなく,もぐり込む方向と直交するように動く。正中線に向けて集まるように細胞が移動することによって,中胚葉の細胞群は全体としてもぐり込みの方向に伸びる(図1—4)。このような中胚葉の細胞運動に,どのようなタンパク質がかかわっているか,最近の研究で徐々に明らかになってきた。原腸形成時の細胞運動に関して,細胞内に存在する C タンパク質の機能を知るため,以下の実験をおこなった。
B 下線部(ア)について。2細胞期のイモリ胚を細い髪の毛でくくり,割球を分離すると,2つの割球からそれぞれ完全な個体が発生する場合だけでなく,片方の割球だけが完全な個体に発生し,もう片方の割球は正常に発生しない場合も生じる。これらの結果の違いはなぜ引き起こされるか。灰色三日月環という語を用いて2行程度で述べよ。
C 下線部(イ)について。この結果から,A タンパク質は背側の決定にどのようなはたらきをもつと考えられるか。理由とともに2行程度で述べよ。
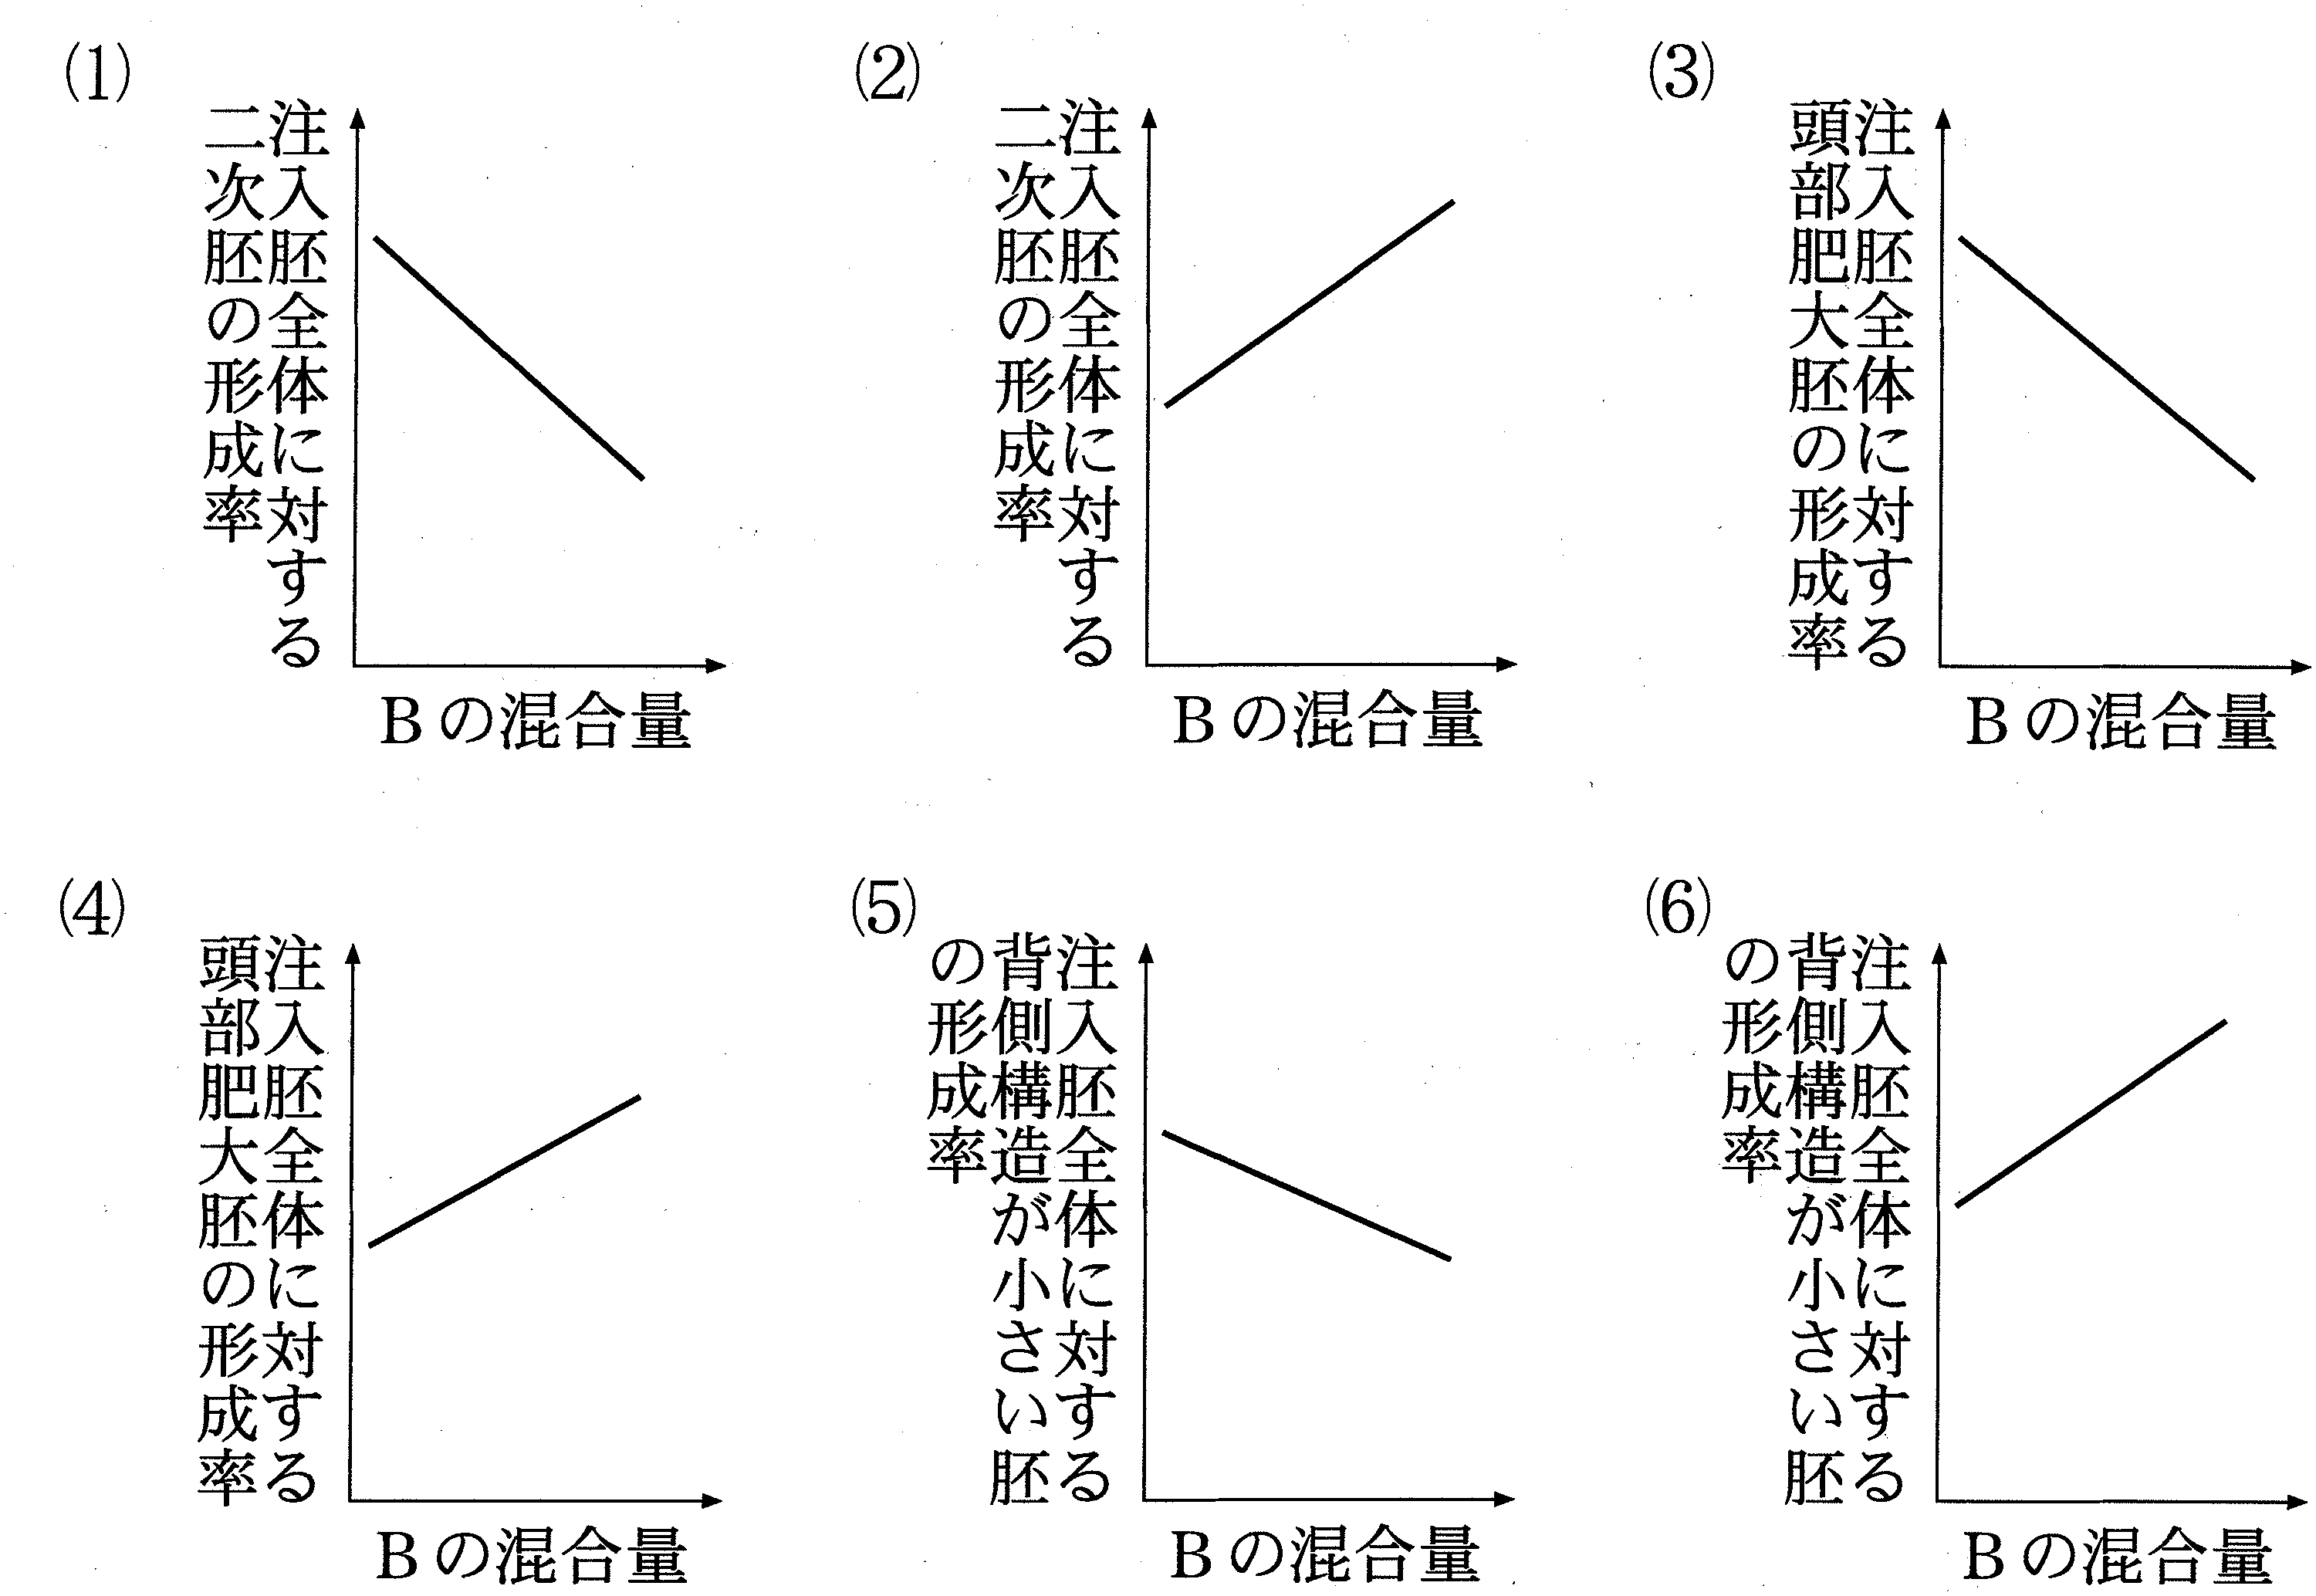
D 実験1について。一定量の A RNA に B RNA を加えた混合液を,胚の腹側割球に注入した。加える B RNA の量を少しずつ増やした時に得られる結果として,最も適切なグラフはどれか。以下の(1)〜(6)から1つ選べ。
E A タンパク質と B タンパク質は,ともに胚の背側,腹側の両方に分布する。このとき,文1で触れた背側化因子は,A タンパク質のはたらきに,結果としてどのような影響を与えると考えられるか。B タンパク質と関連づけながら,2行程度で述べよ。
— 42 —
Ⅱ 文2について,以下の小問に答えよ。
A アフリカツメガエルにおいて,原腸形成によりもぐり込んだ中胚葉の細胞の一部は,棒状の,幼生の体を支える器官へと分化する。この器官の名称を答えよ。
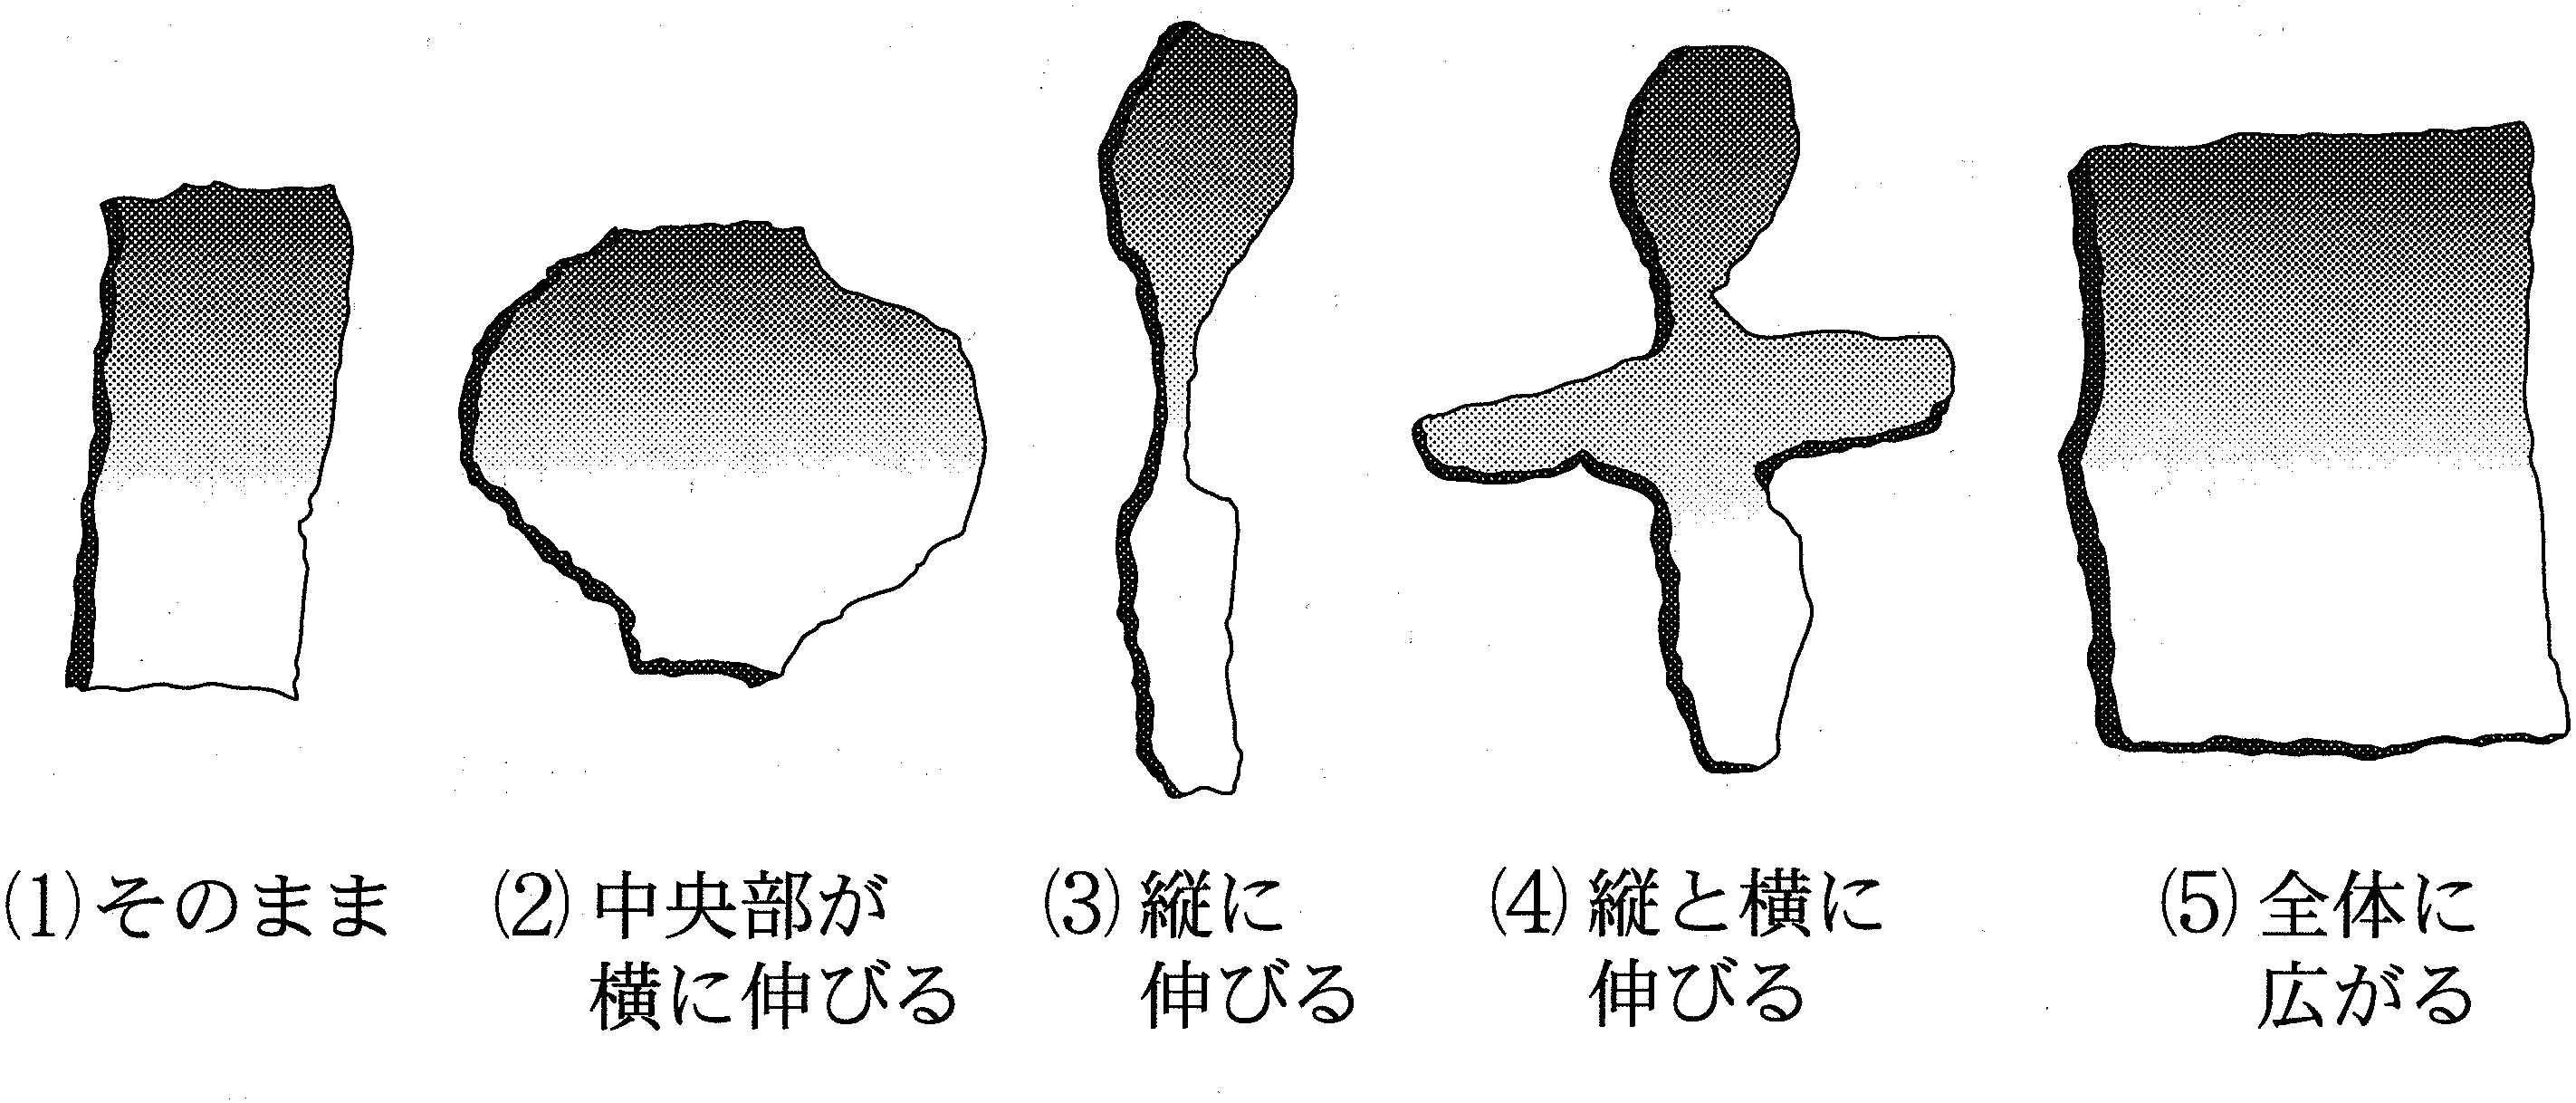
B 下線部(ウ)について。培養した外植体は,どのような形になると予想されるか。下の(1)〜(5)の中から1つ選べ。
C 下線部(エ)について。このような表現型が生じたのはなぜか。可能性として考えられるものを,以下の(1)〜(5)からすべて選べ。
(1) C タンパク質の阻害によって,中胚葉の細胞にならなくなった。
(2) C タンパク質の阻害によって,細胞の運動方向がバラバラになった。
(3) C タンパク質の阻害によって,原口背唇部ができなくなった。
(4) C タンパク質の阻害によって,原腸形成に必要な細胞が足りなくなった。
(5) C タンパク質の阻害によって,中胚葉の細胞が動けなくなった。
D 下線部(オ)について。このような表現型が生じたのはなぜか。2行程度で述べよ。
E C タンパク質をコードする伝令 RNA(C RNA)をある量以上胚の背側割球に注入すると,dnC RNA を注入した場合と同様の作用があった。考えられる理由について,C タンパク質の細胞内における分布と関連づけながら,1行程度で述べよ。
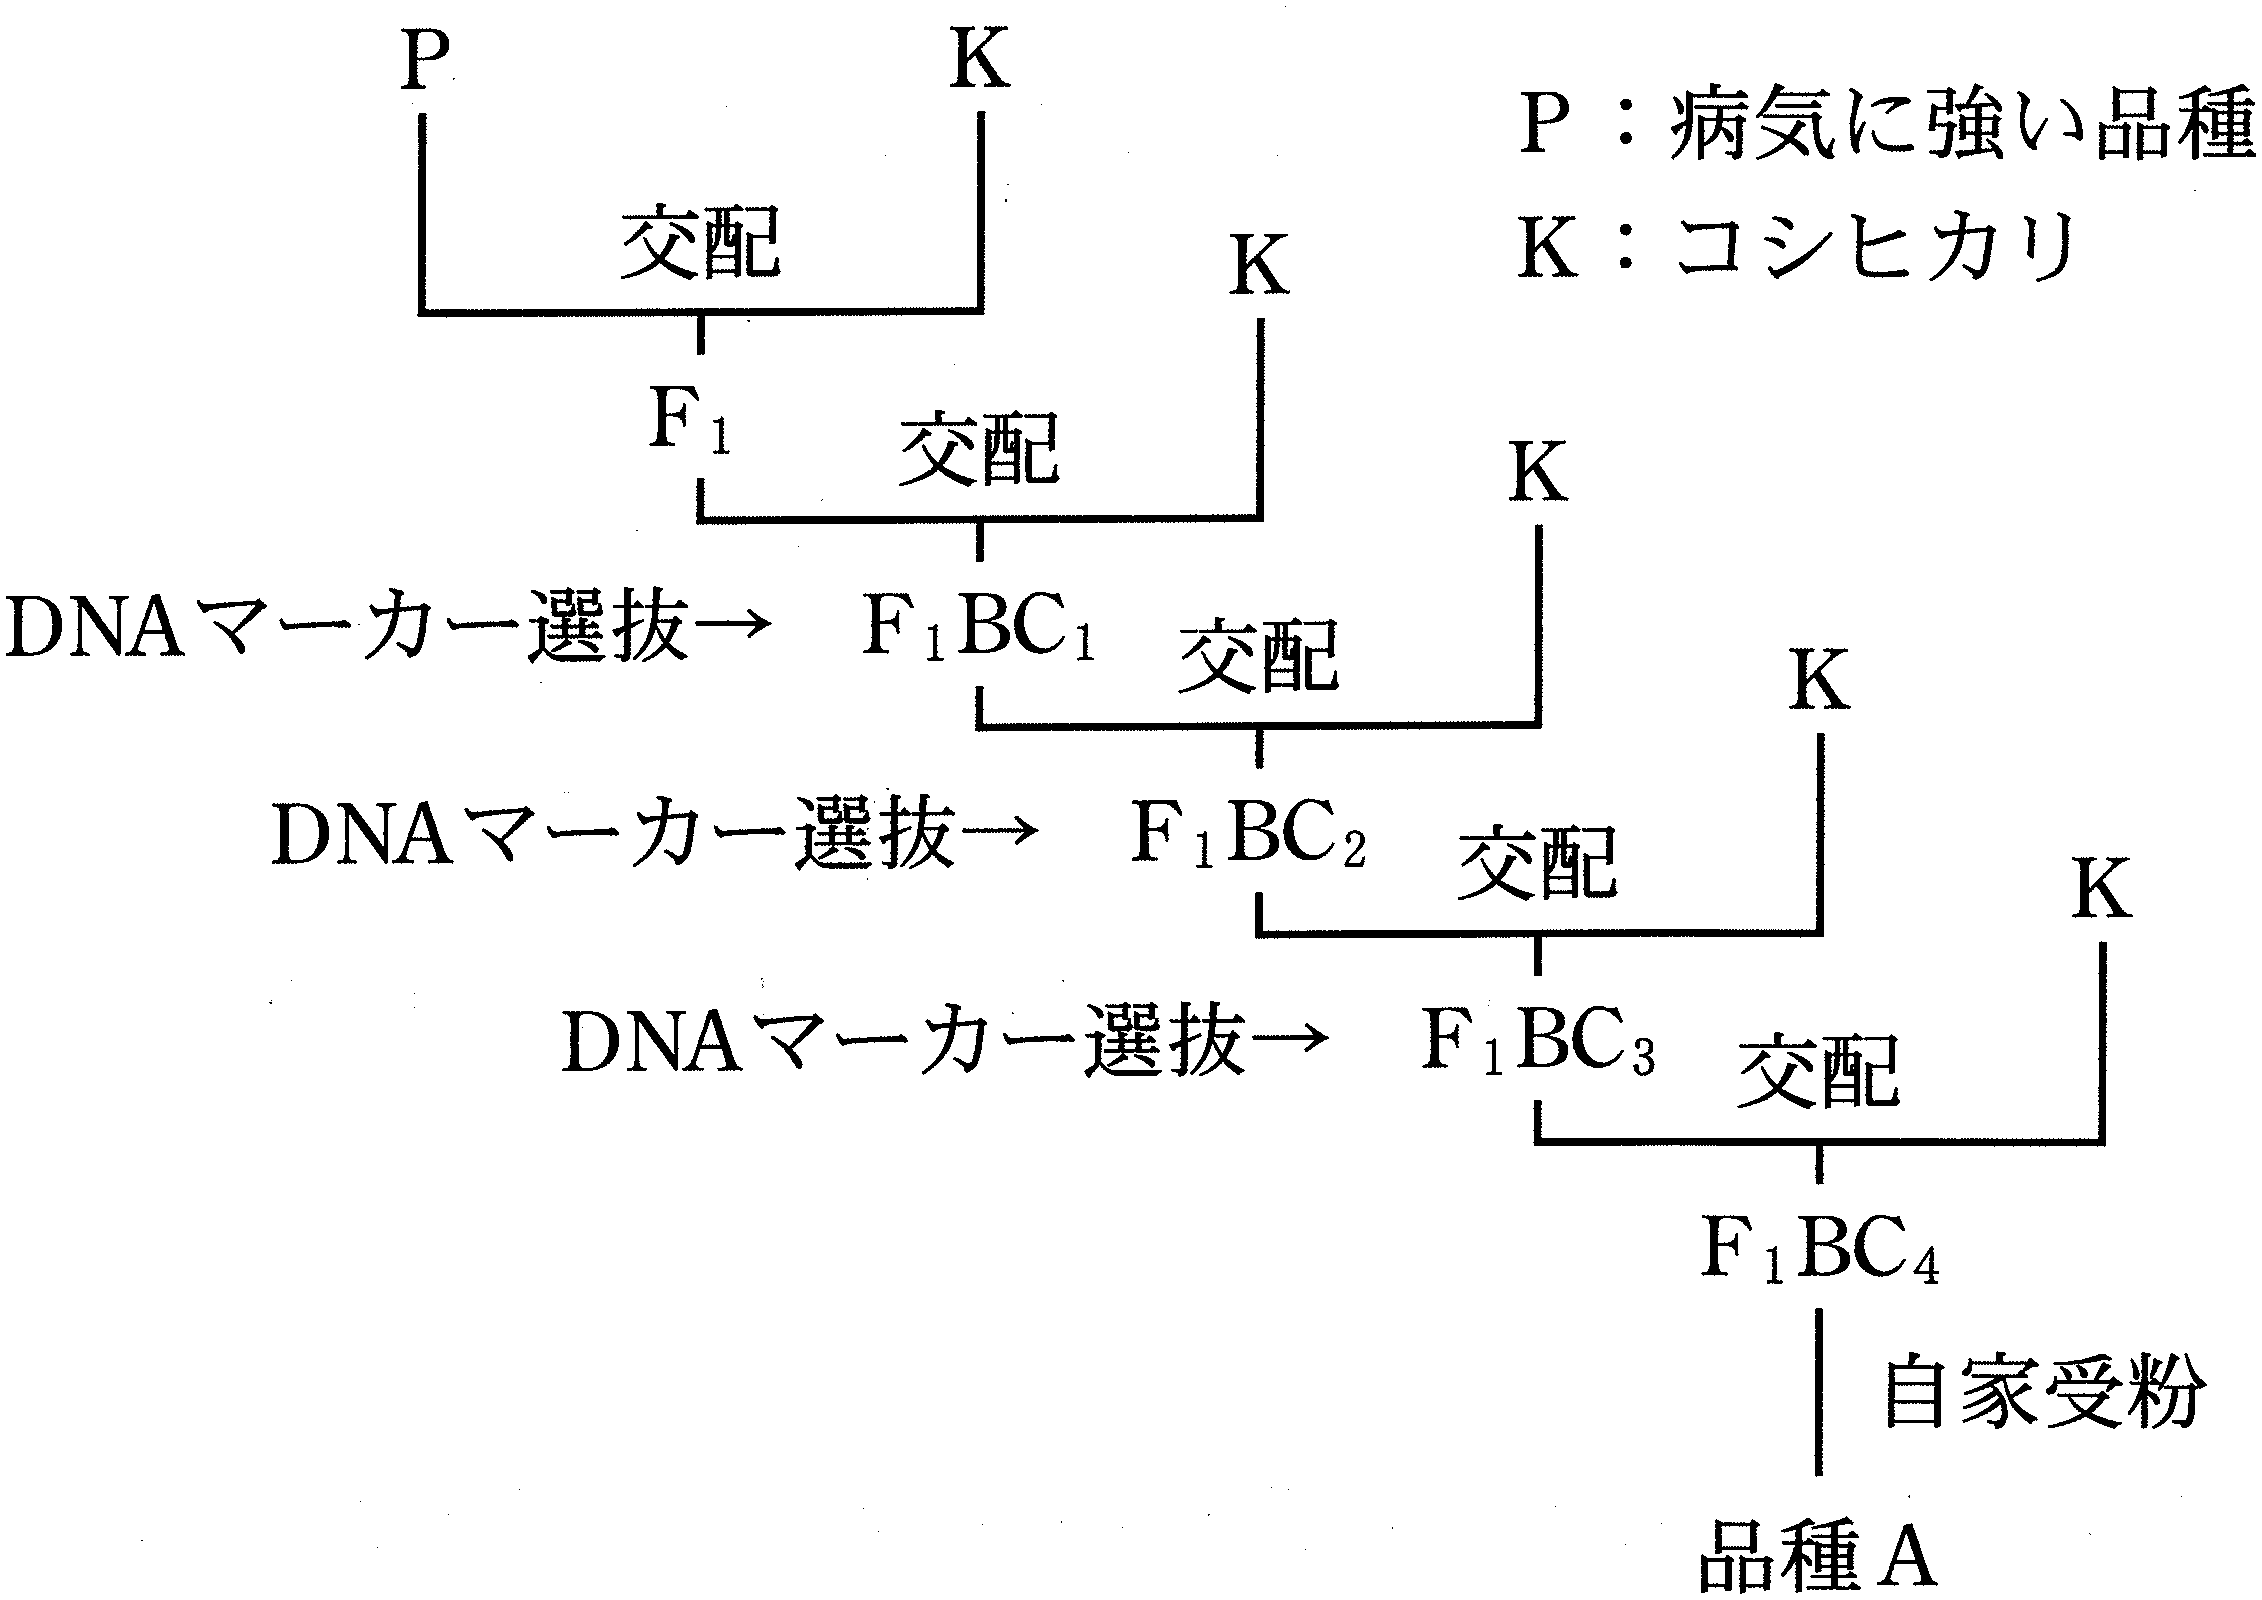
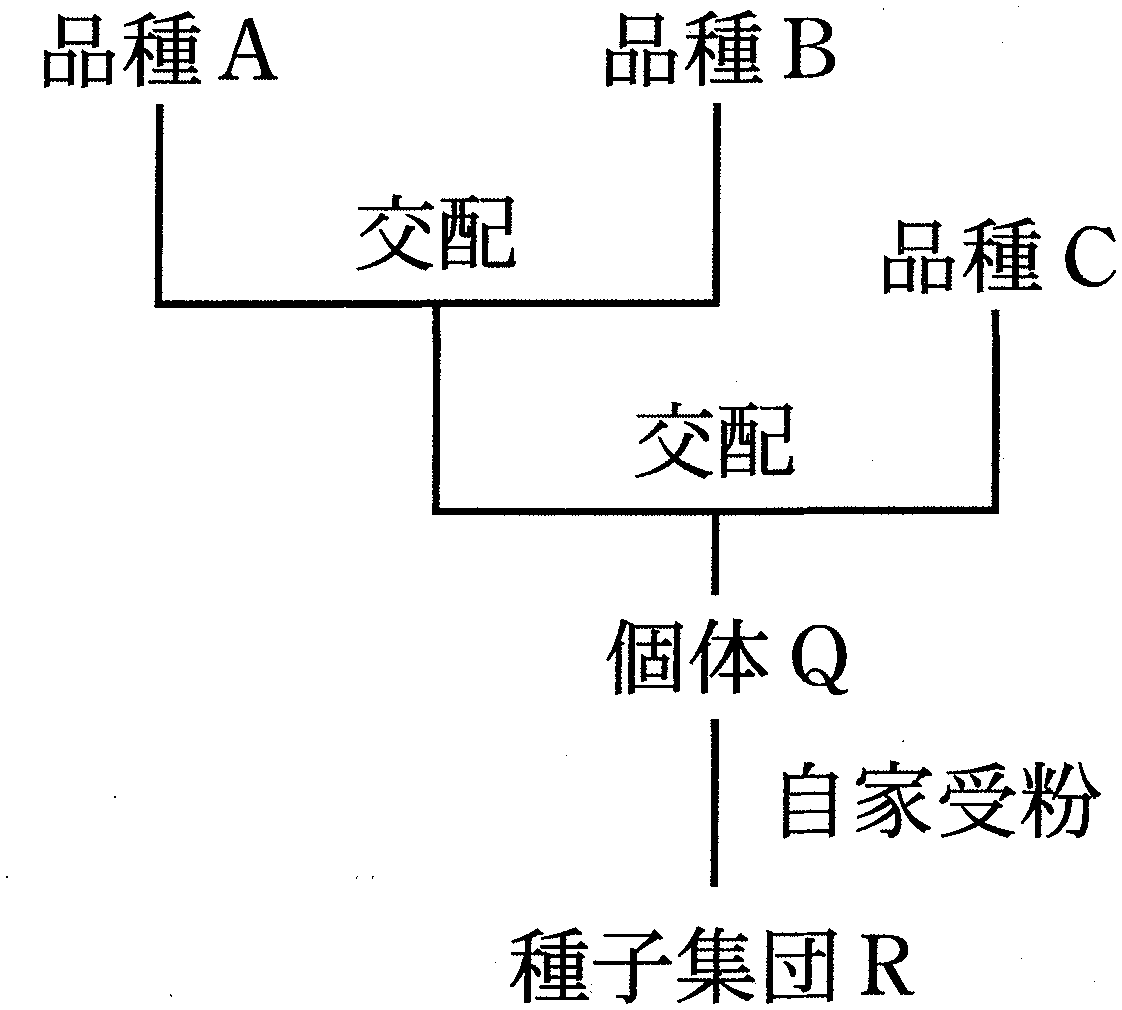
品種 A は,病気に強い品種とコシヒカリとの交配により,病気に強い形質をコシヒカリに付加した品種であり,戻し交配と DNA マーカー選抜法という手法を組み合せることによって作出された(図2—1)。DNA マーカー選抜法では,できた雑種の DNA の塩基配列を調べることによって,その個体のもつ多数の遺伝子がコシヒカリ由来であるのか,交配相手由来であるのか,またそれらがホモ接合であるのか,ヘテロ接合であるのかを判別することができる。導入したい形質(病気に強い)に関わる遺伝子をもち,それ以外の多くの遺伝子がコシヒカリ由来となった雑種を選抜し,自家受粉を経て,形質が固定されたものを最終的に新品種とする。
品種 B は,コシヒカリの突然変異体を選抜することによって得られた品種であり,コメの粘りがコシヒカリより強い。コメの粘りは,胚乳に蓄積する2種類のデンプン分子,アミロースとアミロペクチンの割合によって決まり,アミロースの割合が低いとコメの粘りが強くなる。
品種 C は,草丈の低い品種とコシヒカリとの交配により,草丈が低く,倒れにくい形質をコシヒカリに付加した品種であり,品種 A と同じ方法によって作られた。
実験2 品種 B とコシヒカリとの交配を,雄親と雌親をそれぞれ入れ替えて行い,2種類の 種子を得た。得られた2種類の ,コシヒカリ,品種 B の4つについて,種子の胚乳におけるアミロースの割合を調べたところ,コシヒカリが最も高く,コシヒカリ>コシヒカリを雌親とした >品種 B を雌親とした >品種 B,の順で低くなった。
— 46 —
実験3 図2—2のような交配により作出した1つの個体 Q を自家受粉させ,種子集団 R を得た。この種子集団 R を発芽させ,その後の表現型を調べたところ,病気に強く,自家受粉すると粘りが強いコメのみをつけ,草丈が低いという,品種 A,B,C の性質を兼ね備えた個体が出現した。
図2—2 種子集団 R の作出過程
〔文2〕
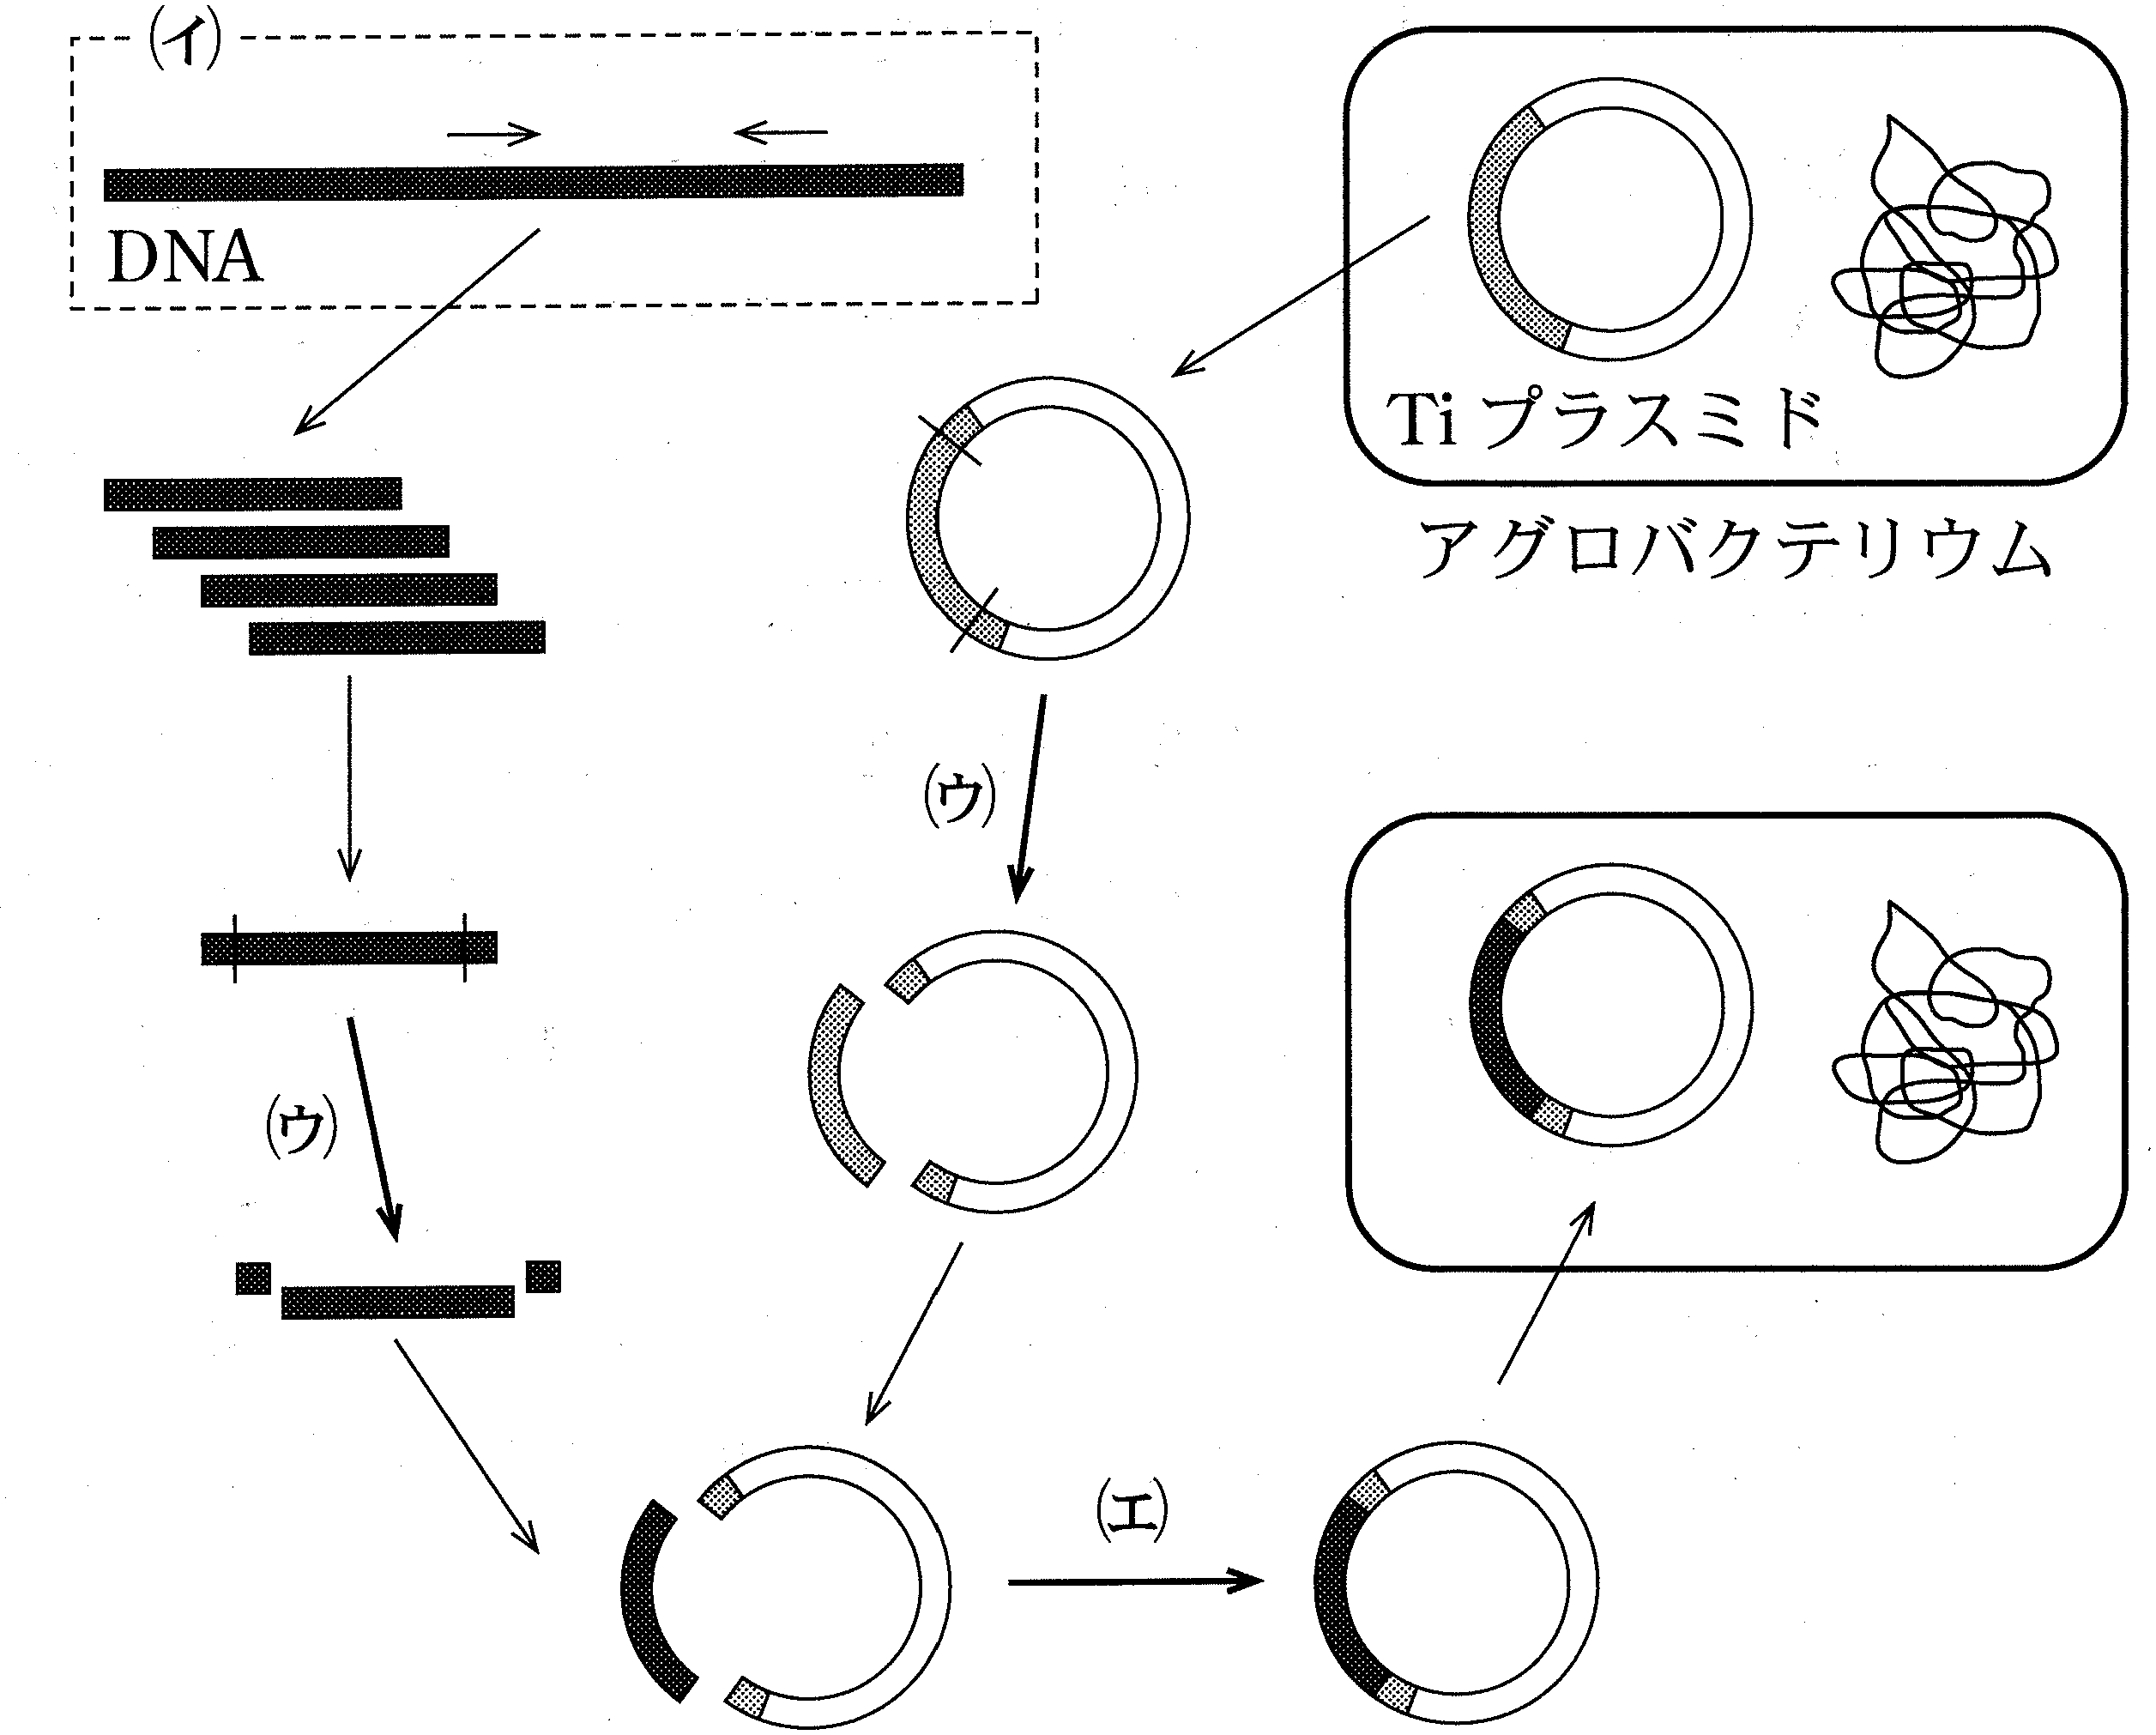
ある植物に他の生物由来の遺伝子を導入して作られた植物を,トランスジェニック植物という。イネでは,土壌細菌であるアグロバクテリウムを用いた遺伝子導入法がよく用いられている。アグロバクテリウムは,自身のもつ Ti プラスミドの一部を,植物細胞の核の DNA に組み込む性質をもつ。この性質を用いた方法によって,ある遺伝子をイネに導入するために,以下の実験4を行った。図2—3はこの実験の前半部の概要を示したものである。また,図中で示された(イ),(ウ),(エ)は,実験説明文中の下線部(イ),(ウ),(エ)の操作に対応している。
実験4 導入したい目的遺伝子を含む DNA を PCR 法によって増幅した。この増幅した DNA に対して,酵素反応を行うことによって特定の塩基配列の部位を切断し,目的遺伝子を含む DNA 断片を得た。続いて,アグロバクテリウムから Ti プラスミドを取り出し,酵素反応を行うことによってその一部の DNA 配列を取り除き,そこに目的遺伝子を含む DNA 断片を酵素反応によって組み込んだ。次に,この目的遺伝子をもったプラスミドをアグロバクテリウムに導入し,寒天培地上でアグロバクテリウムを増殖させ,菌体を感染用の溶液に懸濁し,アグロバクテリウム溶液とした。
— 47 —
籾殻を取り外したイネの種子を殺菌し,植物ホルモン X を含む寒天培地に置いたところ,胚の細胞が増殖し,約2週間後に多数のカルスが形成された。それらのカルスを集め,調製したアグロバクテリウム溶液に数分間浸し,水洗した後,培地上で3日間培養することによって,アグロバクテリウムをカルスに感染させた。その後,カルスの表面に増殖したアグロバクテリウムを殺し,植物ホルモン X を含む寒天培地で2週間程度培養した。更に培養を続けてもカルスに変化は見られなかったが,カルスを植物ホルモン X と Y を含む寒天培地に移したところ,1週間ほどでカルスの一部が緑色になり,2週間後にはその周辺から多数の芽が形成された。芽を含む組織を,植物ホルモンを含まない寒天培地上に移植したところ,芽や根が伸長し,植物体へと成長した。この植物の DNA を調べ,目的遺伝子をもったトランスジェニックイネであることを確認した。
図2—3 遺伝子導入に用いるアグロバクテリウムの調製方法。Ti プラスミドの灰色の部分は,本来アグロバクテリウムが,植物の核の DNA に組み込む DNA 領域であることを示す。
— 48 —
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 実験1について。品種 A とコシヒカリとの交配で得られた 個体の,病気に対する表現型はどのようになるか,答えよ。
B 実験2について。コシヒカリを雌親とした の方が,品種 B を雌親とした よりも,胚乳におけるアミロースの割合が高くなった理由を,被子植物特有の受精様式を考慮した上で,2行程度で述べよ。
C 実験3について。種子集団 R の中に含まれると考えられる純系の種子の割合を,分数で答えよ。
D 下線部(ア)について。以下の(a)と(b)に答えよ。
(a) DNA マーカーによる選抜を行わずに,4回の戻し交配によってできた個体()を考える。仮に独立に遺伝する 対の遺伝子が存在するとした場合,交配相手とコシヒカリの対立遺伝子がヘテロ接合になると期待される遺伝子対の数を, を用いた分数で答えよ。
(b) DNA マーカーによる選抜を行わずに,表現型による選抜によって,品種 A と同等な性質をもつ品種を作出するためには,図2—1で示す過程と比べて,長い年月を必要とする。その理由を2行程度で述べよ。
E 品種 C の草丈を低くさせる遺伝子は,1960 年代からの急激なコメの増産によって,当時の食糧危機を救ったとされる「緑の革命」で中心的な役割を果たした遺伝子である。この変異はある遺伝子の機能欠損による劣性変異である。一方,コムギにおいて「緑の革命」を主導した草丈の低い品種の作出には,草丈が低くなる優性の遺伝子が利用されている。この違いは,イネが二倍体であるのに対して,コムギが六倍体であることと関連があると考えられる。コムギではイネと異なり,劣性変異が利用されにくい理由を2行程度で述べよ。
— 49 —
Ⅱ 文2について,以下の小問に答えよ。
A 下線部(イ),(ウ),(エ)には遺伝子操作でよく用いられる酵素が使われる。それぞれに最も適切な酵素を以下の(1)〜(4)から選び,(イ)—(5)のように答えよ。
(1) DNA 合成酵素
(2) DNA リガーゼ
(3) DNA 分解酵素
(4) 制限酵素
B 下線部(カ)について。イネの種子は,種子貯蔵物質の蓄積の様式が,エンドウの種子とは異なっている。その違いを2行程度で述べよ。
C 下線部(ク)における胚の細胞からカルスへの変化,下線部(サ)におけるカルスから芽への変化のことをそれぞれ何というか。(ク)—○○○,(サ)—×××,のように答えよ。
D 下線部(キ),(ケ),(コ)の培地に含まれる植物ホルモン X と Y について正しい記述を,以下の(1)〜(6)からすべて選べ。
(1) X は離層の形成を促進する。
(2) X は幼葉鞘の先端から基部方向へ移動する。
(3) X をイネの種子に与えると,胚乳のデンプン分解が促進される。
(4) Y を葉に与えると,老化が抑制される。
(5) Y は果実の成熟を促進する。
(6) Y はイネに病気を引き起こす菌が分泌する物質として同定された。
E 下線部(オ)のプラスミドには,目的遺伝子とともに,あらかじめ,ある除草剤に対して耐性となる遺伝子が組み込んである。また,下線部(ケ)と(コ)の培地にはこの除草剤を加えてある。この方法により,トランスジェニック個体を効率よく取得することができる。その理由を2行程度で述べよ。
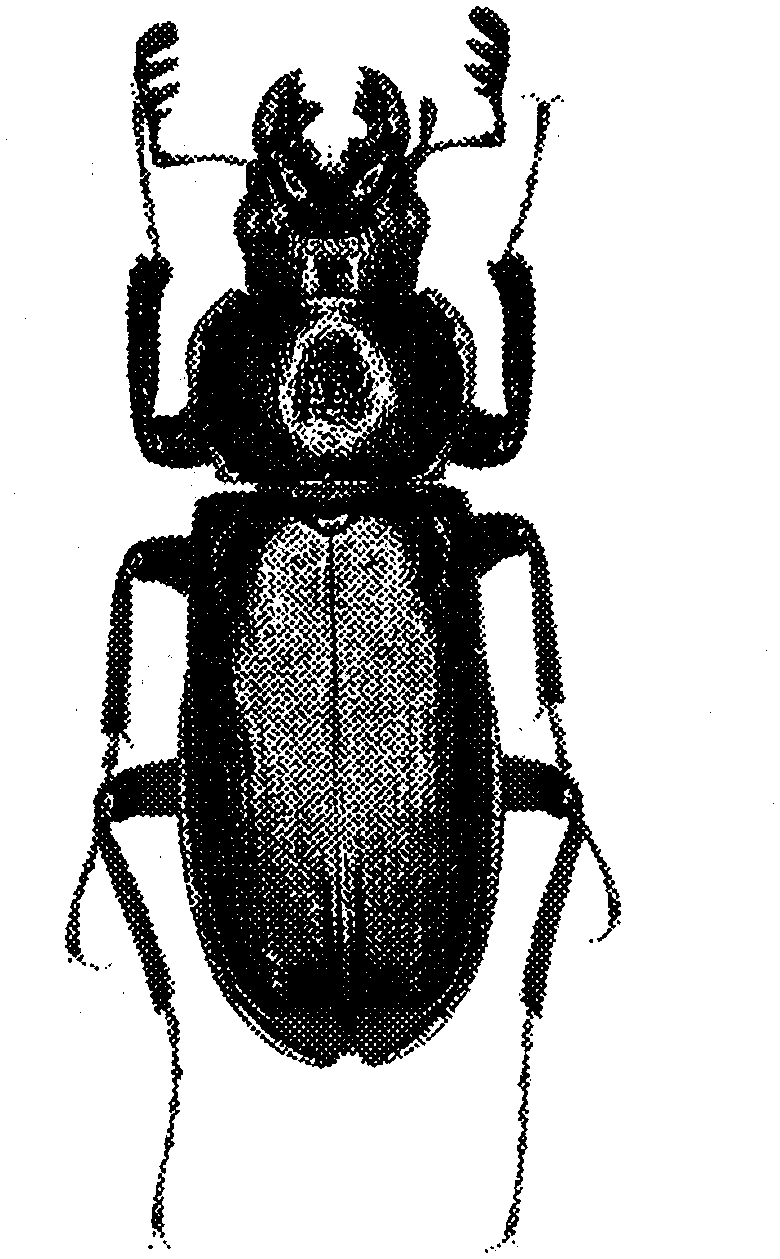
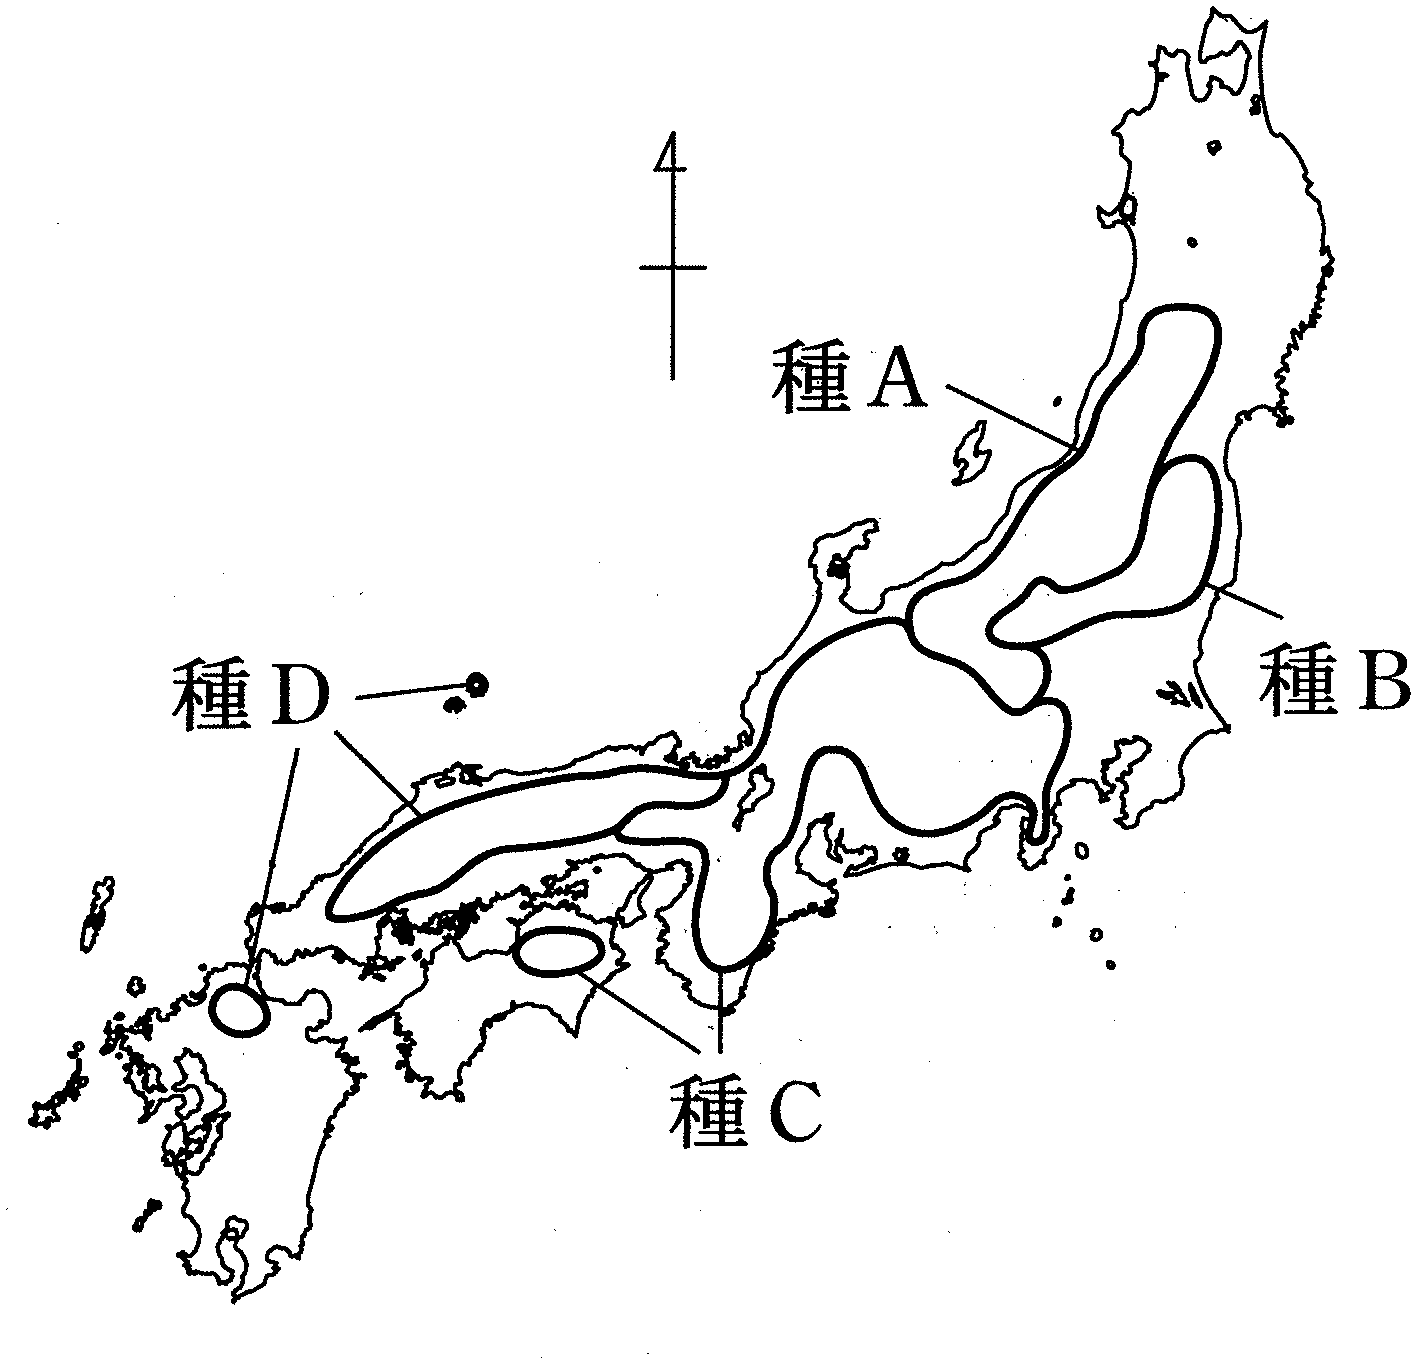
本州・四国・九州の山岳地帯の樹林には,ルリクワガタ属という小型のクワガタムシの仲間(図3—1)が分布し,現在までに 10 種が記載されている。このうち,図3—2に水平分布を示した種 A,種 B,種 C,種 D は,長らく1つの種として扱われてきた。最近になって,これらの種は近縁ではあるものの,交尾器(雌雄が交尾する時に結合する部分で,交尾時以外は腹部に格納されている)の形態が互いに異なり,遺伝子の塩基配列等によっても互いに識別できる4種であることが明らかになった。図3—2の分布域は,それぞれの種の分布確認地点の最も外側の点をなめらかな線で結んだものである。
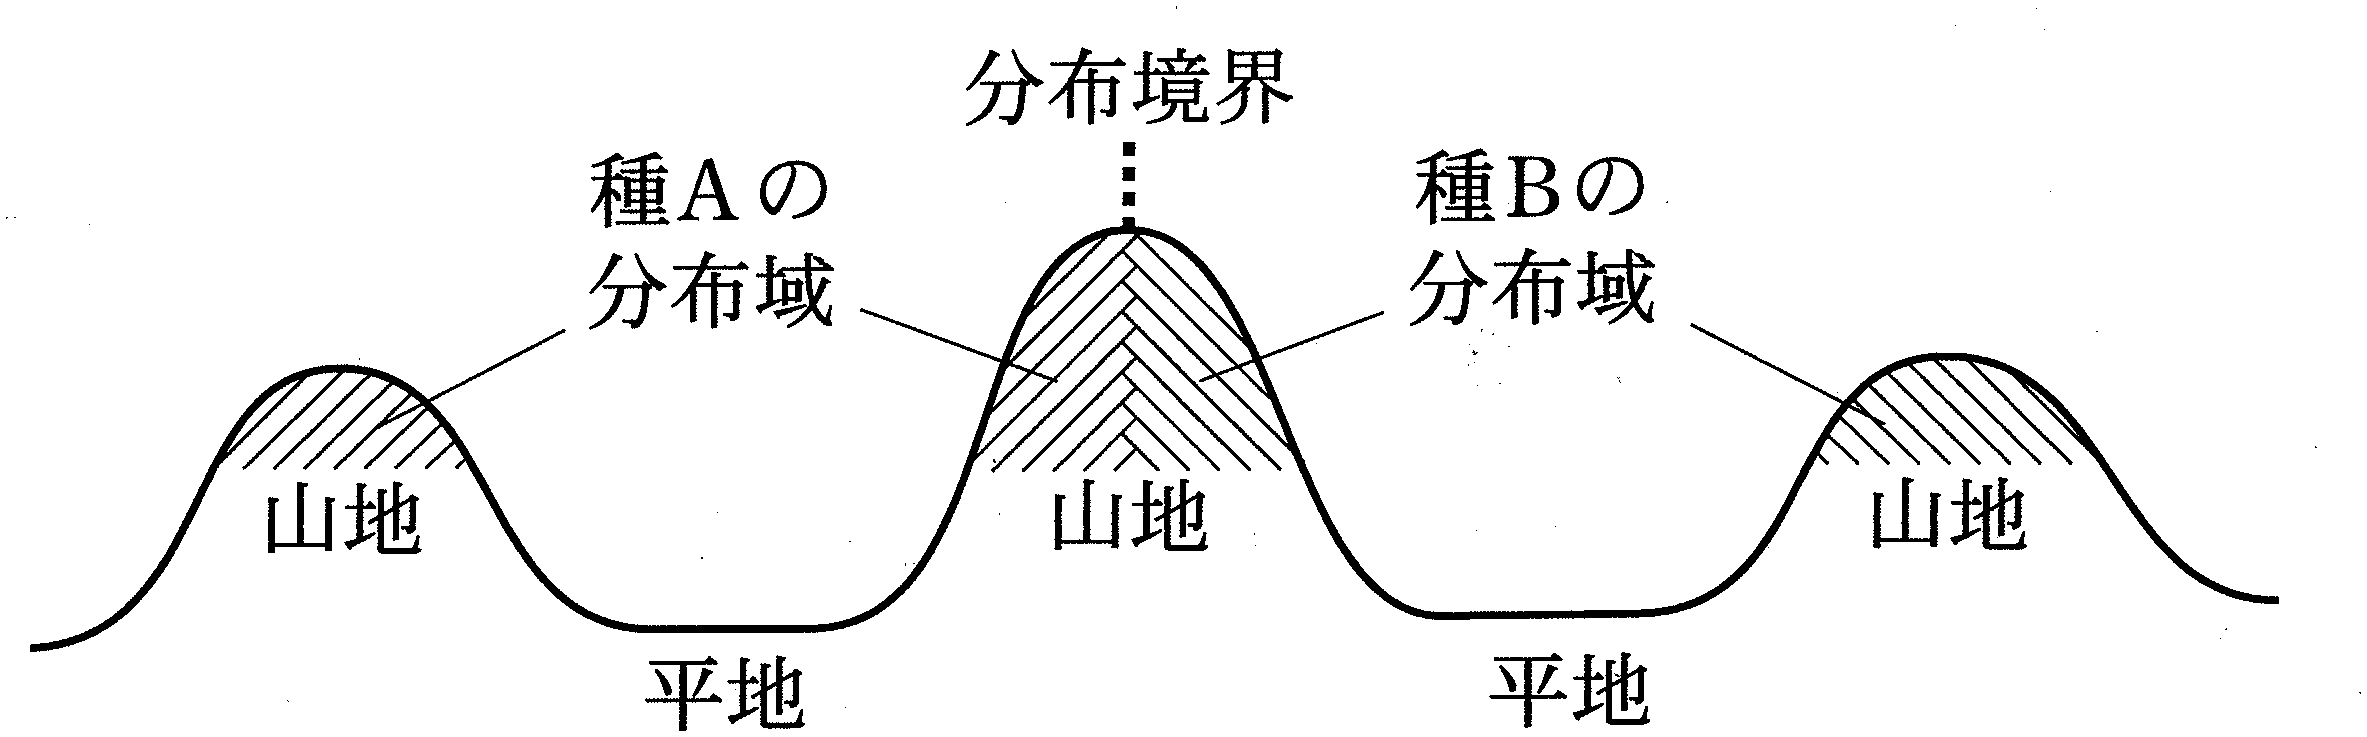
種 A〜種 D の分布域は基本的に重ならない。2種の分布域の間に平地の空白地帯を挟む場合もあるが,生息に適した樹林が連続しているような地域に境界がある場合には互いに隣り合うように分布している。これらの種は気候変動にともなって隔離されて種分化し,その後分布を拡大して,現在のような分布状態になったと推定される。これらの種の分布境界線は,しばしば,図3—3に示したように分水嶺に近い高地に存在している。そのような境界域を詳しく調べると,幅 1 km にも満たない混生地帯をはさんで2種が接している場合がある。したがって,種 A〜種 D は,互いに分布域が接触しても,混ざり合って生息することがない関係だと推定される。
— 53 —
図3—1 ルリクワガタ属の種 A(雄)図3—2 種 A〜種 D の水平分布域図3—3 種 A と種 B の分布境界付近の模式図。種 A〜種 D の分布境界付近は同様の状態になることが多い。
種 A〜種 D では,1つの容器に異種の雌雄を入れておくと,しばしば交尾をしようとする。しかし,種間交配では交尾が成立する割合は低く,子ができることも稀で,たとえ雑種個体が生じたとしても,多くの場合,生存能力や生殖能力が低い。このような種間交配のために子孫の数が減少することを「繁殖(生殖)干渉」といい,種 A〜種 D の例のように,近縁な2種が混ざり合って生息することができない原因のひとつと考えられている。
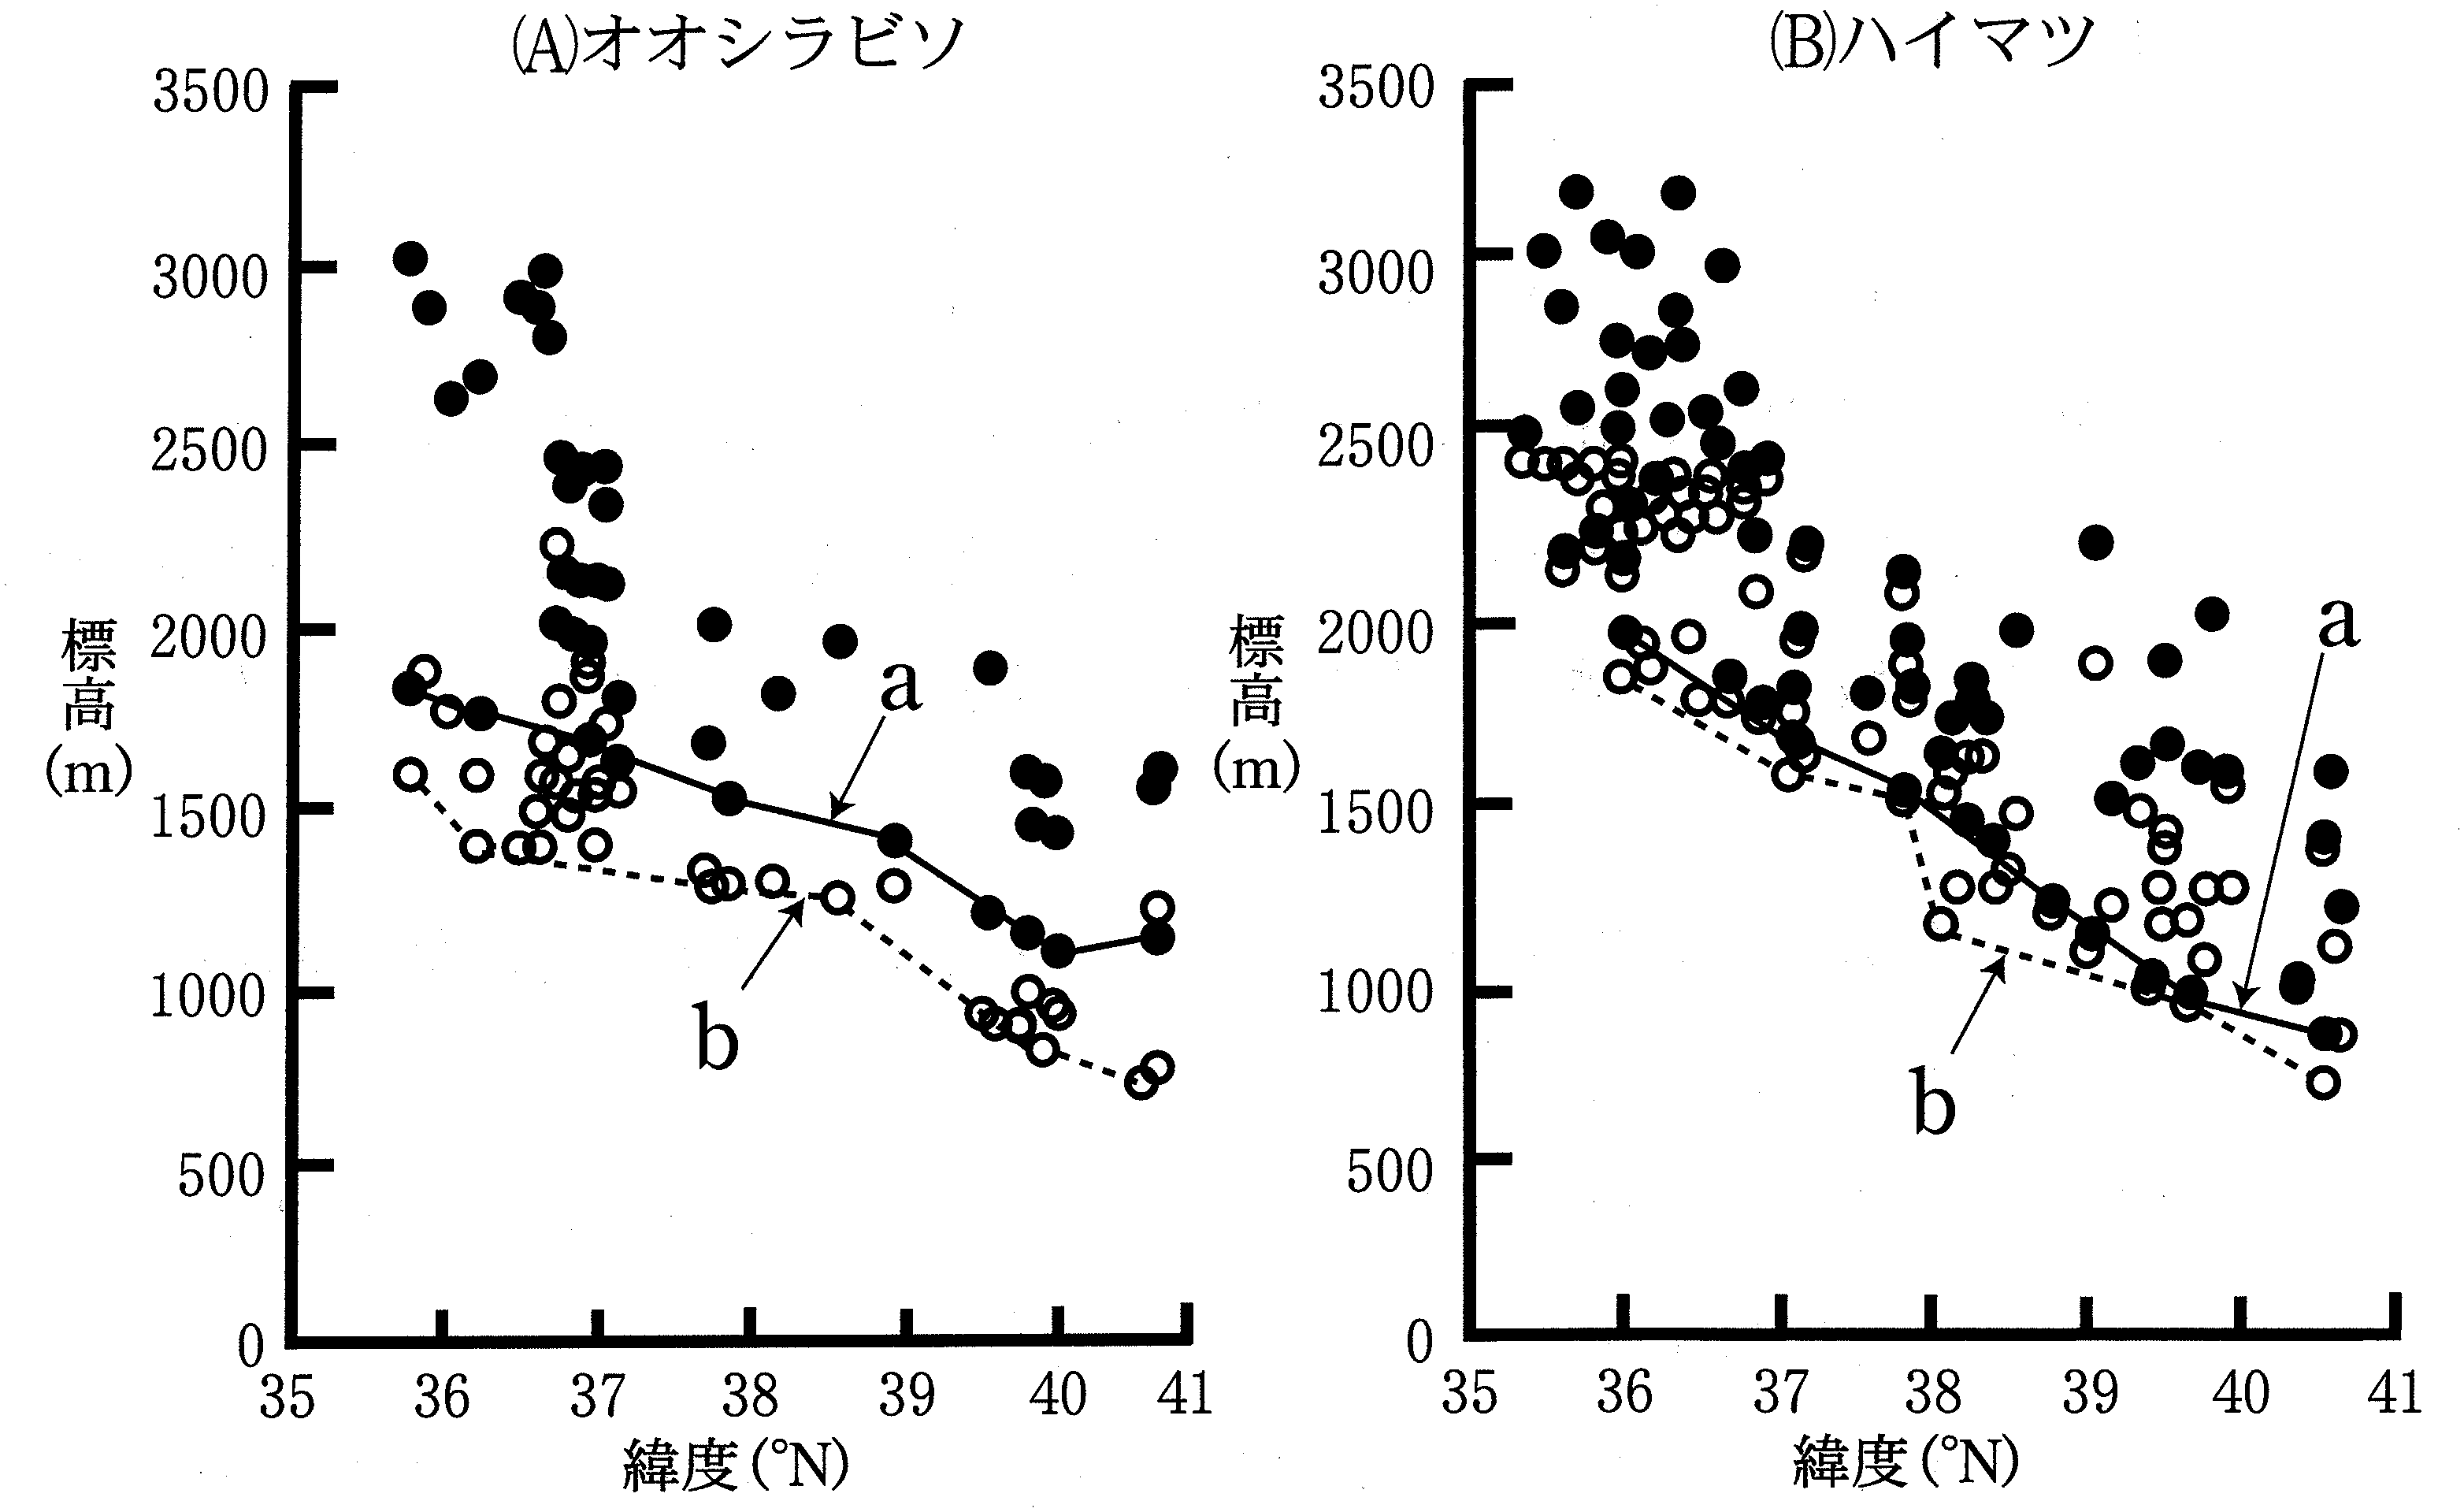
そこで,本州中部〜東北地方の多数の山についてオオシラビソの出現状況を調べる研究が行われた。その結果,オオシラビソの分布する山の頂上の標高と,それらの山でのオオシラビソの分布の下限標高との間に,次のような関係が認められた。図3—4(A)の黒丸(●)は,オオシラビソが分布する山の緯度と頂上の標高を示しており,a 線(実線)はそれらの緯度 1° ごとの下限を結んだものである。一方,白丸(○)は,それらの山においてオオシラビソが分布している最低標高の地点の緯度と標高を示しており,b 線(破線)はそれらの緯度 1° ごとの下限を結んだものである。a 線と b 線は,緯度によらず標高差 300〜400 m を保ってほぼ平行である。また,a 線より頂上の低い山には,その頂上の標高が b 線を超えていても,オオシラビソは全く分布していないことがわかった。オオシラビソのほか,シラビソ,トウヒ,コメツガなどの樹種においても同様の図を作成すると,a 線と b 線は,やはり標高差約 300〜400 m をもってほぼ平行になるので,a 線と b 線の標高差はこれらの樹種に共通の特徴であると思われた。
しかし,ハイマツでは,同様の図を作成すると,図3—4(B)に示すように,a 線と b 線の標高差はオオシラビソなどにくらべて非常に小さかった。ハイマツは高標高地に生える代表的な低木で,他のマツ類と同様に 4 樹としての性質が強く,オオシラビソやトウヒなどの高木は反対に 5 樹の性質を示す。
文1の道具は、A タンパク質は背をつくる側、B タンパク質は A のはたらきをじゃまする側という2つの役の組み合わせ。A も B も胚の背側・腹側の両方にあるので、「どちらに A がはたらけるか」を決める第3の役(背側化因子)が必要になる。注入の実験は「ある場所で A や B を増やしたら、そこの運命がどう変わるか」を見ている。
文中の条件を整理する。B タンパク質は背側の決定を阻害し、B は A のはたらきに影響を与える(A は B に影響しない)。B RNA を腹側だけに入れても目立った変化はない。
A RNA だけを腹側に入れると二次胚ができる。そこに B RNA を混ぜると、腹側で増えた A のはたらきを B がじゃまするので、B を増やすほど二次胚はできにくくなる。つまり縦軸が「二次胚の形成率」で右下がりのグラフになる。
ほかのグラフを見ると、頭部肥大胚は背側がはたらきすぎたときの姿で、B(背をじゃまする側)を増やしてふえることも、この実験で起こることもない。「背側構造が小さい胚」は背側の割球に B を入れたときの結果で、腹側に入れたこの実験では、もとの背側はそのまま残る。デモの模型でも、B を増やすと二次胚の割合だけが下がり、ほかの2つは 0 のまま動かない。
答え
Ⅰ E
A も B も背側・腹側の両方に分布しているのに、A がはたらいて背ができるのは背側だけ。すると、背側と腹側で違うのは背側化因子があるかどうかだけである。
B は A のはたらきをじゃまする。腹側では B が A をじゃまして、A は背をつくれない。背側では、背側化因子が B のはたらきを抑える(B によるじゃまを外す)と考えれば、A は背側でだけはたらける。
この考えは、実験1の4つの結果(何も入れない→正常、A を腹側→二次胚、B を腹側→変化なし、B を背側→背側が小さい)とすべて合う。背側に B を大量に入れると、背側化因子が抑えきれずに A がじゃまされる、というのも説明できる。「背側化因子が A を直接強める」と書くより、B と関連づけて「B を抑えることで、結果として A を背側で機能させる」とまとめるのが問いの要求である。
約 3500 年前には、オオシラビソなどの垂直分布が、いまより 300〜400 m 高い方にずれていた。高い方へずれたのは、同じ気温の場所がいまより高い所にあった、つまりその時代のほうが暖かかったということ。
山を 100 m 登るとおよそ 0.6 ℃ 下がるので、ずれの大きさを気温にすると
となる。選択肢の中で一番近い「約 2 ℃ 高温」を選ぶ。低温の選択肢は、ずれの向きが逆である。
答え
Ⅱ E
下線部(ウ)は、頂上が a 線より低い山には、頂上が b 線(いまの分布の下限)を超えていても、オオシラビソがまったくいない、という事実。しかも a 線と b 線の差は 300〜400 m で、下線部(オ)の「3500 年前には垂直分布が 300〜400 m 高かった」と同じ大きさである。
約 3500 年前の暖かい時代には、分布の下限もいまより 300〜400 m 高かった。頂上がその下限より低い山(いまの b 線+300〜400 m、つまり a 線より低い山)では、生育できる高さが山の上になくなり、オオシラビソは絶滅した。
その後寒くなって、下限はいまの b 線まで下がり、そうした山の上部も気候としては生育できるようになった。しかし、まわりの山から種子が届いて定着するのはむずかしく、まだもどれていない。デモの模型では、種子がもどれないと a 線と b 線の差がちょうど上がった高さと同じになり、種子がもどれると差は数十 m まで縮む。「昔の温暖期の絶滅」と「いま戻れていない」の2つを書く。