PDFの 20 枚目
生 物
第1問
次の文1〜文3を読み,Ⅰ〜Ⅲの各問に答えよ。
〔文1〕
真核生物の細胞内には,膜に囲まれた細胞小器官が多数存在している。これらの細胞小器官は,細胞質基質とは異なる環境を細胞内に作り出し,さまざまな反応の「場」を提供している。核は核膜により仕切られており,染色体や核小体を含んでいる。1 と 2 は二重の膜により囲まれており,1 の内部には好気呼吸に関与する酵素類が多く含まれている。植物に特徴的な細胞小器官である 2 は,さらに葉緑体や有色体に分化している。一重の膜に囲まれた細胞小器官には,ゴルジ体,液胞,小胞体などがあり,それぞれに異なる重要な役割を担っている。これらの細胞小器官が正常に機能するためには,そこで多様な反応に関与するさまざまなタンパク質や RNA が,それぞれの目的の場所に輸送される必要がある。そのため,真核細胞には細胞の内部でさまざまなタンパク質や RNA を運搬するしくみが存在する。
〔文2〕
リボソームは RNA とタンパク質からなる巨大な複合体であり,遺伝情報の翻訳を担っている。ほ乳類のリボソームは4種類のリボソーム RNA と79種類のリボソームタンパク質により構成されており,その活性はこれらの構成要素の中でも主にリボソーム RNA により担われていることが明らかになりつつある。リボソームが真核細胞内で合成される過程を見てみよう。まず,(ア) (イ) (ウ) 3 を通して行われている。
PDFの 21 枚目
〔文3〕
一重膜に囲まれた細胞小器官の間では,小さな膜の袋(膜小胞)をやりとりすることにより物質の輸送が行われている。酵母はこの輸送のしくみを研究するうえで優れた研究材料であり,酵母の分泌タンパク質である酵素 A については合成されてから以下のような過程を経て分泌されることがこれまでに明らかとなっている。
酵素 A は,小胞体表面に存在するリボソーム上で合成され,小胞体内腔へと取り込まれる。この段階で酵素 A は最初の修飾(小胞体型の糖鎖の付加)を受けるが,小胞体への取り込みとこの修飾とは翻訳と並行して起こるため,修飾を受けていない酵素 A が検出されることはない。続いて酵素 A は小胞体から形成される膜小胞の内部に取り込まれ,小胞体からゴルジ体へと輸送される。ここで,酵素 A はゴルジ体に特異的な糖鎖の修飾を受ける。これにより酵素 A の分子量はゴルジ体で増加するが,この修飾は一様なものではないため,修飾後の酵素 A の分子量は分子ごとに異なったものとなる。そののち,酵素 A はゴルジ体から形成される膜小胞の内部に取り込まれて細胞膜へと運ばれ,最終的に細胞の外へと分泌される。このような輸送のしくみを明らかにする過程では,(エ)
(注1) 小胞体内腔では,タンパク質中の特定のアミノ酸残基(アスパラギン残基など)に対し,オリゴ糖が共有結合により付加される。ゴルジ体では,そのオリゴ糖にさらに糖が付加されるなどの修飾を受け,ゴルジ体に特異的な糖鎖が形成される。
PDFの 22 枚目
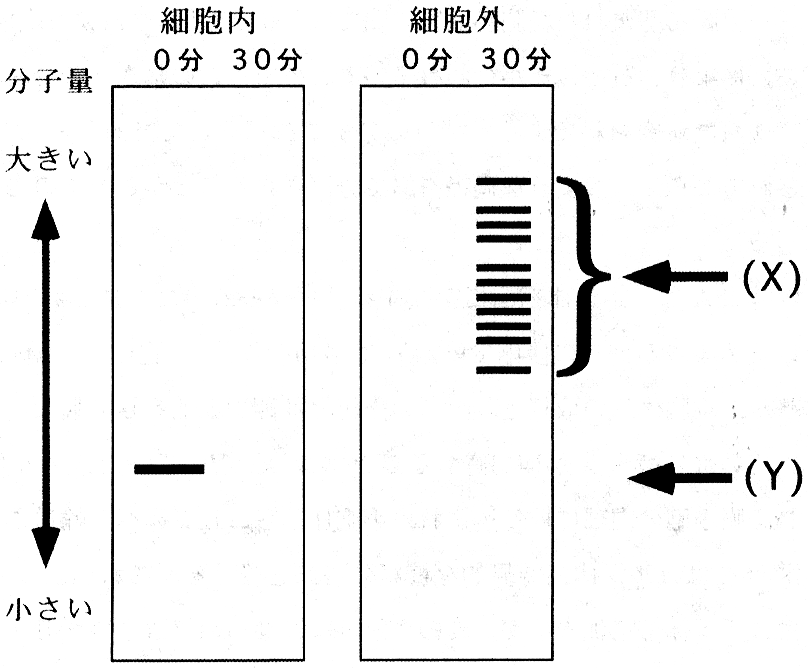
実験1 野生型の酵母細胞を放射性同位体 35 S 35 S
図1 標識された酵素 A の電気泳動パターンの模式図 実験2 下線部(エ)に関し,生存に必須な遺伝子産物の研究では,高い温度で培養した際にのみ表現型を示す温度感受性突然変異体が用いられる。さて,膜小胞を介したタンパク質の輸送機構に損傷を持つ a,b,c の3つの酵母温度感受性突然変異体が得られた。これらの突然変異体は,23 ℃ で培養した場合には膜小胞を介したタンパク質の輸送が野生型と同様におこっていたが,35 ℃ の高温条件下で培養するとその輸送が停止した。23 ℃ で培養したこれらの変異体を,35 ℃ に移して1時間培養したのち細胞内部の様子を電子顕微鏡で観察したところ,以下のような表現型が観察された。
PDFの 23 枚目
(i) 変異体 a では,細胞の中に多くの膜小胞が蓄積していた。
(ii) 変異体 b では,細胞の中に肥大したゴルジ体が蓄積していた。
(iii) 変異体 c では,細胞の中に小胞体が大量に蓄積していた。
また,これらの変異体を35 ℃ で1時間培養したのち,35 S
(注2) 温度感受性の原因はさまざまであるが,多くの場合は変異を持つタンパク質の高次構造が高温条件下で変化し,正常に機能できなくなることに起因すると考えられている。
〔問〕
Ⅰ 文中の空欄1〜3に適当な語句を入れよ。
Ⅱ 文2について,以下の小問に答えよ。
A 下線部(ア)について。真核生物では,タンパク質をコードする遺伝子は多くの場合イントロンにより分断されており,RNA に転写されたのち核内でスプライシングと呼ばれる反応によりイントロン部分が除去され,完成型の mRNA となる。続いて mRNA は細胞質へと輸送され,タンパク質へと翻訳される。このように mRNA の合成と翻訳は異なる区画で行われるため,スプライシングを受ける前の mRNA が翻訳されることはない。では,イントロン部分を含む mRNA がスプライシングを受けずに翻訳された場合,どのようなことがおこると考えられるか。以下の選択肢の中から,正しいものを1つ選べ。
PDFの 24 枚目
(1) イントロンは本来アミノ酸配列を指定していないので,合成されるタンパク質のアミノ酸配列や翻訳の効率に変化はなく問題は生じない。
(2) イントロンは本来アミノ酸配列を指定していないので,合成されるタンパク質のアミノ酸配列に変化はないが翻訳の効率が低下する。
(3) イントロンは本来アミノ酸配列を指定していないので,翻訳がエキソンとイントロンの最初の境界で止まってしまう。
(4) イントロンは本来アミノ酸配列を指定していないので,イントロン部分が翻訳されてしまうことにより異常なタンパク質が作られる。
(5) イントロンは本来アミノ酸配列を指定していないので,イントロン部分でアミノ酸がタンパク質に無作為に取り込まれてしまうことにより異常なタンパク質が作られる。
B 下線部(イ)について。以下のもののうち,細胞質で翻訳されたのち核に輸送されるものはどれか。(1)〜(6)から2つ選べ。
(1) ペプシン
(2) ヒストン
(3) 免疫グロブリン
(4) アミラーゼ
(5) ケラチン
(6) DNA ポリメラーゼ
C 下線部(ウ)について。ほ乳類の細胞には,きわめて多数のリボソームが存在し(細胞あたり数百万個),リボソーム RNA の量は細胞内の全 RNA 量の8割に及ぶ。一般的に生物はリボソーム RNA 遺伝子の数を増やすことによってこのような多量のリボソーム RNA を確保している。実際,ヒトのゲノムには,それぞれのリボソーム RNA 遺伝子が100個以上ずつ存在する。一方,それぞれのリボソームタンパク質をコードする遺伝子は1個ずつしか存在しない。リボソーム RNA をコードする遺伝子とは異なり,リボソームタンパク質をコードする遺伝子が1個ずつで十分である理由を考察し,2行以内で述べよ。
D リボソームタンパク質の合成には既存のリボソームが必要である。では,最初のリボソームタンパク質はどのように作られたのだろうか。原始生命体において触媒活性を持つ分子がどのように進化したかをふまえ,最初のリボソームタンパク質を翻訳したと推測される翻訳装置の特徴を1行で述べよ。
PDFの 25 枚目
Ⅲ 文3および実験1,2について,以下の小問に答えよ。
A 実験2の変異体 a では,培養終了時細胞内部に図1中 X に対応する分子量の標識された酵素 A が蓄積していた。変異体 a では,酵素 A の輸送のどの段階に異常があると考えられるか。理由とともに2行以内で述べよ。
B 実験2の変異体 b,c に関して,培養終了時細胞内部に蓄積していると思われる酵素 A は,図1中 X,Y のどちらの分子量のものであると考えられるか。理由とともにそれぞれ2行以内で述べよ。
C 実験2の変異体 a と変異体 c をかけ合わせることにより,両方の変異を同時に持つ二重変異体を作製した。この二重変異体を35 ℃ で1時間培養したのち,実験2と同様に 35 S 35 S
a この二重変異体において,培養終了時に細胞内に検出されると予想される標識された酵素 A の分子量について,正しいものを以下の選択肢より選べ。
(1) 図1中 X の位置に検出される。
(2) 図1中 Y の位置に検出される。
(3) 図1中 X と Y 両方の位置に検出される。
(4) 図1中 X と Y の中間の位置に検出される。
b この二重変異体の細胞内部の様子を,培養終了後に電子顕微鏡により観察した場合,どの細胞小器官が主に蓄積していることが予測されるか。理由とともに2行以内で述べよ。
PDFの 26 枚目
第2問
次の文1〜文3を読み,Ⅰ〜Ⅲの各問に答えよ。
〔文1〕
(ア)
光合成の電子伝達系は葉緑体のチラコイド膜とよばれる袋状の膜に存在する。電子伝達にともなってチラコイド膜を横切る水素イオンの移動が起こり,チラコイド膜内腔(袋状の膜の内側の可溶性の区画)の水素イオン濃度が上昇する。その結果,膜の内外で pH 勾配が生じる。チラコイド膜には ATP 合成酵素が存在し,その酵素内部の特別な通路を水素イオンが濃度勾配に従って流れ,ATP が合成される。(イ)
光合成の電子伝達系では2種類の光化学系(光化学系Ⅰと光化学系Ⅱ)が光エネルギーを吸収して,ATP と還元力(X・2H)の生産を行う。水の分解反応では,それぞれの光化学系が光エネルギーを吸収して,2分子の水を1分子の酸素,4個の水素イオン,そして4個の電子に分解する。このとき,4個の電子は電子伝達系に渡され,4個の水素イオンはチラコイド膜内腔に蓄積する。さらに,その4電子が電子伝達系を伝わっていく間に,8個の水素イオンがチラコイド膜内腔に取り込まれる。このようにして,電子伝達反応にともなってチラコイド膜内腔の水素イオン濃度が上昇する。また,電子は電子伝達系をへて最終的に補酵素 X に渡されて,2個の電子あたり1分子の還元力(X・2H)を作りだす。一方,チラコイド膜の ATP 合成酵素は,3個の水素イオンをチラコイド膜外部にくみ出すごとに1分子の ATP を生産する。
このようにして,電子伝達系により作り出された ATP および還元力(X・2H)のエネルギーは,葉緑体のストロマに存在する炭酸固定系によって利用され,これによって二酸化炭素から有機化合物が合成される。
PDFの 27 枚目
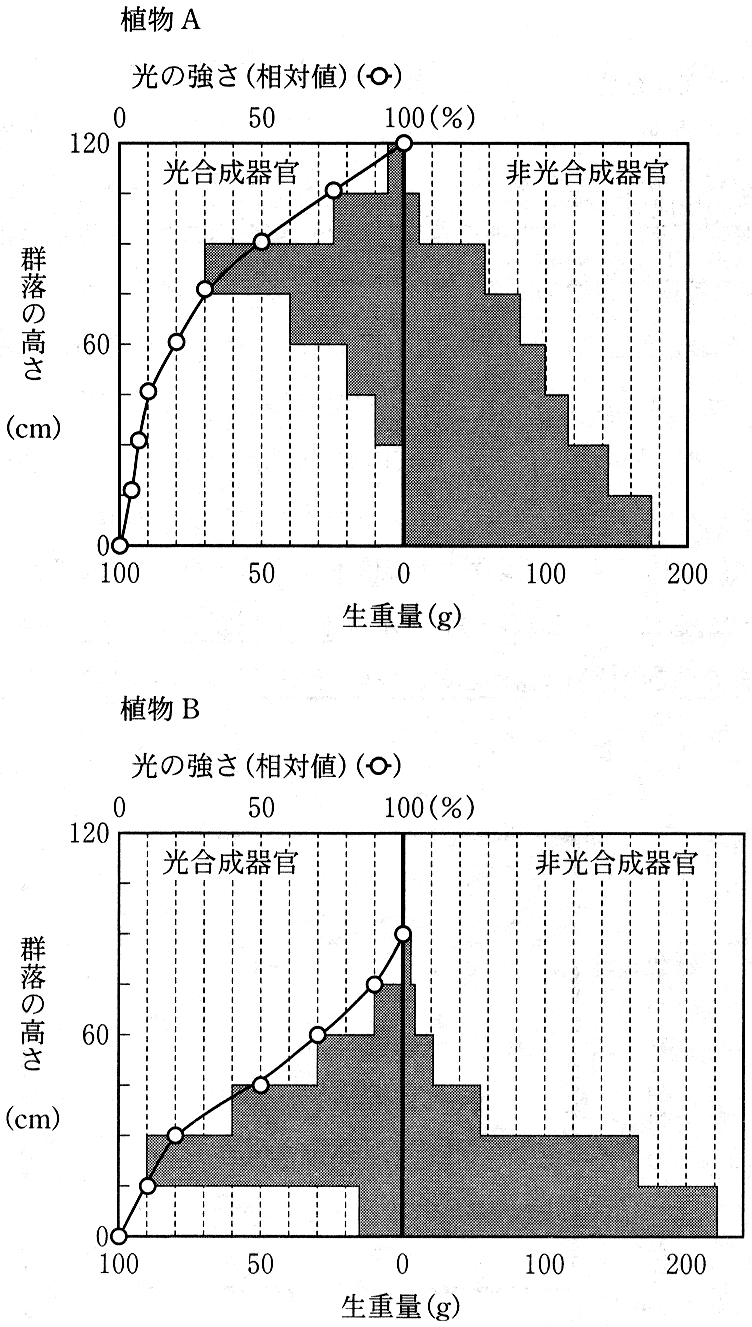
図2 2つの異なる植物 A,植物 B の群落について,40 cm 四方の区画を設け,群落内の高さごとの相対的な光の強さを測定し,層別刈取法を行って得られた結果をもとに作成した生産構造図 PDFの 28 枚目
〔文2〕
野外では多くの場合,植物は集まって群落を構成しており,植物群落における葉の集まり(葉群)を光合成生産の単位と見なすことができる。葉群の光合成速度は個々の葉の光合成速度の和である。しかし,それぞれの葉が受ける光の強さはその位置や向きによって大きく異なるため,葉群内の葉がみな同じような光合成速度をもつわけではない。群落内の光環境と葉(光合成器官)や茎・花など(非光合成器官)の分布を高さ別に調べた(層別刈取法)ものを生産構造図という。図2(前ページ)は植物 A と植物 B の群落について調べた生産構造図である。
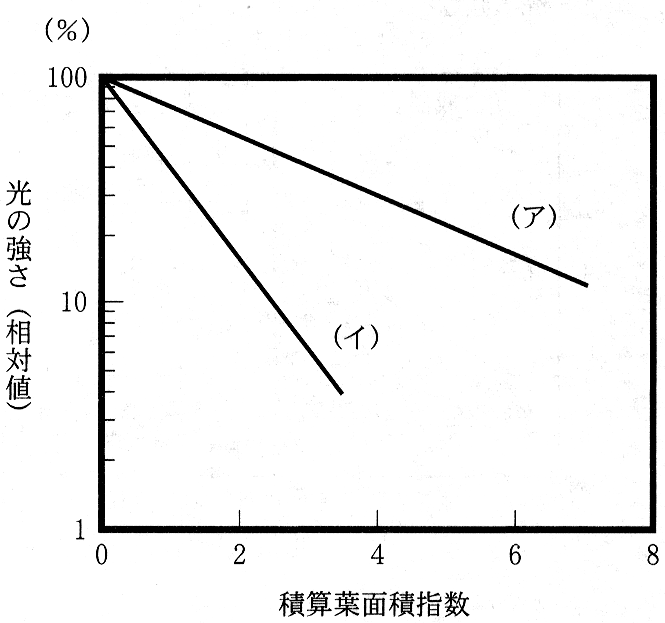
また,土地面積あたりの葉面積を葉面積指数という。一般に,ある高さにおける相対的な光の強さの対数と,群落最上部から光強度を測定した点までで積算した葉面積指数(積算葉面積指数)は直線関係にある。ただし,その関係は植物の群落によって異なっている(図3)。(ウ)
図3 光の強さと積算葉面積指数の関係 PDFの 29 枚目
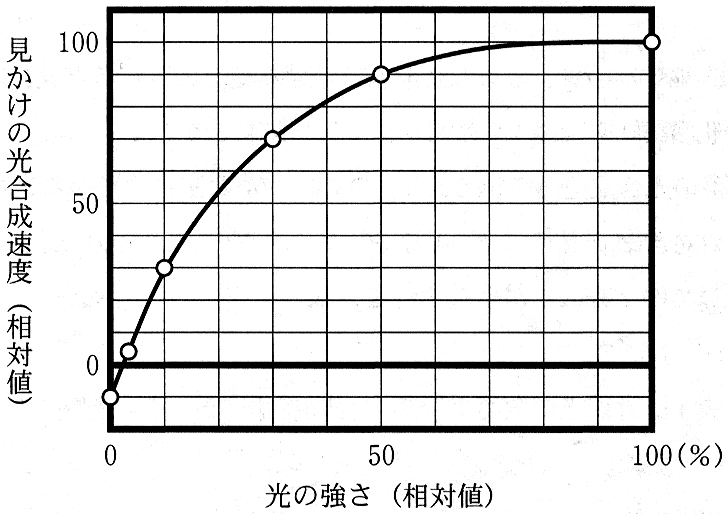
図4 植物Aの光—光合成曲線 PDFの 30 枚目
〔文3〕
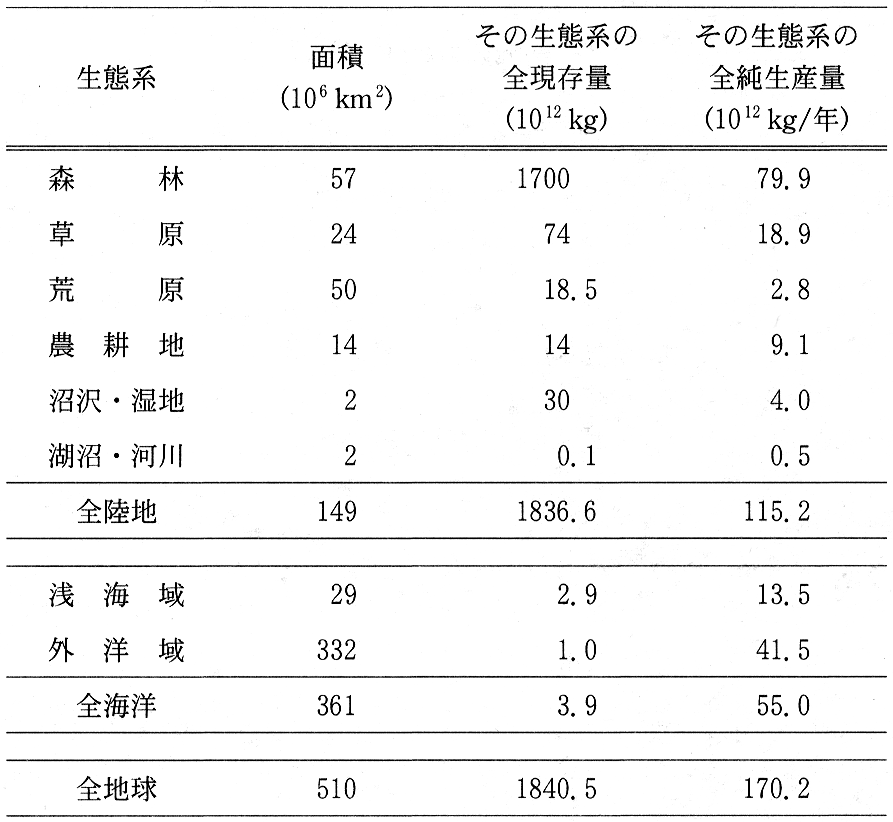
表1は,地球上のさまざまな生態系における植物の現存量と純生産量の推定値で,有機化合物の乾重量で表されている。地球全体では,1.8 × 10 15 k g 1.7 × 10 14 k g
表1 地球上の主要生態系の植物の現存量と純生産量の推定値 PDFの 31 枚目
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。植物体がすべて有機化合物から成り立っていて,1.0 g 16.8 k J
ある地域の純生産量が 3.0 k g / m 2 8.0 × 10 3 k J / m 2
B 下線部(イ)について。以下の(1)〜(4)から,これを説明するうえで,正しくないものをすべて選び,番号で答えよ。
(1) チラコイド膜を暗所で pH 4 の緩衝液に長時間浸すことで,チラコイド膜内腔を pH 4 にした。その後,ADP とリン酸を含む pH 8 の緩衝液に移すと,ATP が合成された。
(2) 水素イオンの濃度勾配を解消する脂溶性の弱酸である2,4-ジニトロフェノールでチラコイド膜を処理すると,ATP 合成は抑制されずに電子伝達系だけが阻害された。
(3) 電子伝達系の活性には,袋状の構造が破れていないチラコイド膜が必要であるが,ATP 合成にはチラコイド膜の状態は関係ない。
(4) チラコイド膜を構成する脂質二重膜は,水素イオン(H + O H − K + C l −
C 光合成の電子伝達系によって1分子の水が分解されるとき,生産されるエネルギーは ATP 何分子に相当するか計算せよ。ただし,1分子の還元力(X・2H)を作り出すのに必要なエネルギーは,3分子の ATP 生産に相当するものとし,還元力(X・2H)のエネルギーも加えて計算すること。
Ⅱ 文2について,以下の小問に答えよ。
A 図2の植物 A,植物 B の群落をそれぞれ何型とよぶか。また,それらは図3の(ア),(イ)のどちらに相当するかを記せ。
B 図2の区画において,植物 B の葉 1.0 g 60 c m 2 15 c m
PDFの 32 枚目
C 下線部(ウ)について。図2,図3から植物 B の型の群落における光合成は,光を利用するうえでどのような特徴を持っていると言えるか。3行程度で述べよ。
D 図4は植物 A の光—光合成曲線である。この植物 A の地上 45 c m
E 一般に葉面積指数の増加は光合成器官である葉の面積の増加を意味するため,葉面積指数が大きい群落ほど光合成による生産速度が大きいことが期待される。しかし,実際の植物群落では最適な葉面積指数が存在する。その理由を3行程度で述べよ。
Ⅲ 文3について,以下の小問に答えよ。
A 表1で,現存量 1 k g 1 k g
B 表1で,それぞれの生態系において植物の現存量が平衡に達している場合,現存量あたりの純生産量は何を意味していると考えられるか,以下の(1)〜(4)から1つ選べ。
(1) その生態系内の植物の現存量に対する植物の1年間の成長の割合。
(2) その生態系内の植物の現存量に対する植物の1年間の枯死量の割合。
(3) その生態系内の植物を構成する有機物が1年間で更新される回数。
(4) その生態系を構成する有機物が1年間で更新される回数。
C 表1の全陸地と全海洋について,現存量を純生産量で割った値を計算し,有効数字2桁で答えよ。また一般の生態系で問 B と同様の前提の場合,現存量を純生産量で割った値は何を表していると考えられるか,1行程度で述べよ。
D 全陸地と全海洋について現存量を純生産量で割った値を比較し,その違いが何によるものなのか,全陸地・全海洋それぞれで主たる一次生産者の種類とその構造的特徴,および問 C の解答をふまえて理由を考察し,5行程度で述べよ。
PDFの 33 枚目
第3問
次の文1〜文4を読み,Ⅰ〜Ⅳの各問に答えよ。
〔文1〕
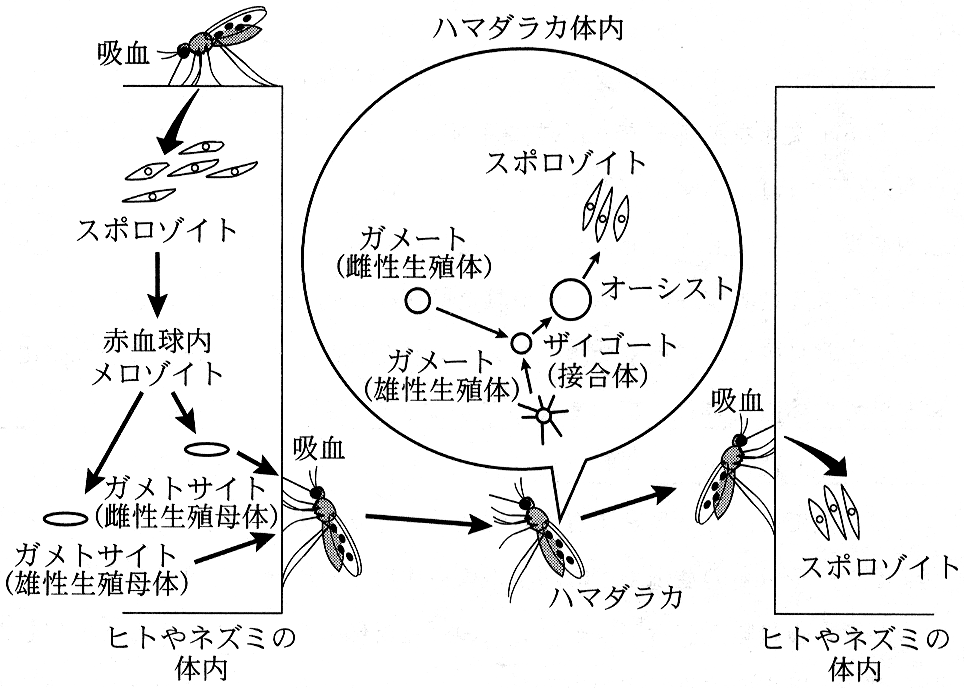
マラリア症は,病原体であるマラリア原虫(原生動物)が蚊の一種であるハマダラカによって媒介される感染症である。この感染症の特徴はハマダラカによる吸血によって病気が伝わることであり,図5に示すような生活環にしたがって,マラリア原虫がほ乳類などの動物とハマダラカの間を循環しながら増殖する。ハマダラカ体内では,マラリア原虫は有性生殖期を経たのちにオーシストとなり,ひとつのオーシストからは数百のスポロゾイトが生み出される。そのスポロゾイトはハマダラカの唾液腺に侵入することによって初めて感染性を得る。(ア)
ここに,異なる二系統のハマダラカがあり,それぞれ X 系統と Y 系統とする。これらの系統は観察されるすべての表現型について純系であり,また外見からは区別がつかない。これらの系統を用いて,以下の実験をおこなった。マラリア原虫をネズミに感染させ,十分な量のマラリア原虫の増加が血中に観察されたのち,このネズミをそれぞれ数十匹の X 系統と Y 系統のハマダラカに吸血させた。一週間の後,一部のハマダラカの腹部を解剖したところ,X 系統と Y 系統ともに体内に多くのオーシストが観察された。しかし,X 系統ではそのすべてのオーシストにおいて黒い色素の沈着がみられた。(イ)
PDFの 34 枚目
図5 マラリア原虫の生活環 マラリアに感染したヒトやネズミを吸血したハマダラカ体内では雌雄のガメートが受精してザイゴートとなり,それが分化してオーシストとなる。オーシスト内部で作られた大量のスポロゾイトは,ハマダラカが吸血したときにヒトやネズミの血中に送り込まれ,新たな感染を引き起こす。
PDFの 35 枚目
〔文2〕
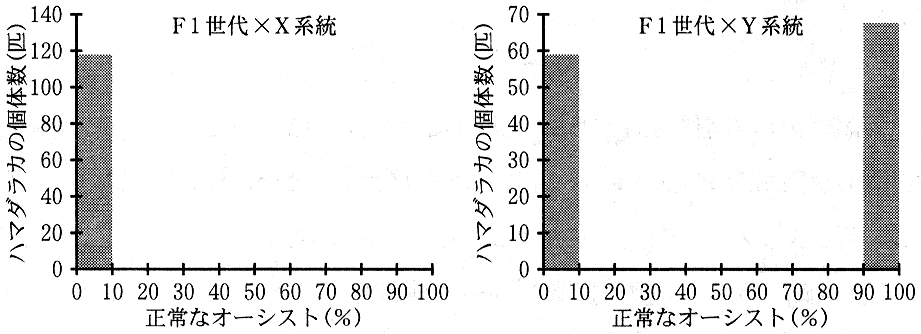
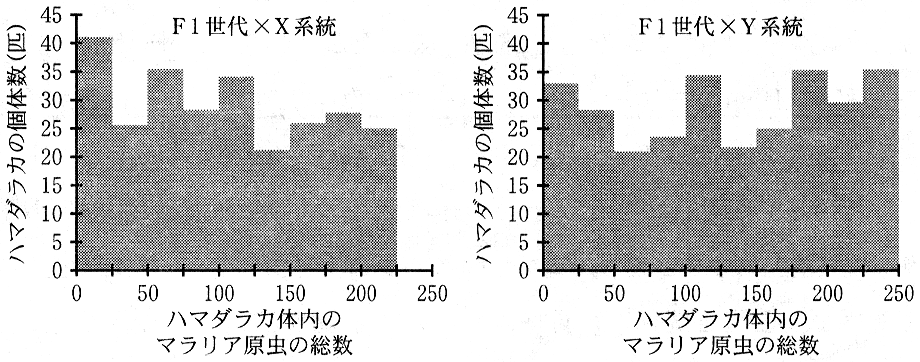
X 系統のオスと Y 系統のメスを交配し,次の世代を得た(F1 世代)。このメスと,X 系統または Y 系統のオスを交配することによって,さらに次世代を得た(戻し交配世代)。ハマダラカはメスのみが吸血することから,必然的にマラリア原虫を媒介するのもメスである。この戻し交配世代のメスに,マラリア原虫が感染したネズミを吸血させ,文1の実験と同様に体内のオーシストを観察し,黒い色素の沈着していない正常なオーシストの割合(図6)を調べた。また同時に,(ウ)
この実験において,色素沈着の表現型を支配する遺伝子座が二つ以上あると仮定すると,それらの遺伝子座は別々の染色体もしくは同一の染色体上に存在する場合が考えられる。前者ではそれぞれの対立遺伝子が 1 の法則にしたがい分離し,後者では染色体の 2 により乗換えが生じ,連鎖している対立遺伝子の組み合わせが変化し,その結果 3 が起こる。このような場合,戻し交配世代の表現型はばらつきを示すことが多い。よって図6から考えると,オーシスト色素沈着の形質は(エ) 4 または 5 であるならば,図6の X 系統を用いた戻し交配の実験において正常なオーシストをもつハマダラカ個体も観察されるはずであり,よって X 系統の対立遺伝子由来の形質が 6 であると考えられる。
(注3) 遺伝子座とは染色体やゲノムにおける遺伝子の位置のことであり,二倍体における対立遺伝子の遺伝子座は同一である。
PDFの 36 枚目
図6 戻し交配世代におけるハマダラカ個体中の正常オーシストの割合 図7 戻し交配世代のハマダラカの体内に存在しているマラリア原虫の総数 PDFの 37 枚目
〔文3〕
ハマダラカでは最近ゲノム解読がほぼ終了し,さまざまな手法により表現型と遺伝子の機能の関係を調べられるようになった。そのひとつに,DNA マーカーを用いた手法がある。この DNA マーカーには,ゲノム中に数塩基の短い配列が反復したマイクロサテライトとよばれるものが主に利用され,系統ごとにその反復回数が異なる。その反復回数の違いを検出することによって,その DNA マーカー近傍の染色体領域がどちらの系統由来のものか判別できる。
いま,ハマダラカの X 系統における色素沈着を支配する遺伝子座が,染色体のどこに存在するかを調べるために,DNA マーカーを使った以下の実験をおこなった。別の実験から,ハマダラカがもつ一対の性染色体と二対の常染色体のうち,その遺伝子座は2番染色体に位置することがわかり,(オ) 7 の近くに,X 系統における色素沈着を支配する遺伝子座があると考えられた。実際に調べたところ,ある遺伝子 Z (カ) Z Z
PDFの 38 枚目
図8 ゲル電気泳動法による各DNAマーカーの長さの判別 PDFの 39 枚目
〔文4〕
マラリア原虫をもったハマダラカがヒトを吸血すると,マラリア原虫のヒトへの感染が起こる。(キ) 8 とよばれる色素タンパク質が存在し,9 の運搬をおこなっている。8 の遺伝子には正常型の対立遺伝子 A S S 8 分子は,その立体構造が正常型と異なっており,赤血球の形態異常の原因となる。遺伝子型 S S A S A S A S A A (ク)
PDFの 40 枚目
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 下線部(ア)について。マラリア原虫—ハマダラカ間およびマラリア原虫—ヒト・ネズミ間における,それぞれの生物間の相互関係をあらわす語句を答えよ。
B 下線部(イ)について。どのような実験をすればこのようなことが明らかとなるか,2行以内で述べよ。
Ⅱ 文2について,以下の小問に答えよ。
A 空欄1〜6に適当な語句を入れよ。
B 下線部(ウ)について。ハマダラカにおけるマラリア原虫の感染性を支配する遺伝形質について,図7からわかることを2行以内で述べよ。
C 下線部(エ)について。仮にこの形質が複数の遺伝子座によって支配されているとするならば,それはどのような場合か。2行以内で述べよ。
Ⅲ 文3について,以下の小問に答えよ。
A 下線部(オ)について。これらの DNA マーカーは染色体上において互いに十分に離れて存在するものを選んだ。その理由を考え,1行以内で述べよ。
B 空欄7に適当な DNA マーカーの番号を入れ,選んだ理由を2行以内で述べよ。
C 下線部(カ)について。X 系統のオスと Y 系統のメスを交配して得た F1 世代のメスに,文1と同様にマラリア原虫が感染したネズミを吸血させ,オーシストを観察したときにみられる現象について,正しいものを以下の(1)〜(4)からひとつ選べ。
(1) 色素沈着を抑える機能をもつ遺伝子 Z
(2) 色素沈着を誘導する機能をもつ遺伝子 Z
PDFの 41 枚目
(3) 色素沈着を誘導する機能をもつ遺伝子 Z
(4) 色素沈着を抑える機能をもつ遺伝子 Z
Ⅳ 文4について,以下の小問に答えよ。
A 文中の空欄8と9に適当な語句を入れよ。
B 下線部(キ)について。ヒトにおけるマラリア症が依然として猛威をふるう現在,ハマダラカの X 系統はマラリア制圧のひとつの重要な手段として注目されている。その理由とともに,具体的な使用方法について2行以内で述べよ。
C 下線部(ク)について。悪性マラリアが発生する地域に住むヒト集団で,ある年に生まれた新生児の遺伝子型を調べたところ,各遺伝子型が A A : A S : S S = 25 : 10 : 1 S
D この地域では,これらの新生児が成人になるまでの過程で,遺伝子型 A A S S S A A
第1問 細胞の中の運び屋 — イントロン・リボソームの材料・分泌の通り道 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 真核細胞の中は膜で区切られていて、タンパク質や RNA は「作られる場所」と「はたらく場所」がちがうことが多い。この問題は、その運び方を3つの場面で考える。文1は細胞小器官の名前、文2はリボソームが核と細胞質を行き来して組み立てられる流れ、文3は酵母の分泌酵素 A が 小胞体 → 膜小胞 → ゴルジ体 → 膜小胞 → 細胞の外 と運ばれる流れ。
文3を読むときの一番の道具は、酵素 A の重さが「どこまで来たか」の目印になる こと。小胞体で最初の糖がつき(これが図1の Y、1本の帯)、ゴルジ体でさらに糖がつく。ゴルジ体の糖のつき方は分子ごとにちがうので、ゴルジ体を通ったものは重く、幅のある帯(図1の X)になる。
もう1つの道具は、流れが止まると、止まった所の手前に物がたまる こと。温度感受性変異体(高温でだけ異常が出る変異体)は、35 ℃ にするとどこか1つの段が止まる。たまっている細胞小器官と、たまっている酵素 A の重さ(X か Y か)の2つを合わせると、止まった段が1つに決まる。
Ⅰ 二重の膜で囲まれていて、内部に好気呼吸(酸素を使う呼吸)の酵素が多いのは、クエン酸回路や電子伝達系の場であるミトコンドリア。
同じく二重の膜で囲まれ、植物に特徴的で、葉緑体や有色体(色素をためる)に分化するのは色素体。葉緑体は色素体の一種である、という関係に注意する。
核の中と外の物質のやりとりは、核膜にあいた穴を通して行われる。この穴が核膜孔で、mRNA が出ていくのも、リボソームタンパク質が入っていくのもここを通る。
Ⅱ A リボソームは、mRNA の開始コドンから3塩基ずつ区切って読み、遺伝暗号の表に従ってアミノ酸をつなぐ。どこがエキソンでどこがイントロンかを見分けるしくみは、リボソームには無い。
だから、イントロンが残った mRNA を読むと、イントロンの塩基も3つずつ区切られて、暗号表どおりのアミノ酸になる。イントロンの中に終止コドンがあればそこで止まって短いタンパク質になり、長さが3の倍数でなければ後ろのエキソンの読み枠がずれ、3の倍数でも余計なアミノ酸がはさまる。どれもふつうとは違うタンパク質である。
選択肢を照らすと、(1)(2) の「アミノ酸配列に変化はない」は誤り。(3) の「境界で止まる」も、境目を知るしくみが無いので誤り(デモではイントロンをコドンの切れ目に置いたので、境目の最初のコドンは GU? のバリンになり終止にならない。実際にはコドンの途中にイントロンが入ることもあり、境目のコドンが何になるかは前後の塩基しだいだが、どちらにしても「境目で必ず止まる」しくみは無い)。(5) の「無作為に取り込まれる」も誤りで、同じ mRNA なら何度読んでも同じアミノ酸の並びになる。デモでは、でたらめな並びのイントロンを 4000 個作って実際に読み、ふつうと同じになったものが 0 個であることを確かめている。
Ⅱ B 細胞質のリボソームで作られたあと核に運ばれるのは、核の中ではたらくタンパク質 。
ヒストンは DNA を巻きとって染色体をつくるタンパク質、DNA ポリメラーゼは DNA を複製する酵素で、どちらも核の中ではたらく。
ペプシン・アミラーゼは消化酵素、免疫グロブリンは抗体で、どれも細胞の外へ分泌される。これらは文3の酵素 A と同じ、小胞体からゴルジ体を通る通り道で外に出る。ケラチンは細胞の骨組みをつくる繊維で、細胞質に残る。
Ⅱ C rRNA とリボソームタンパク質の「でき方」の段数を比べる。
rRNA は、遺伝子を転写してできた RNA がそのままリボソームの部品になる。転写してできた1本を元に何倍にも増やす段階が無い。遺伝子1個が一定時間に作れる RNA の本数には上限があるので、それより多く必要なときは遺伝子の数を増やしてかせぐ ことになる(転写の速さや RNA の寿命でも量は変わるが、1個の遺伝子の転写の速さには限りがある)。
リボソームタンパク質は、遺伝子を転写して mRNA ができ、さらにその mRNA 1本が寿命のあいだに何度も翻訳される。転写と翻訳の2段で増える ので、遺伝子が1個でも、mRNA を何本も作り、それぞれから多数のタンパク質を作れる。
デモの仮の数(1日に1回分裂、リボソーム 300 万個、rRNA 遺伝子1個が1分に 40 本)では、rRNA は遺伝子が最低 53 個いるのに対し、タンパク質は1本の mRNA から平均 2000 個以上できるので、遺伝子1個で 300 万個を超える。この「増やす段階の有無」を2行にまとめる。
答え タンパク質はmRNAから何度も翻訳されて増えるので遺伝子1個で足りるが,rRNAは転写されたRNAそのものが働き,増やす段階が無いから。(68字)
Ⅱ D 文2に、リボソームの活性(アミノ酸をつなぐはたらき)は主に rRNA が担っている、とある。つまりリボソームの中心は RNA の触媒である。
一方、原始の生命では、遺伝情報を持つことと触媒としてはたらくことの両方を RNA がしていた、という考え(RNA ワールド)がある。触媒活性を持つ RNA(リボザイム)が先にあり、のちにタンパク質の酵素が現れた、という進化の順番である。
最初のリボソームタンパク質を作るときには、まだリボソームタンパク質は無い。だから、それを翻訳した装置はタンパク質を含まない、RNA だけでできたもの だったと考えられる。これを1行で書く。
答え タンパク質を含まず,触媒活性をもつRNAだけでできた翻訳装置。(31字)
Ⅲ A 1つ目は酵素 A の重さ。変異体 a の中にたまっていたのは X、つまりゴルジ体の糖がついた形。ゴルジ体までは運ばれて修飾を受けた ことがわかる。それなのに細胞外には出ていない。
2つ目はたまっている物。変異体 a では膜小胞がたくさんたまっていた。ゴルジ体までは通れて、その先で膜小胞がたまるのだから、ゴルジ体から出た膜小胞が細胞膜と融合できず 、中身を外に出せないと考えられる。
デモで変異体 a を選ぶと、膜小胞 → 細胞膜 の段に × が付き、赤い点(X 型)がゴルジ体からの膜小胞にたまっていく。
答え ゴルジ体から細胞膜へ向かう膜小胞が細胞膜と融合する段階。酵素AはX型でゴルジ体の修飾を受けているのに分泌されず,膜小胞がたまっているから。(69字)
Ⅲ B Ⅲ A と同じく「たまる物」と「止まった段」を結ぶ。止まった段より手前は全部通れるので、その手前の細胞小器官がふくらむ。
変異体 b はゴルジ体が肥大していた。ゴルジ体までは入れるが、ゴルジ体から膜小胞ができず出られない。ゴルジ体に入った酵素 A はゴルジ体の修飾を受けるので、たまっているのは X と考えられる。
変異体 c は小胞体が大量にたまっていた。小胞体から膜小胞ができず、ゴルジ体へ運べない。酵素 A は小胞体の修飾だけを受けた形のままなので Y と考えられる。
デモの電気泳動のレーンでも、b は上の方に幅のある帯(X)、c は下に1本の帯(Y)が細胞内に出る。
答え b:X。肥大したゴルジ体がたまるので,酵素Aはゴルジ体まで運ばれて修飾を受けたが,ゴルジ体から膜小胞ができず細胞膜へ運ばれないから。(66字) c:Y。小胞体がたまるので,小胞体から膜小胞ができず,酵素Aはゴルジ体へ運ばれず,ゴルジ体での修飾を受けていないから。(59字)
Ⅲ C a 通り道は1本の道なので、2か所が止まっていれば、手前で止まる方の結果だけが見える 。
変異 c は小胞体から膜小胞ができない段(通り道のいちばん前)、変異 a は膜小胞が細胞膜と融合できない段(いちばん後ろ)を止める。二重変異体では、酵素 A は小胞体から出られず、ゴルジ体まで届かない。
ゴルジ体の修飾を受けないので、検出される酵素 A は小胞体の形である Y の位置だけになる。X が混ざることも、中間の重さになることも無い。
Ⅲ C b Ⅲ C a と同じ考え方で、細胞小器官についても手前の変異 c の結果が出る。
小胞体から膜小胞ができないので、新しく作られた膜や酵素 A は小胞体にたまり続ける。変異 a が止める段(膜小胞と細胞膜の融合)まで、物が届かない。
デモの膜の量の模型(小胞体に膜が一定の速さで入り、順に流れる)で 90 分動かすと、小胞体は大きくふえ、膜小胞は、もとからあったゴルジ体の膜が少し膜小胞になる分だけしかふえない。だから主に蓄積するのは小胞体で、理由は「c の段で止まるので、a の段まで届かないから」とまとめる。
答え 小胞体。変異cで小胞体から膜小胞ができず,酵素Aも膜も変異aが止める膜小胞と細胞膜の融合まで届かないので,膜小胞はほとんどたまらないから。(69字)
第2問 光から有機物へ — 水1分子の値打ち・葉の並び方・何年で入れかわるか 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 光のエネルギーが植物の有機物になり、生態系の中にたまっていくまでを、3つの大きさで見る問題。Ⅰは葉緑体の中(チラコイド膜の電子と水素イオン)、Ⅱは植物の群落(葉がどの高さにどれだけあり、光がどう減るか)、Ⅲは地球全体(生態系ごとの現存量と純生産量)。
Ⅰは文1の数(水2分子から電子4個・水素イオン4個、電子4個が伝わる間に水素イオン8個、ATP 1分子に水素イオン3個、電子2個で還元力 X・2H が1分子)を、1つずつ数え上げればよい。単位と「何あたりか」をそろえる ことが大事。
Ⅱは、図2(生産構造図)で葉が上に集まるか下まで広がるかを見て、図3で光の減り方の2つの線と結びつける。図4の光—光合成曲線は、光が弱いと見かけの光合成速度がマイナス(呼吸の方が多い)になることに注意する。
Ⅲは、表1の「現存量(いまある量)」と「純生産量(1年に新しく作られる量)」の割り算。平衡(現存量が変わらない)なら、作られた分と同じだけ失われているので、割り算の値は「入れかわる速さ」を表す。
Ⅰ A 1年あたり・1 m² あたりにそろえて、「純生産に使われたエネルギー」と「光合成に使える光のエネルギー」を比べる。
純生産量は 1 m² で1年に 3.0 kg = 3000 g。1 g を合成するのに 16.8 kJ いるので、使われたエネルギーは
3000 × 16.8 = 50400 k J
地表に届く光は1日に 8.0 × 10 3 k J
8.0 × 10 3 × 365 × 0.45 = 1.314 × 10 6 k J
割り算して 100 倍すれば答えのパーセントになる。光のエネルギーのほんの数パーセントしか有機物にならない、というのがこの計算の「なるほど」。
Ⅰ B 下線部は「ATP は、水素イオンの濃度差がなくなる(水素イオンが膜の内から外へ流れる)ときに作られる」という意味。各選択肢が、この考えと合う事実かどうかを見る。
(1) 暗い所で内腔を pH 4(水素イオンが多い)にしてから pH 8 の液に移すと、光も電子伝達も無いのに ATP ができた。濃度差だけで ATP ができる ので、下線部を支える正しい事実。
(2) 2,4-ジニトロフェノールは水素イオンの濃度差を消す。濃度差が消えれば ATP は作れないはずで、「ATP 合成は抑制されず」は逆。電子伝達はむしろ止まらない。正しくない。
(3) 袋が破れていれば、水素イオンをためられず濃度差ができないので ATP は作れない。「ATP 合成には膜の状態は関係ない」は正しくない。
(4) 膜がイオンを通さないからこそ濃度差を保てる。(1) の実験で ATP ができたことも、この性質があってのこと。正しい。
Ⅰ C 水2分子を分解したときに、何が何個できるかを文1のとおりに数える。
水素イオン:水の分解で4個が内腔にたまり、電子4個が伝わる間にさらに8個くみ入れられるので、内腔には12個。ATP 合成酵素は3個で ATP 1分子を作るから、ATP は4分子。
電子:4個は最後に補酵素 X に渡り、2個で X・2H が1分子なので2分子。1分子は ATP 3分子ぶんなので、ATP 6分子ぶん。
合わせて水2分子で ATP 10分子ぶん。1分子あたりにするために2で割る。デモでは水を1分子ずつ分解して電子と水素イオンを1個ずつ数え、水の数が増えると値がこの答えに落ち着くことを見せている。
Ⅱ A 図2で、光合成器官(葉)がどの高さにあるかを見る。
植物 A は、葉の大部分が群落の上の方(60〜105 cm あたり)に集まり、光はその葉の層を通るあいだの数十 cm で急に弱くなって、下の方にはほとんど葉が無い。葉を水平に広げて、上で光を受けとめる形で、広葉型 とよばれる。
植物 B は、葉が低い所(15〜45 cm あたり)に多く、上から下までじわじわ光が減る。細長い葉が斜めに立っていて、光が下まで入る形で、イネ科型 とよばれる。
図3で、同じだけ葉が重なったときの光の減り方がゆるやかな (ア) がイネ科型、急な (イ) が広葉型にあたる。実際、植物 B は 15 cm までの積算葉面積指数が 7 を超えても光が 10 % 残っていて、(ア) の線に近い。
答え 植物A:広葉型・(イ),植物B:イネ科型・(ア)
Ⅱ B 積算葉面積指数は、群落の最上部から数えた「土地 1 あたりの葉の面積」の合計。
図2の植物 B で、最上部(90 cm)から 15 cm までの層の葉の生重量を足す。上から 75〜90 cm は 0 g、60〜75 cm は 10 g、45〜60 cm は 30 g、30〜45 cm は 60 g、15〜30 cm は 90 g で、合計 190 g。
葉 1 g あたり 60 cm² なので、葉の面積は 190 × 60 = 11400 cm²。区画は 40 cm 四方 = 1600 cm² だから
190 × 60 1600 = 7.125
有効数字2桁に丸める。0〜15 cm の層(15 g)は入れないことに注意する。
Ⅱ C Ⅱ A で見たように、植物 B(イネ科型)は葉が斜めに立ち、図3では (ア) にあたる。
(ア) は、積算葉面積指数が増えても光の強さがゆるやかにしか減らない。つまり上の葉が光を全部とってしまわず、下の葉にも光が届く 。
そのため、群落の下の方の葉まで光合成に使える光を受けられ、たくさんの葉を重ねても無駄になりにくい。群落全体として光を効率よく使える、というのが特徴になる。デモでは、同じ曲線(図4)を使っても、光の減り方がゆるやかな型の方が、呼吸の方が多くなる暗い葉が出はじめる深さがずっと深いことが見える。
答え 葉が斜めに立っているため光が群落の下層まで届き,積算葉面積指数が大きくなっても光の強さがゆるやかにしか減らない。そのため下層の多くの葉も光合成に十分な光を受け,群落全体として光を効率よく利用できる。(99字)
Ⅱ D 2つの図をつなぐ。まず図2の植物 A で、地上 45 cm の高さの光の強さを、光の強さの目盛り(上の横軸)で読む。45 cm の円は 10 % の線の上にある。
次に図4(植物 A の光—光合成曲線)で、光の強さ 10 % のときの見かけの光合成速度を読むと、ちょうど印の点があり、たての目盛りで 30。
図4の光の強さは図2と同じものさしだと問題文にあるので、この値がそのまま答えになる。
Ⅱ E 葉を増やすと、上の葉が下の葉に影をつくる。下の葉ほど暗くなり、ある深さで光の強さが光補償点 (光合成と呼吸がつり合う光の強さ)を下回る。
光補償点より暗い葉は、光合成で作る量より呼吸で使う量の方が多い。そういう葉を増やすと、群落全体の光合成(総生産量)は少しは増えるが、それより呼吸量の増え方の方が大きい(呼吸量は葉の量に比例して増える)。
純生産量 = 総生産量 − 呼吸量 なので、純生産量は、一番下の葉がちょうど光補償点になる所で最大になり、それより葉が多いと減る。これが最適な葉面積指数がある理由。デモでは図4に合わせた曲線(光補償点は約 2 %)を使い、広葉型で約 4、イネ科型で約 13 に最適な値が出る。
答え 葉面積指数が大きくなると,上の葉が下の葉をおおい下層の光が弱くなる。光補償点より暗い葉は光合成より呼吸が多いので,群落の総生産量は頭打ちになるのに呼吸量は葉の量とともに増え,純生産量が最大となる葉面積指数がある。(106字)
Ⅲ A 表1から「その生態系の全純生産量 ÷ 全現存量」を計算する。
森林は 79.9 ÷ 1700 = 0.0470 18.9 ÷ 74 = 0.255
理由は、現存量のうち「光合成をする部分」の割合の差。森林の樹木は、体の大部分が幹や枝や根など光合成をしない部分(非光合成器官)で、何十年も積み上がっている。草原の草は、体に占める葉の割合が大きく、1 kg あたりで光合成する量が多い。
答え 森林 0.047 kg,草原 0.26 kg(どちらも1年あたり)。理由:森林の現存量の大部分は光合成を行わない幹や根などの非光合成器官であるが,草原の草本は現存量に占める葉の割合が大きいため。(60字)
Ⅲ B 平衡に達しているとは、現存量が年によって変わらないこと。1年に純生産量ぶん新しく作られ、同じだけ枯れたり食べられたりして失われている。
(1) 平衡では1年の成長は 0 なので、純生産量 ÷ 現存量 は成長の割合ではない。(2) 失われる分には枯死だけでなく食べられる分(被食量)もあるので、枯死量の割合とは言えない。(4) 表1は植物の量なので、動物や分解者を含む生態系全体の有機物ではない。
1年に、現存量の(純生産量÷現存量)倍の有機物が新しく作られ、同じだけ失われて置きかわるので、「植物を構成する有機物が1年間に何回入れかわるか」という意味になる。
Ⅲ C 今度は逆の割り算。全陸地は 1836.6 ÷ 115.2 = 15.9 3.9 ÷ 55.0 = 0.0709
Ⅲ B で、純生産量 ÷ 現存量 が「1年に入れかわる回数」だったので、その逆数は「1回入れかわるのにかかる年数」になる。植物の体の有機物が、平均して何年とどまっているか、と言いかえてもよい。
デモでは、現存量を小さなかたまりに分け、短い時間 dt ごとに「純生産量÷現存量×dt」の確率で入れかわるとして乱数で追いかけると(純生産量÷現存量 は1年あたりの入れかわりの速さで、海洋では 14 回/年。1年あたりの確率ではない)、平均のとどまる年数がこの割り算の値に一致することを確かめている。
答え 全陸地 16 年,全海洋 0.071 年。生態系内の植物の体をつくる有機物が,すべて入れかわるのにかかる平均の年数。(37字)
Ⅲ D Ⅲ C の値は、陸地が約 16 年、海洋が約 0.07 年(1か月弱)で、200 倍以上ちがう。この差を、一次生産者(光合成をする生物)の種類と体のつくりで説明する。
陸地の主な一次生産者は、樹木のような大きな多細胞の植物。高く伸びて光を受けるために、幹や根など体を支える光合成をしない組織をもち、そこに有機物を何十年もためこむ。だから有機物が長くとどまる。
海洋の主な一次生産者は、植物プランクトンのような小さな単細胞の藻類。水に浮かんでいるので体を支える組織が要らず、体のほとんどが光合成をする。分裂して速く増える一方、動物プランクトンにすぐ食べられるので、有機物は短い期間で入れかわる。
用語として「主たる一次生産者の種類」「構造的特徴(支持組織の有無、光合成をする部分の割合)」「問 C の答え(何年で入れかわるか)」の3つを全部入れて、5行程度にまとめる。
答え 陸地の主な一次生産者は樹木などの大形の多細胞植物で,体を支える幹や根など光合成をしない組織に有機物を長年ためるため,値は約16年と大きい。海洋の主な一次生産者は植物プランクトンなどの単細胞の藻類で,体のほとんどが光合成を行い支持組織をもたない。速く増える一方で動物プランクトンにすぐ食べられて短期間で入れかわるため,値は約0.071年(約26日)と小さい。(178字)
第3問 マラリアとハマダラカ — うつさない蚊の遺伝子と、かま状赤血球が残るわけ 答えは東大の正解ではなく、自分で解いて、式とは別の計算で確かめたもの。
問題の読み方 マラリアを「病原体(マラリア原虫)」「運び役(ハマダラカ)」「うつされる側(ヒト)」の3つの立場から見る問題。文1はそれぞれの関係、文2・文3は原虫をうつせないハマダラカ(X 系統)の性質がどう遺伝し、染色体のどこにあるか、文4はヒトの側でかま状赤血球の遺伝子がマラリアのある地域に残るしくみ。
文2の読み方の中心は戻し交配 。F1 のメス(X 系統と Y 系統の対立遺伝子を1つずつ持つ)に、X 系統または Y 系統のオスをかけると、子は F1 から X 由来か Y 由来の対立遺伝子を半分ずつ受けとる。父から来る方は決まっているので、子の遺伝子型の比は 1:1 になる。父が劣性側の系統なら、この比がそのまま表現型の比に出る(父が優性側なら、優性の性質をもつ子ばかりになり、表現型では見分けられない)。
文3は、DNA マーカー(系統ごとに長さのちがう DNA の目印)と色素沈着がいっしょに伝わるか(連鎖) で、遺伝子座の場所をさがす方法。文4は、対立遺伝子の頻度を「遺伝子の数を数える」ことで計算する。
Ⅰ A 下線部(ア)に、ハマダラカは原虫が体内に入っても寿命や生殖能力に影響を受けない、とある。原虫はハマダラカの体内で増え、運んでもらえるので得をするが、ハマダラカは得も損もしない。一方だけが得をして相手は害を受けない関係は、片利共生。
ヒトやネズミは、原虫が赤血球の中で増えて発熱し、ときには死に至る。一方が得をして相手が害を受ける関係なので、寄生。
答え マラリア原虫—ハマダラカ:片利共生,マラリア原虫—ヒト・ネズミ:寄生
Ⅰ B 「媒介できる」とは、原虫を持ったハマダラカが、別の動物を刺したときに原虫をうつせること。オーシストがあるだけではうつせるとは限らない(スポロゾイトが唾液腺に入って初めて感染性を得る)ので、実際にうつるかどうかを見る必要がある。
そこで、感染したネズミの血を吸わせた X 系統と Y 系統のハマダラカを、それぞれ感染していない別のネズミに吸血させる。原虫が体内で育つのに十分な時間をおいてから刺させ、そのネズミの血液にマラリア原虫が現れるかを調べる。Y 系統に刺されたネズミだけで原虫が出れば、下線部(イ)がわかる。
答え 感染ネズミを吸血させたX系統とY系統を,それぞれ感染していない別のネズミに吸血させ,そのネズミの血液中にマラリア原虫が現れるかを調べる。(68字)
Ⅱ A 空欄1〜3:遺伝子座が別々の染色体にあれば、それぞれの対立遺伝子は独立の法則に従って分かれる。同じ染色体にあれば、減数分裂のときに相同染色体が対合し、そのとき乗換えが起こって、連鎖していた対立遺伝子の組み合わせが変わる(組換え)。こうした場合、戻し交配の子の表現型は何段階にもばらつく。図6はきれいに2つ(または1つ)の棒に分かれているので、1つの遺伝子座と考える。
空欄4〜6:F1×X 系統の戻し交配では、子は「X 由来2つ」か「X 由来1つ・Y 由来1つ」で半分ずつ。図6では 118 匹全部が正常なオーシスト 0〜10 % の棒に入っていた(色素沈着)。もし X 系統の形質が劣性 なら、X と Y を1つずつ持つ子は正常になるはず。不完全優性 なら、中間(正常が半分くらい)の子が出るはず。どちらも起きていないので、X 系統の対立遺伝子による色素沈着は優性 と考えられる。
F1×Y 系統では、「X と Y を1つずつ(色素沈着)」と「Y 由来2つ(正常)」が 1:1 になるはずで、図6の 59:67 はこれと合う。デモでは3つの仮説で戻し交配を乱数で作り、図6と同じ棒の並びになるのは優性だけであることを見せている。
答え 1 独立,2 対合,3 組換え,4 劣性,5 不完全優性(4と5は順不同),6 優性
Ⅱ B 図7は、図6と同じ戻し交配の子について、体内の原虫の総数(正常+色素沈着のオーシスト)を数えたもの。
F1×Y 系統では、色素沈着する子と正常な子が半分ずつなのに、原虫の総数は2つの群に分かれず、0 から 250 まで広く平らにばらついている。F1×X 系統(全部が X 系統の対立遺伝子をもち、色素沈着)でも同じように広く分布している。
もし色素沈着の遺伝子座が原虫の入る数も決めているなら、全部が X 系統の対立遺伝子をもつ F1×X では、全部が同じ側(たとえば少ない側)に寄り、半分だけがもつ F1×Y とは分布の形がちがうはず。実際は、どちらの交配でも2つの群に分かれず、広く続いた分布になっている。つまり、色素沈着の遺伝子座は、原虫が入る数(感染そのもの)を左右していない。X 系統の形質は原虫の感染自体を妨げず、感染後のオーシストに色素沈着を起こす ものと考えられる(2つの図は形が少しちがい、F1×X は少ない側、F1×Y は多い側がやや多い。平らな分布なので、感染のしやすさが複数の遺伝子座で決まるとも読めるが、図7 からそこまでは言い切れない)。
(F1×Y だけを見ると、「X 由来をもつと少ない・もたないと多い」の2群がそれぞれ広くばらつけば、全体では平らにつながってしまい、見分けにくい。デモの「関係あり」の模型もそうなっている。見分けに効くのは F1×X の方で、図7 では F1×X の約 4 割が 125 以上にいる。)X 系統も原虫にはふつうに感染していて、うつせないのは感染後にオーシストが色素で固められるからだ、と読める。
答え 原虫の総数は色素沈着の遺伝子型によらず同様に広く分布するので,X系統の形質は原虫の感染自体を妨げず,感染後のオーシストに色素沈着を起こす。(69字)
Ⅱ C 2つ以上の遺伝子座で決まるのに、戻し交配の結果が1つの遺伝子座と同じに見えるのはどんなときかを考える。
遺伝子座どうしが別の染色体にあったり、同じ染色体でも離れていたりすると、F1 の配偶子で組み合わせが変わり、子の表現型の比が 1:1 からずれたり、中間の表現型が出たりする。デモで2つの遺伝子座を離して置くと(組換え 0.5)、F1×Y で色素沈着する子は 25 % に減る。
ところが、2つの遺伝子座が同じ染色体のすぐ近くにあると、乗換えがその間でほとんど起こらず、2つはいつもまとめて子に伝わる。こうなると結果は1つの遺伝子座と区別できない。この場合を2行で書く。
答え 複数の遺伝子座が同じ染色体上のごく近い位置にあって強く連鎖し,減数分裂で乗換えによる組換えがほとんど起こらず,まとめて遺伝する場合。(66字)
Ⅲ A マーカーは、色素沈着の遺伝子座の「近くにあるかどうか」を調べるための目印。近くにあるマーカーほど、色素沈着といっしょに子に伝わる(乗換えで離れにくい)。
もしマーカーを染色体の一か所に寄せて置くと、そこから遠い所に遺伝子座があったとき、どのマーカーも同じくらい合わない。3つのマーカーの結果がそろってしまい、どれが近いか区別できない。デモでマーカーの間を 5 cM に縮めると、3つとも合う割合が 7 割台に並ぶ。
十分に離して置けば、マーカーどうしは互いに独立に近い伝わり方をし、染色体のどこに遺伝子座があっても、どれか1つが近くにある。染色体全体をもれなく調べるため、とまとめる。
答え 染色体全体を調べ,どのマーカーが遺伝子座と連鎖するか区別するため。(33字)
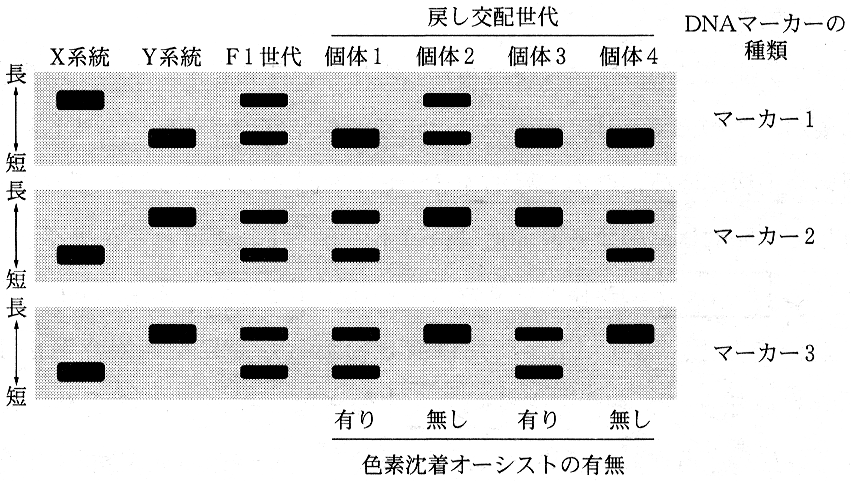
Ⅲ B 図8で、戻し交配世代(F1 のメス × Y 系統のオス)の4匹について、X 系統型の帯(X 系統にだけある長さの帯)を持つかどうかと、色素沈着の有無を並べる。父の Y 系統から来る帯はみな同じなので、X 系統型の帯があるかどうかが、F1 から X 由来の染色体部分を受けとったかどうかを表す。
マーカー1:X 系統型の帯を持つのは個体2だけで、色素沈着は無い。合うのは個体4だけ。マーカー2:X 系統型は個体1・4で、色素沈着の個体1・3と一部しか合わない。マーカー3:X 系統型は個体1・3で、色素沈着の有る個体1・3とぴったり一致し、無い個体2・4は持たない。
表現型といっしょに伝わっているのはマーカー3なので、遺伝子座はその近くにある。
答え マーカー3。理由:色素沈着の有る個体1・3はマーカー3のX系統型をもち,無い個体2・4はもたず,表現型と完全に一致するが,マーカー1・2は一致しないから。(68字)
Ⅲ C 下線部(カ)から、Y 系統は遺伝子 Z Z 遺伝子 Z を持つと考えられる。(1)(4) の「抑える機能」だと、タンパク質の無い Y 系統で色素沈着が起こるはずで逆になる。
F1 は X 系統の対立遺伝子を1つだけ持つので、タンパク質の量は X 系統の半分。Ⅱ A で X 系統の形質は優性とわかっていて、X と Y を1つずつ持つ個体は色素沈着する。つまり半分の量でも十分にはたらく 。
(3) は「半分しかないため起きない」で、優性という結果と合わない。優性(顕性)の正体が「半分の量でも足りること」だとわかる。
Ⅳ A 赤血球にある赤い色素タンパク質で、変異によってかま状赤血球の原因になるのはヘモグロビン。
ヘモグロビンは肺で酸素と結びつき、体の組織で酸素をはなすことで、酸素を運んでいる。
Ⅳ B X 系統の特徴を2つ思い出す。1つ目は、オーシストに色素が沈着してマラリア原虫を媒介できないこと。2つ目は、Ⅱ A で見たとおり、その形質が優性であること。
優性なので、X 系統と野生のハマダラカの子は、X 系統の対立遺伝子を1つ持つだけで原虫をうつせない。さらに下線部(ア)のとおり、ハマダラカにとって原虫は害にならないので、原虫をうつせないことが蚊にとって得にも損にもならない。X 系統の遺伝子そのものにも生き残りや子の数での損が無ければ、放した性質は集団に残る(デモもそう仮定し、外から野生の蚊が入ってこないとしている)。
そこで、X 系統を大量に育てて野外に放し、野生のハマダラカと交配させて、「うつせない」性質を野生の集団に広げる、という使い方が考えられる。デモでは、オスの半分を X 系統にすると、次の世代でうつせるメスは半分になることを見せている。
答え X系統は原虫を媒介できず,その形質は優性なので,X系統を野外に多数放して野生のハマダラカと交配させ,媒介できない性質を集団に広める。(66字)
Ⅳ C 遺伝子頻度は「その対立遺伝子の数 ÷ 対立遺伝子の総数」。1人は対立遺伝子を2つ持つ。
新生児は A A : A S : S S = 25 : 10 : 1 S A S S S 10 + 2 = 12
12 72
Ⅳ D A A x A A 25 ( 1 − x ) A S S S S 2 { 25 ( 1 − x ) + 10 }
10 2 { 25 ( 1 − x ) + 10 } = 1 6
分母を払うと 25 ( 1 − x ) + 10 = 30 25 ( 1 − x ) = 20 x
S S S A A S S A A S