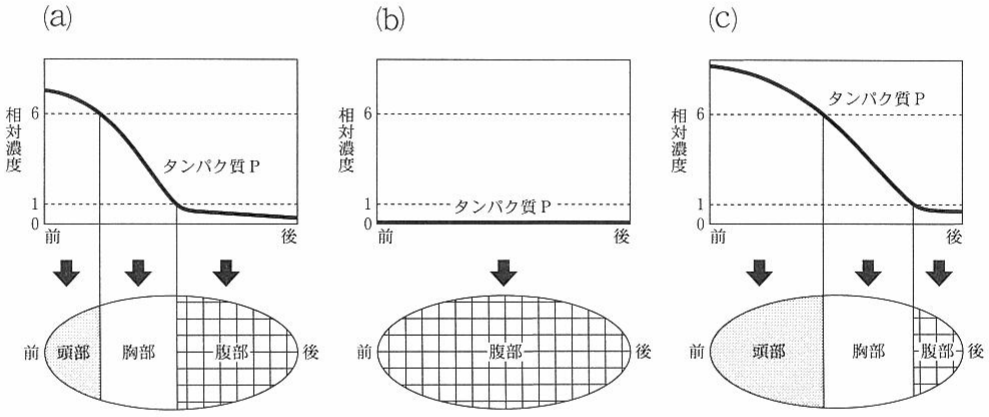
母性効果因子 P の mRNA は,卵形成時に卵の前方に偏在しているため,胚の中で合成されたタンパク質 P もかたよった分布を示す。
図1—1(a)に,正常な初期胚におけるタンパク質 P の分布,およびその分布にしたがって決定される胚の前後軸パターンを示す。P をコードする遺伝子 を欠失した母親から生まれた胚は,図1—1(b)のような前後軸パターンとなり,正常に発生できずに死んでしまう。タンパク質 P を人為的に正常よりも多くしたところ,その胚は図1—1(c)のような前後軸パターンを示した。
図1—1 キイロショウジョウバエ初期胚の前後軸に対するタンパク質 P の分布(上図)と,そのときの胚の前後軸パターン(下図)。(a)正常な胚,(b)タンパク質 P をもたない胚,(c)タンパク質 P を正常より多くもつ胚。
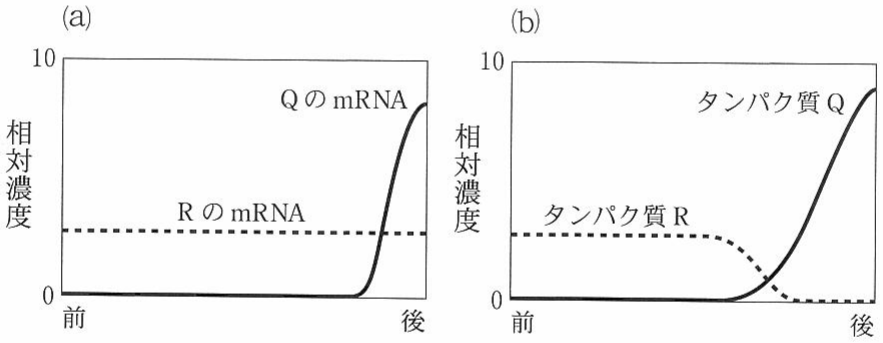
一方,母性効果因子 R の mRNA は,卵形成時に卵全体に均一に存在しているが,合成されたタンパク質 R は,図1—2(b)のグラフのように,その分布にかたよりが見られた。R をコードする遺伝子 を欠失した母親から生まれた胚は,正常な前後軸パターンをもつ。しかしながら,タンパク質 R を胚の後方で人為的に増やしたところ,胚は腹部形成できなくなった。
図1—2 正常な卵または胚の前後軸に対する,(a) Q および R の mRNA 分布,(b)タンパク質 Q およびタンパク質 R の分布。
PDFの 28 枚目
〔問〕
Ⅰ 文1について,以下の小問に答えよ。
A 空欄1〜3に入る適切な語句を記せ。
B 遺伝する形質が繁殖に有利にはたらいた場合,その形質をもつ個体が他の個体よりも多くの子孫を残すことにより,その形質が集団に広まるという,1850 年代に唱えられた説を何というか。
Ⅱ 文2について,以下の小問に答えよ。
A 下線部(ア)について。(a)ウニ,(b)カエルの卵割様式および卵の種類について,正しい組み合わせを以下の(1)〜(6)からそれぞれ1つずつ選べ。
(1) 等 割—等黄卵
(2) 等 割—心黄卵
(3) 等 割—端黄卵
(4) 不等割—等黄卵
(5) 不等割—心黄卵
(6) 不等割—端黄卵
B 下線部(イ)について。卵割について正しく述べたものを,以下の(1)〜(6)から3つ選べ。
(1) 分裂ごとに個々の細胞の大きさは小さくなる。
(2) 分裂ごとに DNA の複製がおこる。
(3) 分裂を経ても細胞の大きさはほとんど変わらない。
(4) 分裂を経ても胚の大きさはほとんど変わらない。
(5) 通常の体細胞分裂と比較して,分裂の進行が遅い。
(6) 1回目の分裂では,細胞あたりの染色体の数が半減する。
PDFの 29 枚目
C 下線部(ウ)について。魚類の一種,ゼブラフィッシュでは,胚に均一に分布するある母性効果因子 X によって,10 回の卵割が終了するまでのあいだ,胚自身の遺伝子発現は抑制されているが,その後,発現が開始する。ある実験で,一倍体(単相)のゼブラフィッシュ胚を作製したところ,11 回目の卵割が終了した後に,胚自身の遺伝子発現が開始した。これらの結果から得られる妥当な推論を,以下の(1)〜(5)から2つ選べ。ただし,正常のゼブラフィッシュ胚は二倍体(複相)であり,母性効果因子 X の量,胚の大きさ,および卵割のしかたは,一倍体でも二倍体でも同様であるとする。また,胚全体での母性効果因子 X の総量は変化しないものとする。
(1) 胚自身の遺伝子発現が開始するときの胚に含まれる DNA 量は,一倍体の胚であっても,二倍体の胚と同じである。
(2) 胚自身の遺伝子発現が開始するタイミングは,胚に含まれる細胞の個数によって決定される。
(3) 胚自身の遺伝子発現が開始するタイミングは,胚に含まれる細胞核の個数によって決定される。
(4) 母性効果因子 X の量を2倍に増やした場合,胚自身の遺伝子発現が開始するまでの卵割回数は1回多くなる。
(5) 母性効果因子 X の量を2倍に増やした場合,胚自身の遺伝子発現が開始するまでの卵割回数は1回少なくなる。
D キイロショウジョウバエにおいて,ある母性効果因子 Z をコードする遺伝子 がある。突然変異により機能を喪失したものを対立遺伝子 と表記する。胚において,この母性効果因子が機能をもたない場合には,その胚は正常に発生できない。 の母親と の父親の交配によって生じた胚のうち, の遺伝子型をもつものは正常に発生できるだろうか。理由を含めて3行程度で述べよ。
PDFの 30 枚目
Ⅲ 文3について,以下の小問に答えよ。
A 下線部(エ)について。図1—1(b)に示した胚の前後軸パターンから考えられる,タンパク質 P の前後軸パターン形成における役割は何か,次の(1)〜(4)からすべて選べ。
(1) 頭部形成を抑制する。
(2) 胸部形成を促進する。
(3) 腹部形成を促進する。
(4) 頭部形成と胸部形成に役割をもたない。
B 下線部(オ)について。タンパク質 P はどのようにして胚の前後軸パターン形成に関与すると考えられるか。図1—1(c)の結果に基づいて,2行程度で述べよ。
C 下線部(カ)について。R の mRNA の分布とタンパク質 R の分布が異なる理由を説明した次の(1)〜(4)について,間違っているものをすべて選べ。
(1) タンパク質 R はタンパク質 Q を分解する。
(2) タンパク質 Q は R の mRNA の翻訳を阻害する。
(3) タンパク質 Q は R の mRNA の転写を抑制する。
(4) タンパク質 Q は R の mRNA の転写を促進する。
D 下線部(キ)について。この実験から推測されるタンパク質 R の機能を,1行程度で簡潔に述べよ。
E 下線部(ク)について。この結果から,前後軸パターン形成において Q と R はそれぞれどのような役割を果たしていると推測されるか,3行程度で説明せよ。Q および R について,遺伝子,mRNA,タンパク質を明確に区別して記せ。
変異株 s と同様,茎だけが重力屈性を失っていた。茎では内皮細胞が正常に存在しアミロプラストも発達していたが,細胞の下側に沈降していないアミロプラストがしばしば観察された。
これらの変異株の重力屈性異常の原因を調べるための実験の結果,さらに次のようなことがわかった。
変異株 p では,デンプンの合成に必要な酵素の1つが失われていることがわかった。デンプン粒を含まずアミロプラストになることのできなかった色素体は,通常の重力()では重力方向に十分沈降できないが,遠心力を加えて通常の5倍の強さの重力環境下()におくと野生株のアミロプラストと同様に沈降した。そのとき重力屈性もほぼ正常に示した。
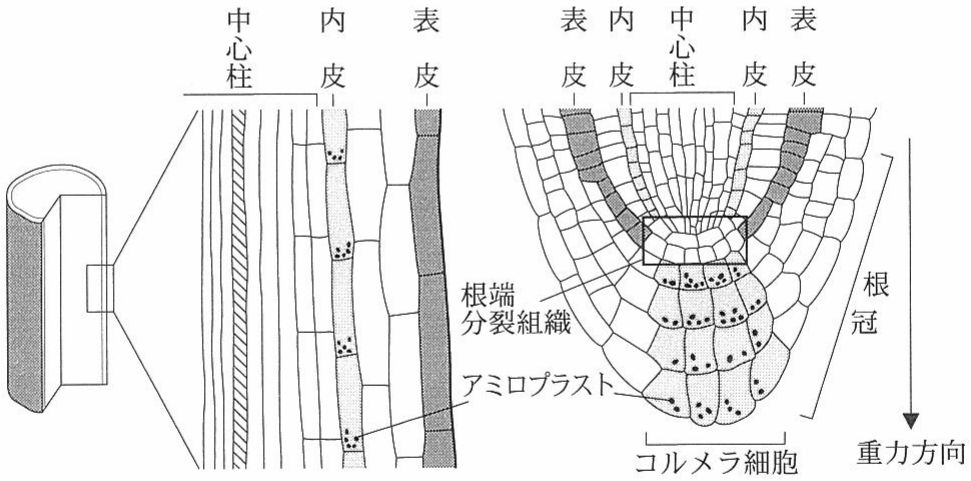
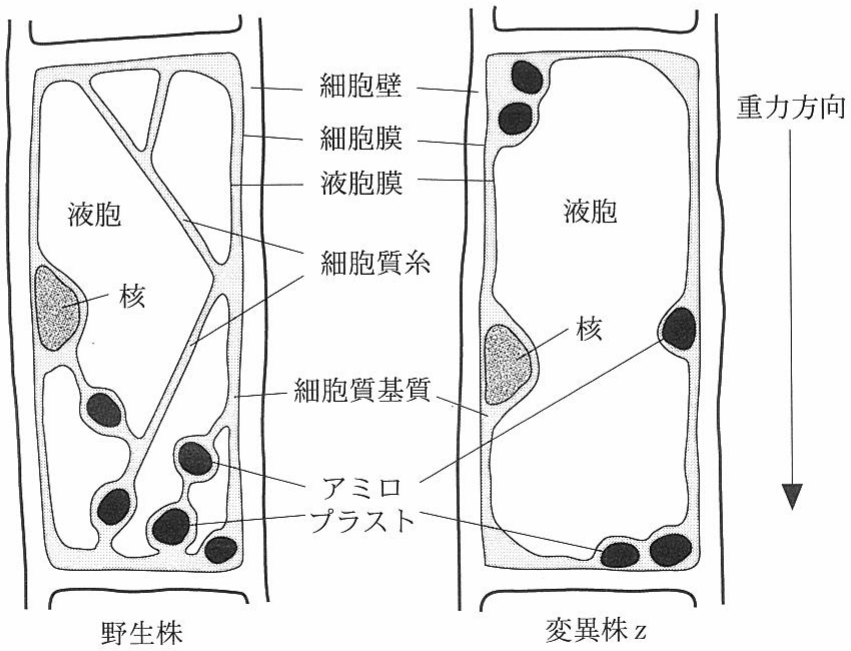
変異株 z については,アミロプラストの挙動を調べるために詳細な顕微鏡観察が行なわれた。野生株でも変異株 z でも,茎の内皮細胞には非常に大きな液胞が発達していた。野生株では液胞を横切る細胞質糸(注2—3)が多数存在し,アミロプラストの多くは細胞内下側の細胞質糸の中に観察された(図2—3左)。一方,変異株 z では細胞質糸がほとんど形成されず,アミロプラストは液胞膜と細胞膜の間に挟まれた状態で,細胞内の下側だけでなく上側や側面にも見出された(図2—3右)。さらに,生きたままの茎の組織を顕微鏡観察しながら,重力に対する植物の向きを変えると,内皮細胞のアミロプラストは,野生株では細胞質糸を通って新しい下面に数分で移動したが,変異株 z ではほとんど動かなかった。また,根のコルメラ細胞では,野生株でも変異株 z でも液胞はあまり大きく発達せず,アミロプラストはいずれの場合も細胞質基質の中を自由に動くことができた。
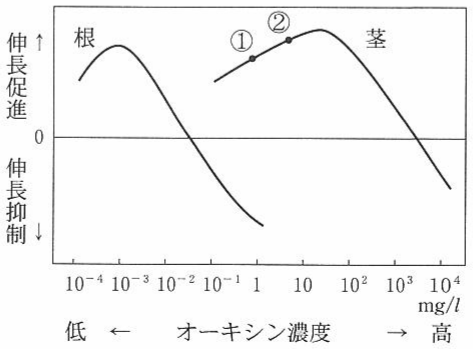
C 下線部(イ)について。暗いところで植物体を傾けたとき,茎でも根でも重力方向の下側でオーキシンの濃度がより高くなることが古くから知られている。図2—1で,茎と根の組織内のオーキシン濃度が,茎では 〜,根では 〜 の範囲内にあるとして,茎と根が示す重力屈性が逆になる理由を2行程度で述べよ。
Ⅱ 文2について,以下の小問に答えよ。
A ヒトの内耳にも,下線部(ウ)と同様のしくみがある。空欄5に入る語を記せ。
B 変異株 p について。この変異株の解析から,アミロプラストのデンプン粒蓄積は,重力屈性においてどのような役割があると考えられるか。1行で述べよ。
C 変異株 s について。この表現型から,茎と根の重力屈性における内皮細胞の必要性についてどのようなことが結論できるか。1行で述べよ。
D 下線部(エ)について。植物細胞の液胞には,一般的にどのような機能があるか。2つ記せ。
E 野生株と変異株 p,z の比較から,茎での重力感知のためにはアミロプラストのどのような挙動が重要であると推定されるか。1行で述べよ。
F 変異株 z の顕微鏡観察の結果から,茎の内皮細胞における細胞質糸の有無とアミロプラストの挙動の間にどのような関係があると推定されるか。2〜3行で述べよ。
PDFの 36 枚目
Ⅲ 植物の重力屈性の機構をさらに理解するために,シロイヌナズナの変異株の探索を続け,茎と根がともに重力屈性を示さない新しい変異株 x を得たと仮定する。変異株 x では,茎の内皮細胞でも根のコルメラ細胞でも,アミロプラストが発達して正常に重力方向に沈降し,また光屈性は正常であったとする。この変異株の表現型は,どのような機能を損なっていることが原因と考えられるか。以下の(1)〜(6)から,適切なものを2つ選べ。
ミトコンドリアは,好気的呼吸によってエネルギーを 1 という物質として取り出す働きをしている。ミトコンドリアの内部に突出する多数のひだは 2 と呼ばれ,ここに 1 を合成する酵素が存在する。一方,中央の部分はマトリックスと呼ばれ,ここには核 DNA とは異なるミトコンドリア DNA が存在する。ミトコンドリア DNA の分子は,ひとつの細胞に数百から数千個と多数含まれるので,DNA 分子が数多く必要だった従来の方法でも,分析が比較的容易であった。今日では,高温でも機能を失わない DNA ポリメラーゼを用いて DNA を人工的に増幅する手法である 3 によって,微量の DNA でも分析できる。
ミトコンドリア DNA に突然変異が蓄積する速度は,核 DNA に比べて 5〜10 倍ほど速い。特に,遺伝子をコードしていない D ループとよばれる領域では,コード領域よりも多くの突然変異が発見されている。そのため,突然変異を目印にして集団の関係を調べるのによく用いられる。
また,ミトコンドリア DNA は,母親由来のミトコンドリア DNA しか子供に伝わらない母性遺伝で子孫に伝わる。このミトコンドリア DNA の遺伝様式は,ヒト集団の起源や系統関係を調べるのに適している。現在のヒト集団を広く調べたところ,現代人のもつミトコンドリア DNA は,約 10 万年から 20 万年前のアフリカにいた女性に由来する可能性が示された。その結果は,化石の研究によるアフリカ単一起源説とよく一致している。
PDFの 38 枚目
〔文2〕
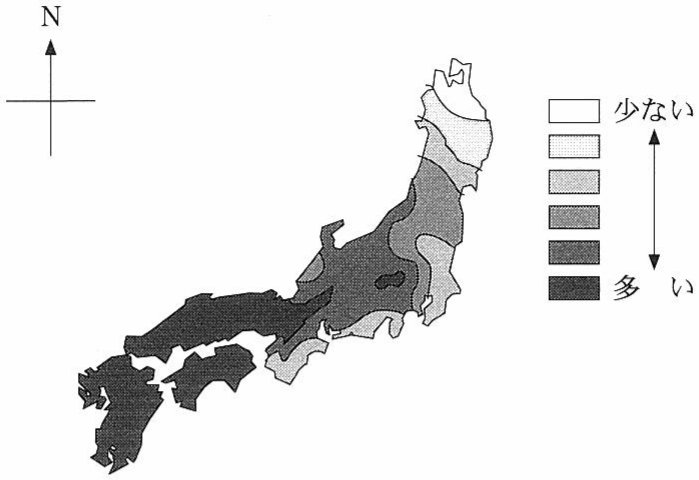
ミトコンドリア DNA 以外のヒトの遺伝子にも,私たちの進化の歴史が刻まれている。身近な遺伝的多型である ABO 式血液型も例外ではない。たとえば,現代の日本人集団では,A 型をあらわす遺伝子の割合(遺伝子頻度)について,九州・四国・本州における,図3—1のような地理的勾配が観察される。これは現在の日本人を形成した祖先集団の影響であると考えられる。
選択肢を1つずつ、「P を無くすとどうなるはずか」に置きかえて比べる。(1) P が頭部を抑制するなら、P が無いと頭部ができる(広がる)はずだが、頭部は無い。(3) P が腹部を促進するなら、P が無いと腹部が無くなるはずだが、全部腹部になった。(4) 頭部と胸部に役割が無いなら、P が無くても頭部と胸部はできるはずだが、できていない。
(2) P が胸部の形成を促進するなら、P が無いと胸部ができない。これは (b) と合う(頭部もできないので P は頭部も作らせているが、その選択肢は無い)。
答え
Ⅲ B
図1—1(a) で、頭部と胸部の境目は P の濃度がちょうど 6 の所、胸部と腹部の境目はちょうど 1 の所にある。
図1—2 で、R の mRNA は前から後ろまでどこも同じ量なのに、タンパク質 R は後ろで無くなっている。そして後ろにはタンパク質 Q がある。mRNA はあるのに、タンパク質にならない所がある、ということ。
(2) Q が R の mRNA の翻訳を止めるなら、Q のある後ろだけでタンパク質 R が作られない。mRNA は減らないので、図と合う。
(3)(4) は R の「転写」を変えるもの。転写を止めたり強めたりすれば、R の mRNA の量が後ろで変わるはずだが、図1—2(a) の R の mRNA はどこも同じ。そもそも R の mRNA は卵形成時に母親が入れたもの。(1) R が Q を分解するなら、Q が減るだけで、タンパク質 R の分布は変わらない。したがって間違いは (1)(3)(4)。
答え, ,
Ⅲ D
正常な胚では、後ろ(腹部になる所)にタンパク質 R が無い。そこに R を人工的に増やすと、腹部ができなくなった。
D ループは遺伝子をコードしていない領域なので、塩基配列が変わってもタンパク質は変わらず、はたらきを損ねにくい。ただし「影響がまったく無い」わけではない。D ループには DNA の複製や転写を調節する配列もあり、そこが変わると害になることもある。コード領域とくらべて害になりにくい、という比べ方で考える。
母性遺伝では、子のミトコンドリア DNA は母親のものを受けつぎ(新しく突然変異が起きた所を除けば同じ)、父親のものと混ざらない。
(1) 組換えが無いので、違いが生じるのは突然変異だけ。共有する変異をたどれば、そのまま祖先関係がわかる。正しい。(5) 核 DNA は1世代さかのぼるごとに父と母の2人に分かれ、5 世代で最大 人の祖先から少しずつ来ているが(家系の中で同じ人が重なれば、もっと少ない)、ミトコンドリア DNA は母・母の母・…と1人だけをたどる。1本の系統として解析できる。正しい。
(2) 分子の数は突然変異のたまりやすさとは関係がなく、系統解析に向く理由でもない。(3) 極体として捨てられるのは核の染色体で、変異したミトコンドリア DNA を選んで捨てるしくみではない。(4) 活性酸素の濃度を比べた記述は根拠が無く、変異が卵で多いことも母性遺伝が解析に向く理由にならない。
答え,
Ⅰ E
父から息子へだけ伝わる DNA を使えばよい。男性だけが持ち、父から息子へそのまま伝わる Y 染色体の DNA(組換えをほとんど起こさない部分)が、父系をたどる対象になる。
すると、違いを作る有力な説明は「どの集団の遺伝子が、どれだけ入ったか」になる(偶然のゆらぎ〔遺伝的浮動〕でも頻度は少し変わりうるが、西から東へそろってなだらかに下がる形は、入ってきた場所と混ざり方で説明するのが自然)。渡来系集団が九州北部から入ってきたことと、西ほど A が多いことを合わせると、渡来系集団は A 型をあらわす遺伝子の頻度が高かったと考えられる。