第1問
次の文章を読み,以下の設問に答えよ。
文 1
生物は,細胞の分化や環境の変化に応じて,1 つの遺伝子から異なるタンパク質を合成する。選択的スプライシングはこの代表的なしくみである。タコやイカなどの頭足類は無脊椎動物の中で大規模な神経系をもち,タコはパズルを解くなどの複雑な作業をすることができる。また,カモフラージュ能力に代表される環境応答能力を備えている。近年の研究により,頭足類は RNA 編集という,遺伝子のはたらきを調節するしくみを発達させていることがわかった。RNA 編集は転写後の RNA の塩基が他の塩基に変換されたり除去されたりするしくみである。タコでは,酵素反応によりアデノシンがイノシンに変換される RNA 編集が,他の生物と比べて圧倒的に多数の mRNA でおきる(図 1)。
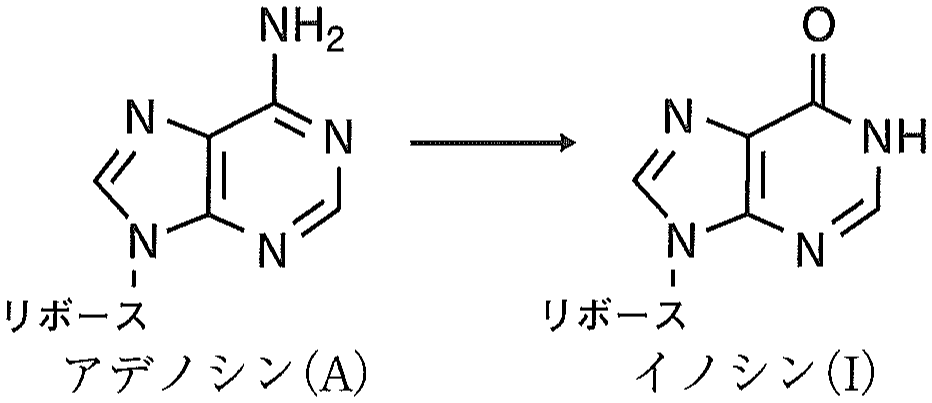
図 1 アデノシンからイノシンへの RNA 編集 アデノシンはアデニンとリボース(糖)が結合したものを指す。
設問(1):タンパク質の合成に関する(a)〜(e)の文について正しいものには○を,誤っているものには×を解答欄に記せ。
(a) rRNA と tRNA は原核生物と真核生物の両方に存在する。
(b) mRNA のコドンを認識する tRNA の配列をアンチセンスコドンとよぶ。
(c) リボソームは大サブユニットと小サブユニットで構成される。
(d) 真核細胞の滑面小胞体にはリボソームが多数付着している。
(e) tRNA によって運ばれたアミノ酸のカルボキシ基がポリペプチドに結合する。
文 2
タコでは,神経に関係するタンパク質をコードする多くの mRNA で RNA 編集がおきる。RNA 編集が,神経系の物質輸送に関係するタンパク質 A や活動電位に関係するタンパク質 B をコードする mRNA におき,それぞれのタンパク質のアミノ酸を変化させることがわかった。図 2 に,タンパク質 A および B をコードする mRNA 配列の一部,RNA 編集がおきていたコドン,RNA 編集がおきた後のコドンが指定するアミノ酸(RNA 編集型のアミノ酸)の情報を示す。
神経細胞は,(ア) という枝分かれした短い多数の突起と (イ) という細長く伸びた突起をもつ。(イ) に存在する細胞骨格の 1 つである (ウ) は物質輸送の際のレールとしてはたらく。タンパク質 A は (ウ) の上を (イ) の先端に向けて物質を輸送するモータータンパク質であり,RNA 編集によりその輸送速度が変化することがわかった。
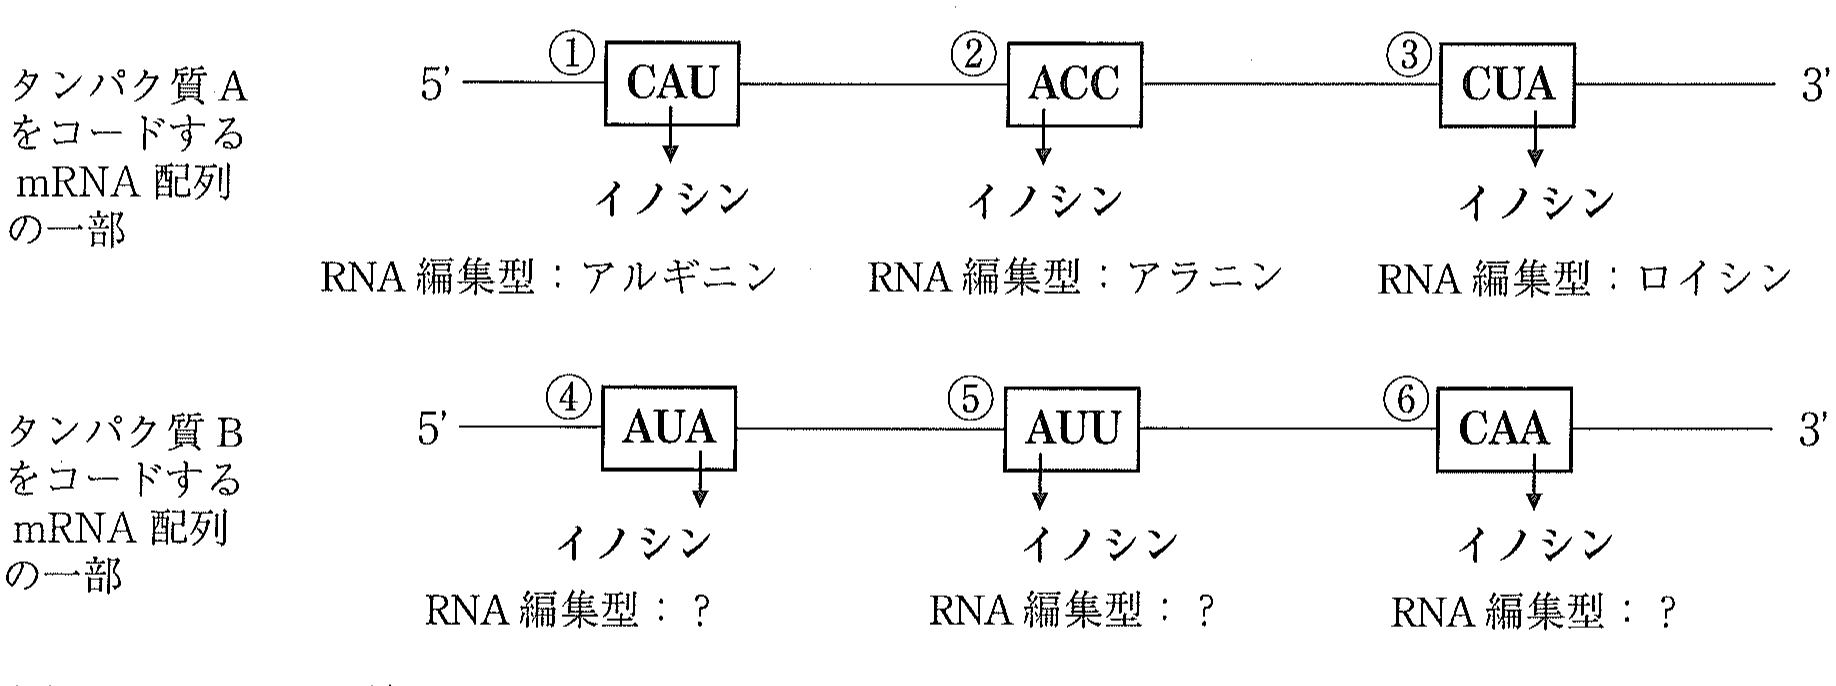
図 2 タンパク質 A および B をコードする mRNA 配列の一部,RNA 編集がおきていたコドン,RNA 編集型のアミノ酸の情報
設問(2):文中の空欄 (ア) 〜 (ウ) に適切な用語を記入せよ。
設問(3):タンパク質が合成される際に,RNA 編集で生じた mRNA のイノシンはアデニン以外の塩基として認識される。図 2 と表 1 の遺伝暗号表をもとに,アデノシンからイノシンへの RNA 編集がおきるとアデニン以外のどの塩基として認識されるかを選択肢(a)〜(d)から 1 つ選び,記号で答えよ。
(選択肢)(a) ウラシル (b) シトシン (c) グアニン (d) チミン
表 1 遺伝暗号表
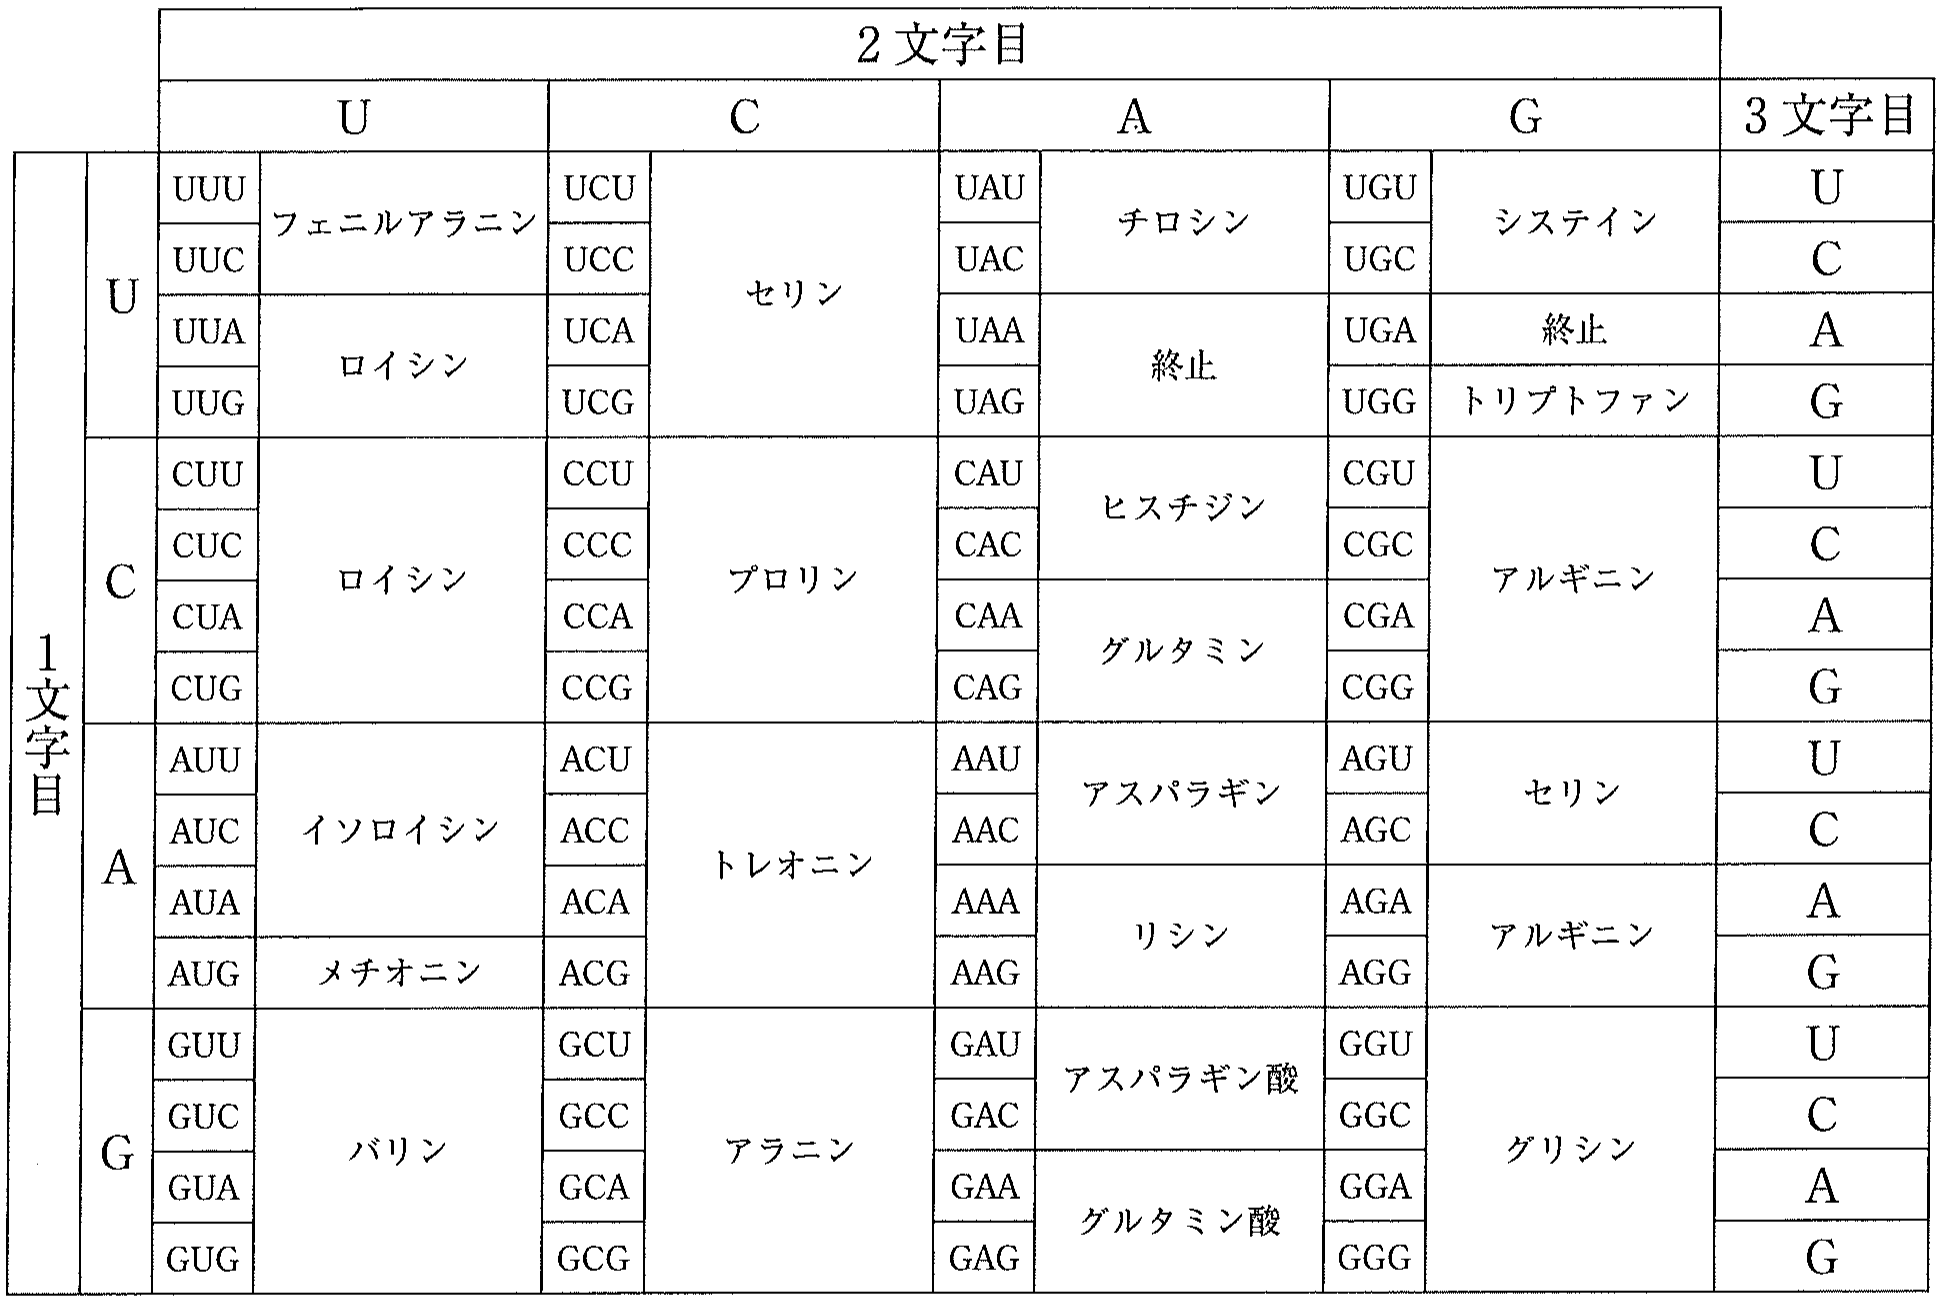
設問(4):図 2 の RNA 編集がおきた後のコドン④⑤⑥はそれぞれどのアミノ酸を指定するか答えよ。
設問(5):アデノシンからイノシンへの RNA 編集が 64 種類のコドン中のすべてのアデニンにおきた場合,それぞれのコドンが指定する情報が変化するコドンは何種類あるか答えよ。
文 3
文 2 のタンパク質 B は,活動電位に関係する電位依存性カリウムチャネルである。南極に住むタコでは,タンパク質 B をコードする mRNA の大部分で RNA 編集がおきている。一方で,熱帯に住むタコでは,タンパク質 B をコードする mRNA の RNA 編集の頻度は低い。X さんは,タンパク質 B に注目し,RNA 編集の影響を実験 1 で調べた。
(実験 1)(下線部の情報に注意して,以下の設問に答えよ。)
図 3(A)に一般的な神経細胞の活動電位の図を示す。活動電位は,複数のチャネルやポンプを介したイオンの流れの総和としてとらえることができる。図 3(B)のように細胞の細胞膜に細いガラスの管を接着させると,ガラスの管が接着した小さな膜に含まれる単一のチャネルやポンプを介したイオンの流れを測定できる。実際の細胞では,膜電位の変化に対応してチャネルの開閉とイオンの流れがおき,それにより膜電位とイオンの流れが刻一刻と変化するが,この実験では膜電位を強制的に一定にすることにより調べたい膜電位におけるイオンの流れを調べることができる。
RNA 編集がおきていない mRNA から合成されるタンパク質 B(通常型の電位依存性カリウムチャネル)と,RNA 編集がおきている mRNA から合成されるタンパク質 B(RNA 編集型の電位依存性カリウムチャネル)をそれぞれ産生させたアフリカツメガエルの卵母細胞を用意した。これらの細胞の細胞膜電位を −60 mV から強制的に +20 mV に変化させ,その状態を維持し,図 3(B)の方法を用いてタンパク質 B を介した陽イオンの細胞外への流れ(外向き電流)を測定した。結果を図 3(C)に示す。電位依存性カリウムチャネルは −60 mV より高い電位を維持すると,くりかえし開閉する性質をもつ。卵母細胞の静止電位,および,細胞内外のナトリウムイオンとカリウムイオンの濃度は一般的な神経細胞と同じであるとする。
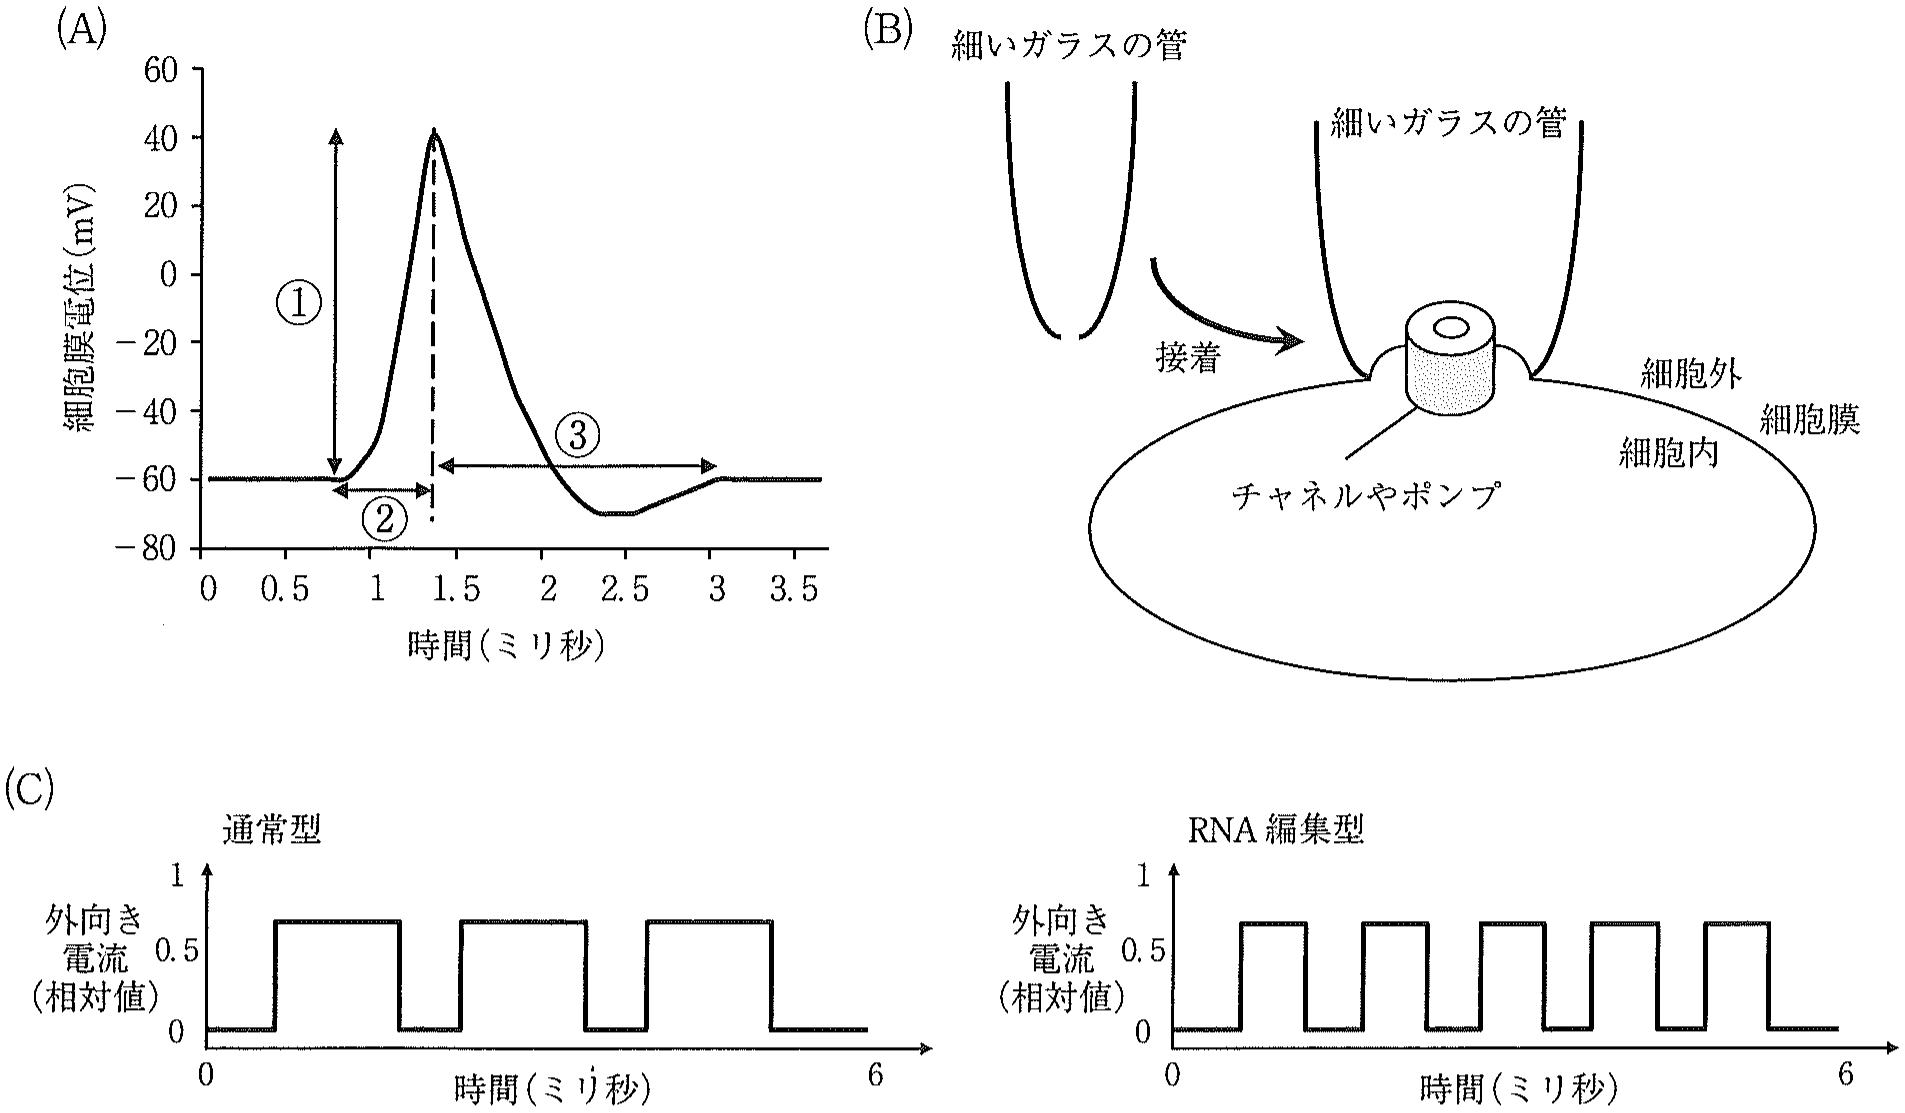
図 3 (A) 一般的な神経細胞の活動電位,(B) 単一のチャネルやポンプを介したイオンの流れの測定方法,(C) タンパク質 B 由来の電流の解析結果 (注)(C)において電流測定中の膜電位は +20 mV に固定されている。
設問(6):ナトリウムイオンとカリウムイオンの流れ方は,それぞれのイオンの濃度勾配と細胞内外の電位の差によって相対的に決定される。濃度勾配と電位差がつりあうとイオンの流れは止まる。電位依存性ナトリウムチャネルと,電位依存性カリウムチャネル(通常型)をそれぞれ産生させた卵母細胞を用意し,図 3(B)の方法を用いて,次の条件 1〜4 のもとそれぞれのチャネル由来の電流を測定した。各条件の電流のパターンとして最も適切なものを(a)〜(h)から選べ。なお,電流測定中の膜電位は各条件の電位に固定されており,チャネルが一度開いてから閉まるまでの時間は固定した電位の違いに影響されないものとする。 (条件 1〜4 の下線部に注意して答えること)
(条件 1) 電位依存性ナトリウムチャネルを産生させた細胞の細胞膜電位を −60 mV から強制的に +40 mV に変化させ,その状態を維持した
(条件 2) 電位依存性ナトリウムチャネルを産生させた細胞の細胞膜電位を −60 mV から強制的に −30 mV に変化させ,その状態を維持した
(条件 3) 電位依存性カリウムチャネルを産生させた細胞の細胞膜電位を −60 mV から強制的に +40 mV に変化させ,その状態を維持した
(条件 4) 電位依存性カリウムチャネルを産生させた細胞の細胞膜電位を −60 mV から強制的に −30 mV に変化させ,その状態を維持した
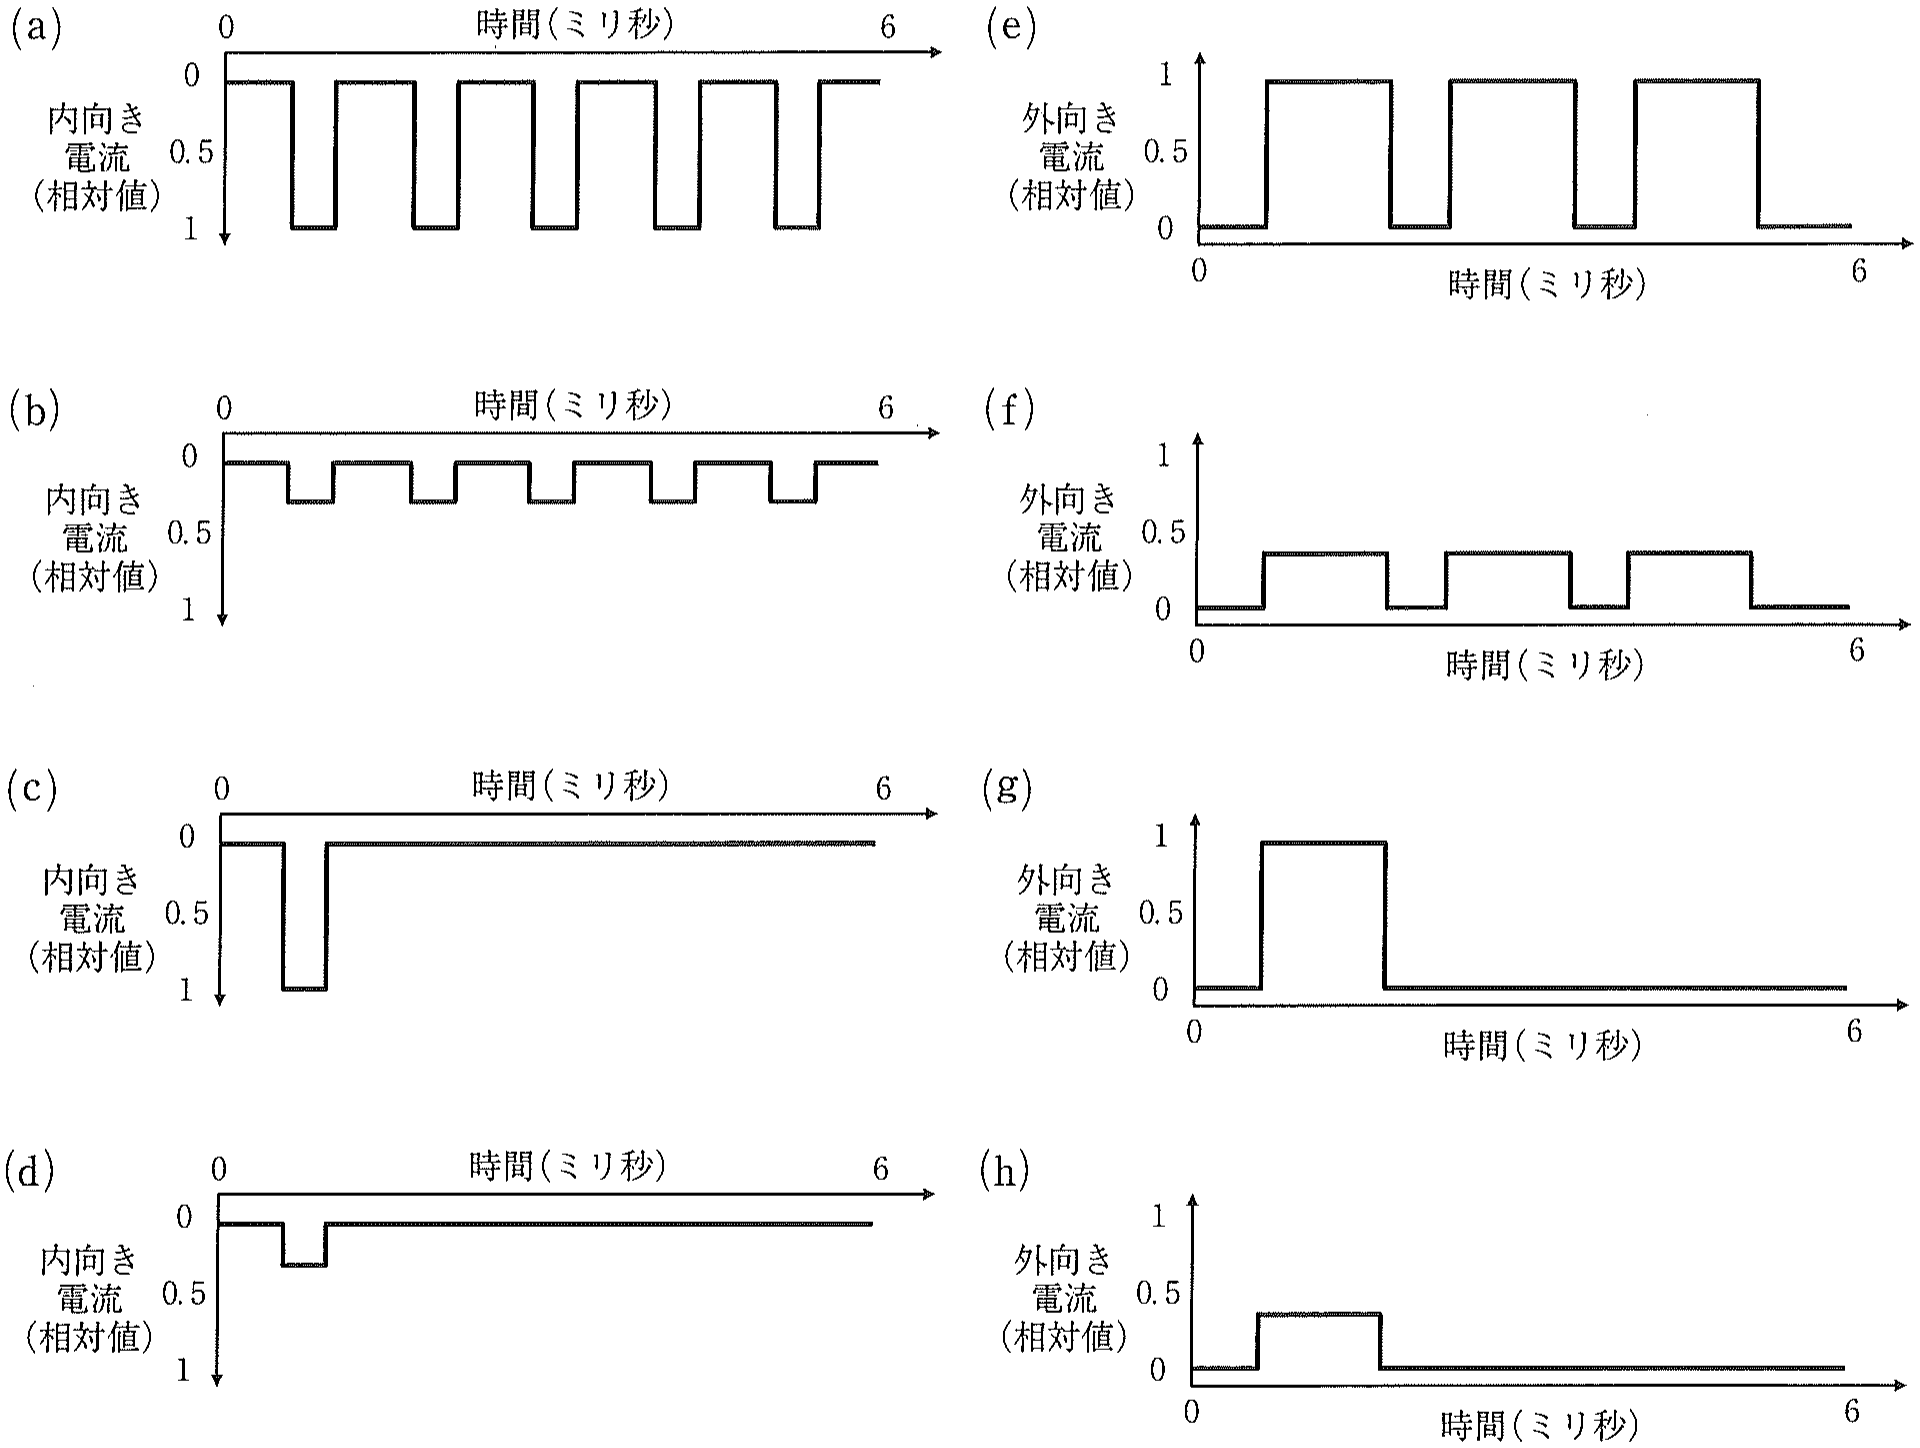
設問(7):図 3(C)の結果の解釈に関する下記の文中の空欄 (エ),(オ) に当てはまる適切な用語を以下のリストから選んで記入せよ。ただし,1 回の活動電位において,個々の電位依存性カリウムチャネルは 1 回だけ開閉し,過分極がおきるまでカリウムチャネルは開いているものとする。
RNA 編集が誘導されると,図 3(A)の活動電位の形が変わることが予想される。具体的には,図 3(A)の (エ) の長さが (オ) ことが予想される。
(用語リスト)・① ・② ・③ ・長くなる ・短くなる
設問(8):神経細胞を低温環境におくと,1 回の活動電位の時間(図 3(A)の②と③を足した時間)が長くなってしまうことが知られている。南極に住むタコが低温下で神経の活動を維持する上で,RNA 編集によるタンパク質 B の変化にはどのような利点があるかを解答欄の枠内で述べよ。なお,刺激の強さに応じた神経細胞の反応の観点から考察し,以下の用語をすべて使うこと。用語は複数回使ってもよい。
(用語リスト)・刺激の強さ ・不応期 ・興奮 ・頻度
文 4
世界のさまざまな海で複数種のタコを採取し,採取した海の水温と文 2 のタンパク質 B をコードする mRNA の RNA 編集の頻度を比較した。結果を図 4(A)に示す。RNA 編集の効率は,RNA 編集がおきるアデニンの周囲の配列に影響されることが知られている。X さんは,タコの種ごとに RNA 編集がおきるアデニンの周囲の DNA の塩基配列が違うことによって,RNA 編集の効率が変化し,異種のタコが異なる環境(水温)に適応しているのではないかと仮説を立てた。ところが,予想に反して,アデニンの周囲の DNA の塩基配列の変化はゲノム全体のタンパク質をコードする領域の塩基配列の変化と比べて極めて小さいことが明らかになった。アデノシンをイノシンに変換する酵素をコードする遺伝子の塩基配列も複数種のタコで共通していた。
一方で,RNA 編集の効率は,個体がおかれた環境の変化によっても変わることが知られている。そこで,X さんは,図 4(A)の矢印のタコをさまざまな水温で飼育し,タンパク質 B をコードする mRNA の RNA 編集の頻度を調べた。結果を図 4(B)に示す。
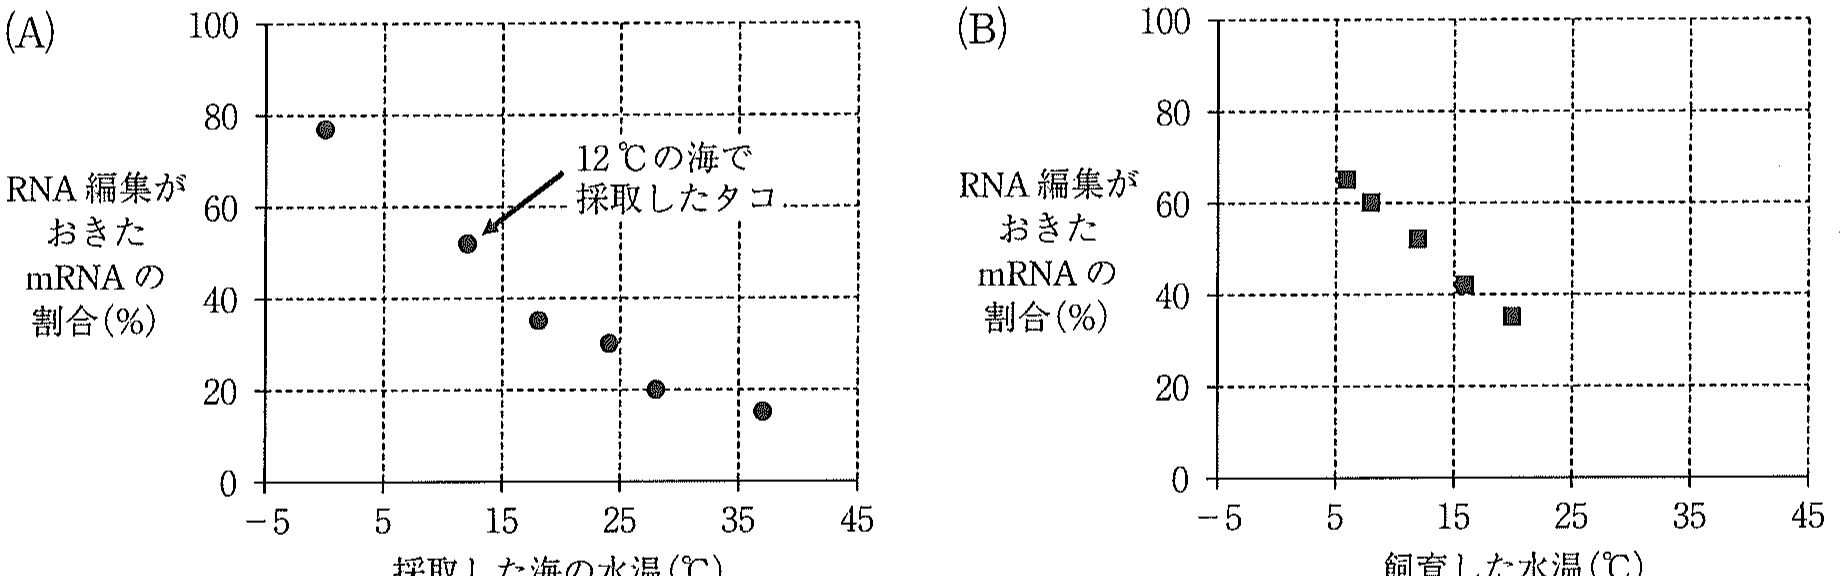
図 4 (A) タコを採取した海の水温とタンパク質 B をコードする mRNA の RNA 編集の頻度の関係,(B) 12 ℃の海で採取したタコ((A)の矢印)をさまざまな水温で飼育した場合のタンパク質 B をコードする mRNA の RNA 編集の頻度の変化
設問(9):RNA 編集がおきるアデニンの周囲の DNA の塩基配列が複数種のタコの間で共通している理由を解答欄の枠内で述べよ。複数種のタコのそれぞれが,生息している海の水温の変化にどのように適応しているかという観点に留意して考察すること。
第2問
次の文章を読み,以下の設問に答えよ。
文 1
がん原遺伝子やがん抑制遺伝子の突然変異によって,正常な細胞が①際限なく無秩序に増殖する細胞に変化するとがんとなる。がん原遺伝子に突然変異がおこり細胞増殖の調節に異常が生ずるとがん化が引きおこされる。一方,がん抑制遺伝子は普段は細胞の無秩序な増殖を抑制しているが,突然変異の結果,産生されるタンパク質が機能を失うことにより,がん化を引きおこす遺伝子である。上記のような突然変異は 2 つに大別される。一つはタンパク質におけるアミノ酸の変化を伴う DNA の塩基配列の変化であり,(ア),(イ),(ウ) と分類される。もう一つは,遺伝子数の異常であり,遺伝子の (イ) と重複がある。変異したがん原遺伝子からつくられる異常なタンパク質のはたらきを阻害する化合物は,がん細胞の増殖抑制や細胞死を誘導できるため,がん治療薬としての開発が進められてきた。
遺伝子 E から産生されるタンパク質 E は,情報伝達物質を受け取る分子である。このような分子は一般的に (エ) とよばれる。タンパク質 E は細胞膜に存在し,細胞外に情報伝達物質 L の結合部位,細胞内にリン酸化反応(基質タンパク質にリン酸基を共有結合させる反応)を担う酵素活性部位をもつ(図 1)。情報伝達物質 L がタンパク質 E に結合するとタンパク質 E の立体構造が変化し,タンパク質 E どうしの二量体形成が促進される。この二量体形成は,酵素活性部位の活性化に重要である。活性化されたタンパク質 E は,ATP から得られるリン酸基を二量体形成によって結合したもう一方のタンパク質 E の 1050 番目のチロシン残基に結合させる。このリン酸化は,細胞の増殖を促進するとともに細胞死を抑制する。タンパク質 E はヒトの肺がん細胞において異常が頻繁にみられるため,肺がんに対する治療薬としてタンパク質 E のはたらきを阻害する化合物の開発が進められてきた。
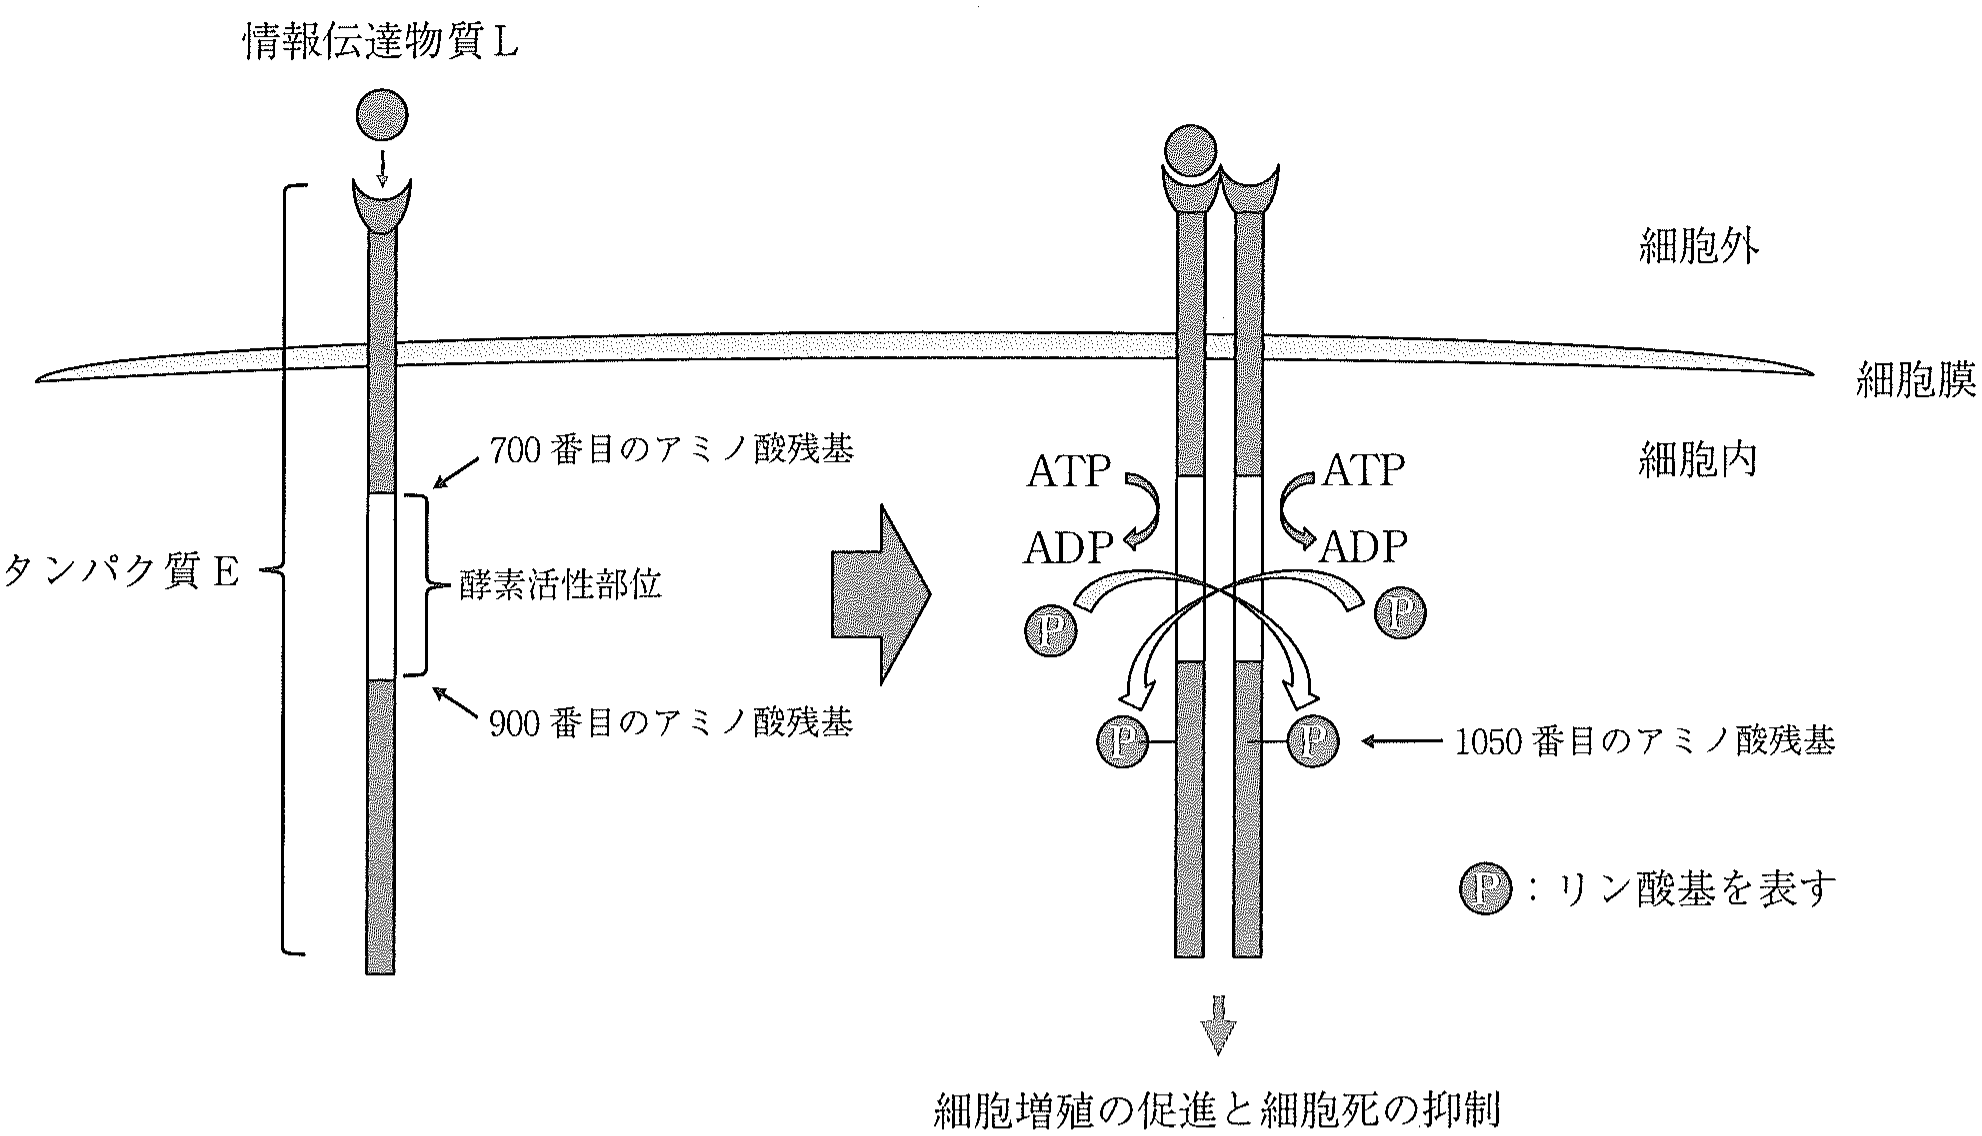
図 1 情報伝達物質 L によるタンパク質 E 活性化のしくみ
設問(1):問題文の空欄 (ア) 〜 (エ) に入るもっとも適切な用語を記入せよ。
文 2
タンパク質 E を阻害する肺がん治療薬の一つである化合物 A は ATP と類似した構造をもち,タンパク質 E における ATP の結合部位に可逆的に結合することによりタンパク質 E の酵素活性を阻害する。これにより細胞増殖を抑制し,がんの縮小が期待される。化合物 A は,一部の肺がん患者に対してきわめて大きながんの縮小効果を示した。しかし,多くの肺がん患者においては効果を示さなかった。この違いの原因を解明するために,患者から採取されたがん細胞の遺伝子検査を実施したところ,がんの縮小効果がみとめられたすべての患者で,タンパク質 E の 880 番目のロイシンがアルギニンに変化した遺伝子 *Em1* がみつかった(図 2)。また,効果の認められなかった患者においては遺伝子 *Em1* はみつからなかった。がんの縮小効果がみとめられた患者に化合物 A の投与を継続したところ,約 1 年後には化合物 A によるがんの縮小効果はみられなくなった。この原因を解明するために,再度増大したがんから
採取した細胞の遺伝子検査を実施したところ,すべての患者で,タンパク質 E の 880 番目のロイシンがアルギニンに変化する変異に加え,850 番目のトレオニンがメチオニンに変化した遺伝子 *Em2* がみつかった(図 2)。タンパク質 E,Em1,Em2 による細胞増殖の促進作用の違いを明らかにするために実験 1 および実験 2 を行った。
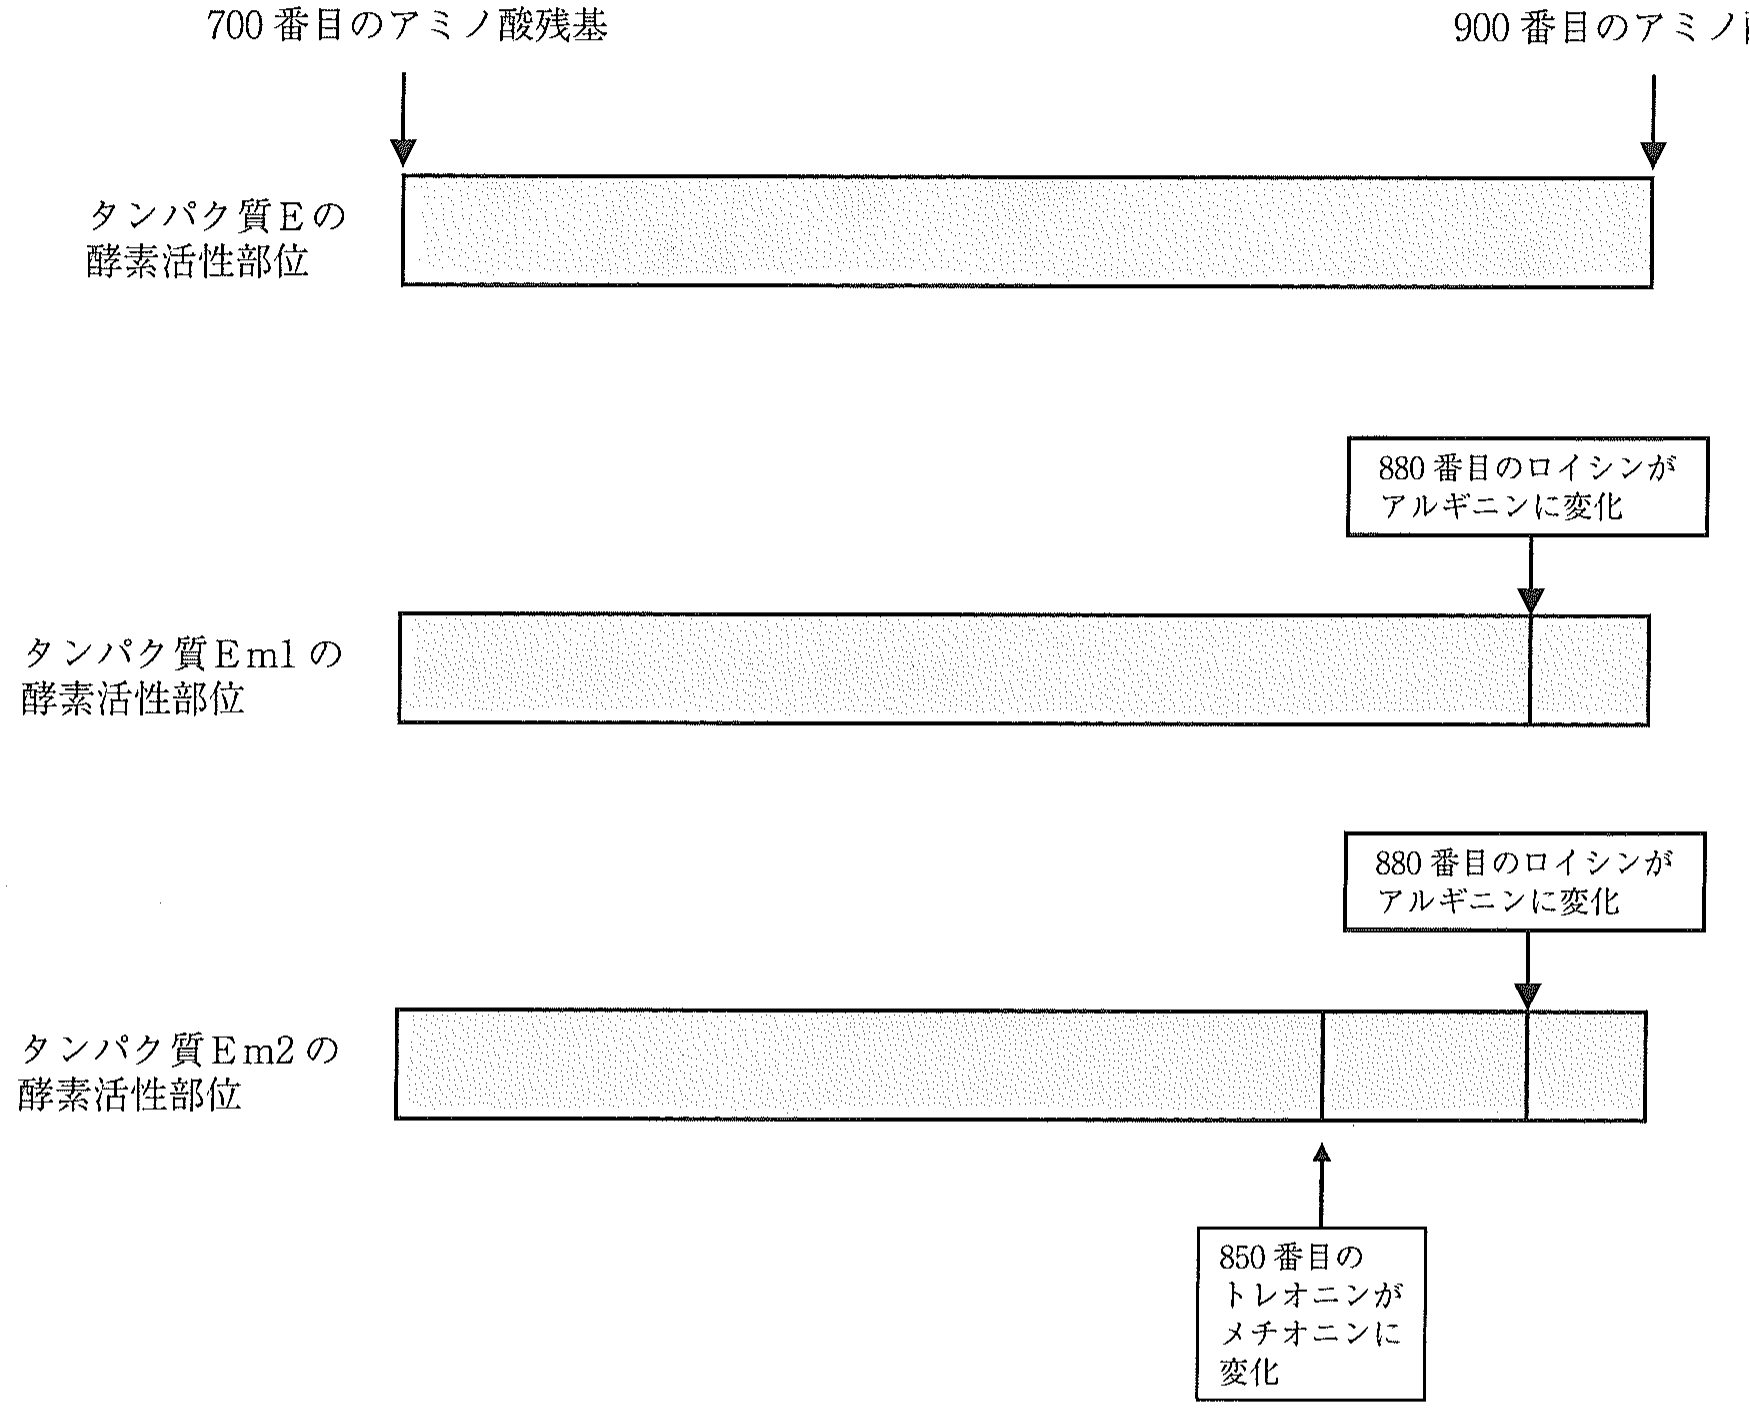
図 2 タンパク質 E,Em1,Em2 の酵素活性部位の概略
(実験 1)
タンパク質 E および情報伝達物質 L のいずれも産生しない細胞 M に遺伝子 *E*,遺伝子 *Em1*,遺伝子 *Em2* をそれぞれ別々に導入し,タンパク質 E,Em1,Em2 を産生させた。それぞれの細胞におけるタンパク質 E,Em1,Em2 の量は同じであった。細胞培養液へ情報伝達物質 L を添加し,細胞を 3 日間培養したのち細胞数を数え,グラフ化した(図 3)。
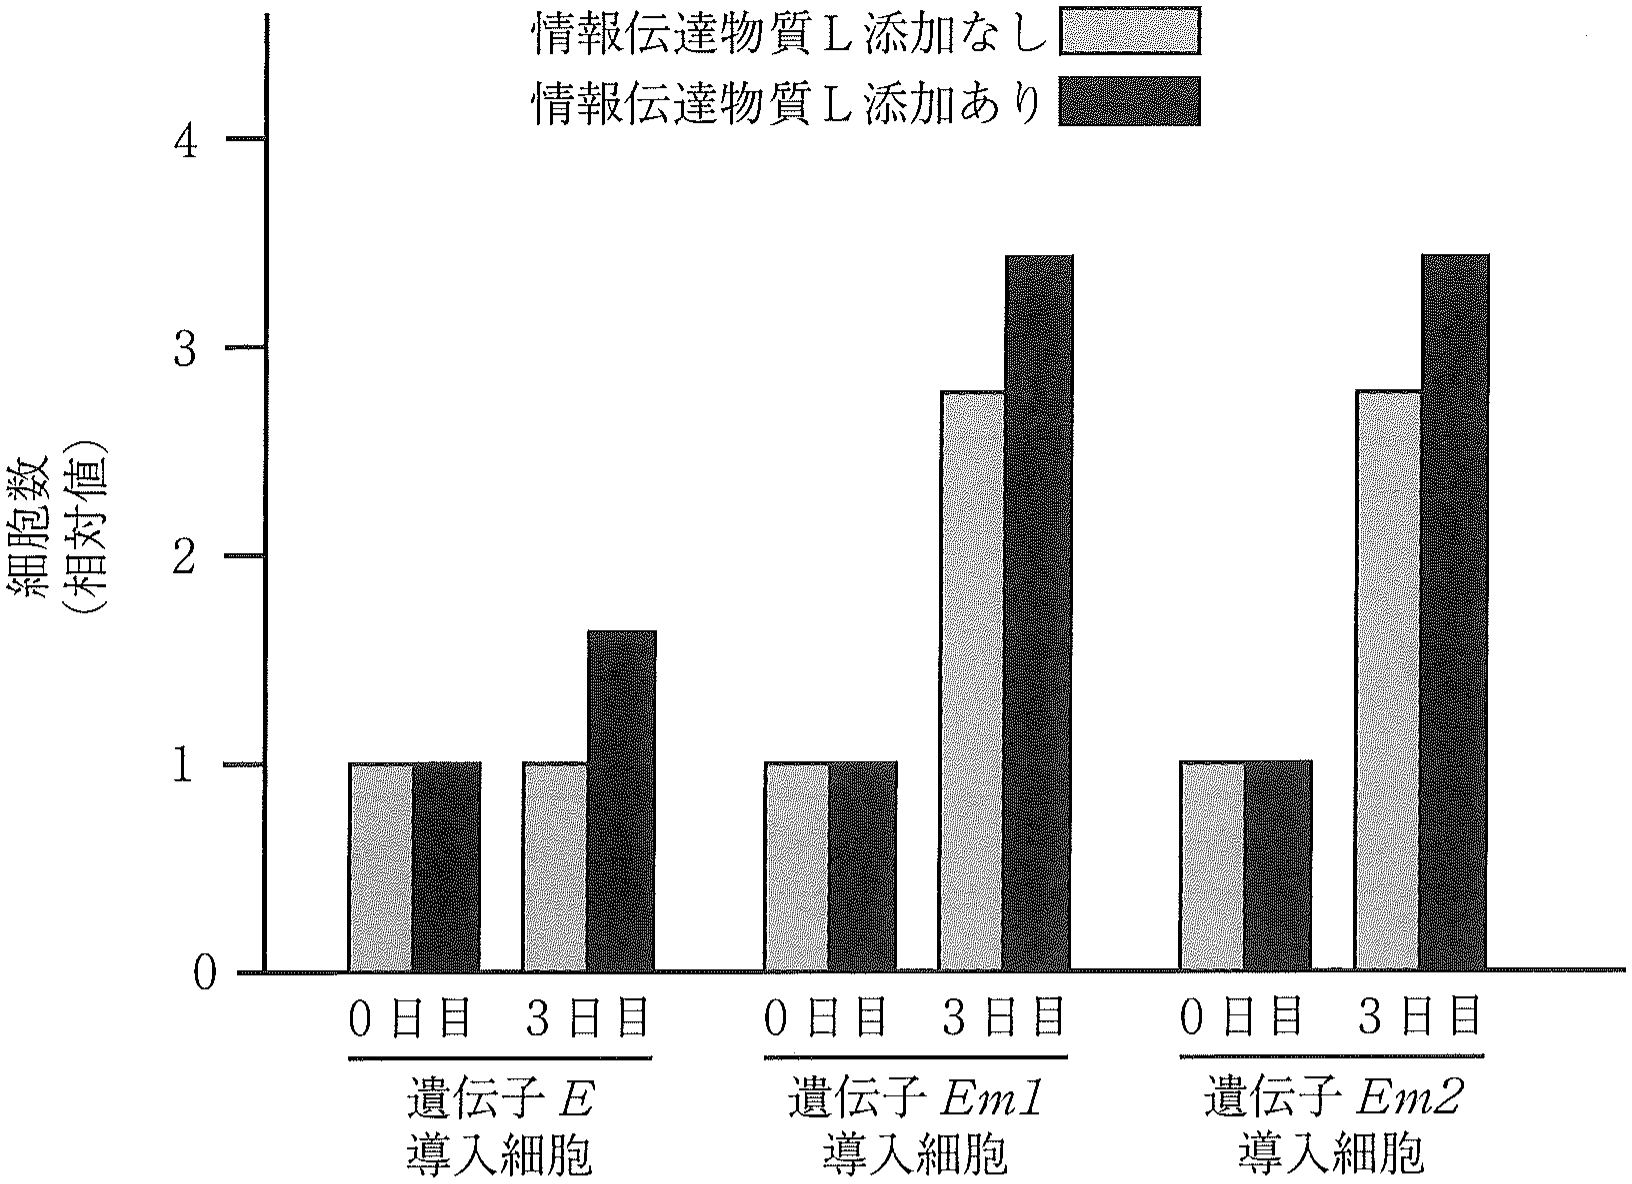
図 3 遺伝子 *E*,遺伝子 *Em1*,遺伝子 *Em2* 導入細胞における細胞数の変化
設問(2):図 3 の結果は遺伝子 *Em1* から産生されるタンパク質 Em1 または遺伝子 *Em2* から産生されるタンパク質 Em2 のはたらきによって,細胞が文 1 の下線部①がのべる際限なく無秩序に増殖する細胞に変化したことを示す。それは細胞のどのような性質によるか解答欄に述べよ。ただし,用語「情報伝達物質 L」を含めること。
(実験 2)
実験 1 の細胞を用いて以下の実験 2 を行った。情報伝達物質 L を添加し,タンパク質 E,Em1,Em2 の量および 1050 番目のアミノ酸がリン酸化されているタンパク質の量の変化を時間を追って測定した。タンパク質の量の測定は以下の手順で行った。細胞内で二量体となったタンパク質 E,Em1,Em2 を検出するために,二量体化した状態を固定する試薬で細胞を処理したのち,タンパク質を含む全細胞溶解液を回収した。この溶解液を電気泳動することで,タンパク質 E,Em1,Em2 を分子量に基づき分離した。タンパク質 E,Em1,Em2 を共通に認識する抗体と(図 4a),
1050 番目のアミノ酸がリン酸化されたタンパク質 E,Em1,Em2 を共通に認識する抗体を用いて(図 4b)それぞれのタンパク質を検出した。なお,バンドの太さとタンパク質の量は比例する。ただし,情報伝達物質 L 添加後の新たなタンパク質の合成や分解によるタンパク質の量の変化は無視できるものとする。
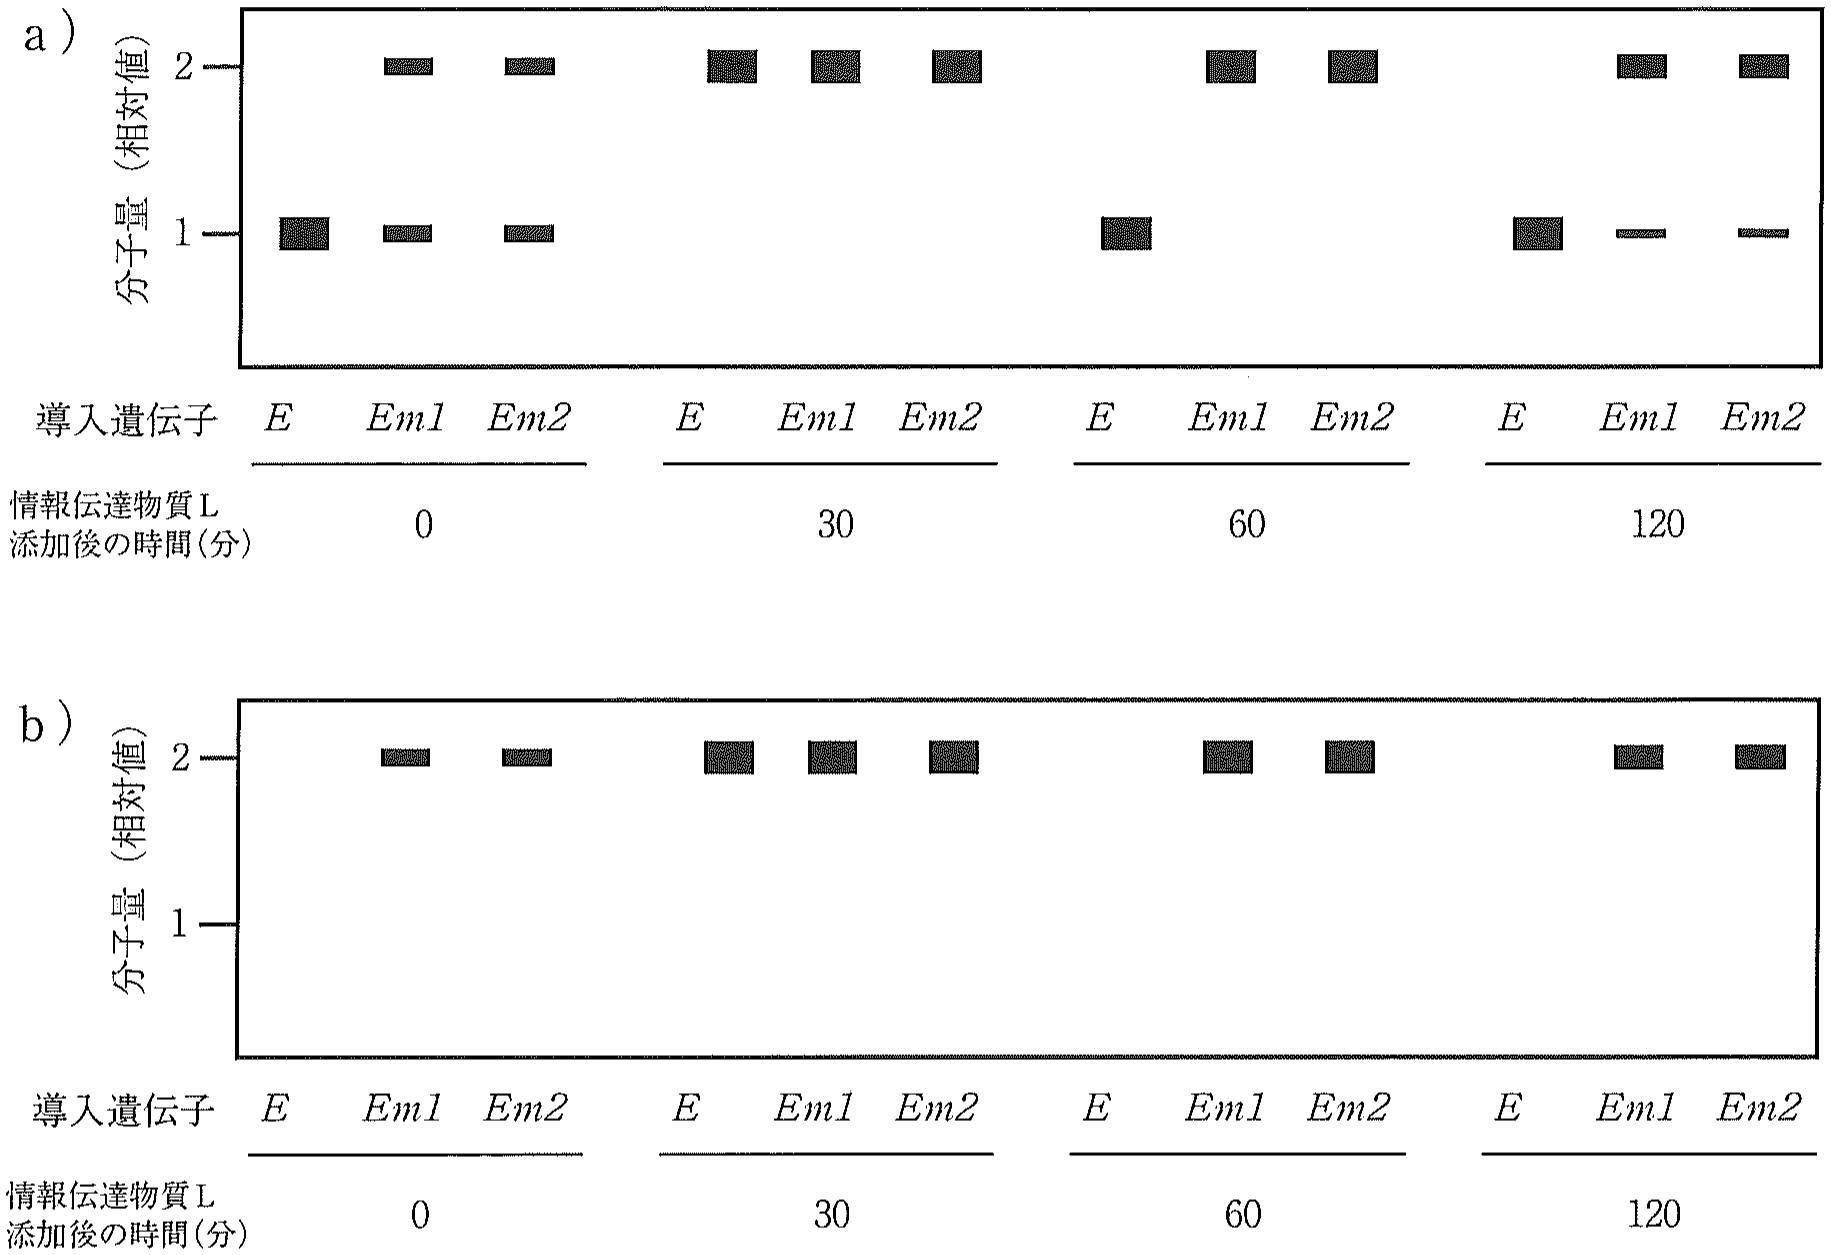
図 4 情報伝達物質 L 添加後のタンパク質 E,Em1,Em2 の変化 a)タンパク質 E,Em1,Em2 の検出結果 b)1050 番目のアミノ酸がリン酸化されたタンパク質 E,Em1,Em2 の検出結果
設問(3):図 4 の結果から,タンパク質 Em1 とタンパク質 Em2 は,タンパク質 E とは異なる性質を 2 つもつことが分かる。この 2 つの性質を解答欄に述べよ。
文 3
なぜ化合物 A は遺伝子 *Em1* をもつがん細胞に対してのみ大きな増殖抑制効果を示すのか,また,なぜ,遺伝子 *Em2* に変化するとその効果がなくなるのかは不明であった。そこで,その解明を目的とする実験 3 を行った。
(実験 3)
実験 1 で使用した遺伝子 *E*,*Em1*,*Em2* を導入した細胞 M に対する化合物 A の増殖抑制効果を調べるために,情報伝達物質 L を含む細胞培養液中において,化合物 A “あり” と “なし” の 2 つの条件で一定期間培養後に細胞数を数え,グラフ化した(図 5)。このグラフは化合物なしの条件で培養した細胞数に対する,化合物ありの条件で培養した細胞数の割合を表す(図 5)。つぎに,化合物 A とタンパク質 E,Em1,Em2 との結合の強さを評価した(図 6)。新たに開発された化合物 B は化合物 A と同様に,酵素活性部位と ATP の結合を可逆的に阻害することによって作用する。化合物 B についても化合物 A と同様にタンパク質 E との結合の強さを評価した(図 6)。なお,化合物 A および化合物 B によるタンパク質 E の酵素活性の阻害効果は,タンパク質 E と ATP の結合の強さ,ならびにタンパク質 E と化合物の結合の強さの二つの要因のみによって決定されるものとする。
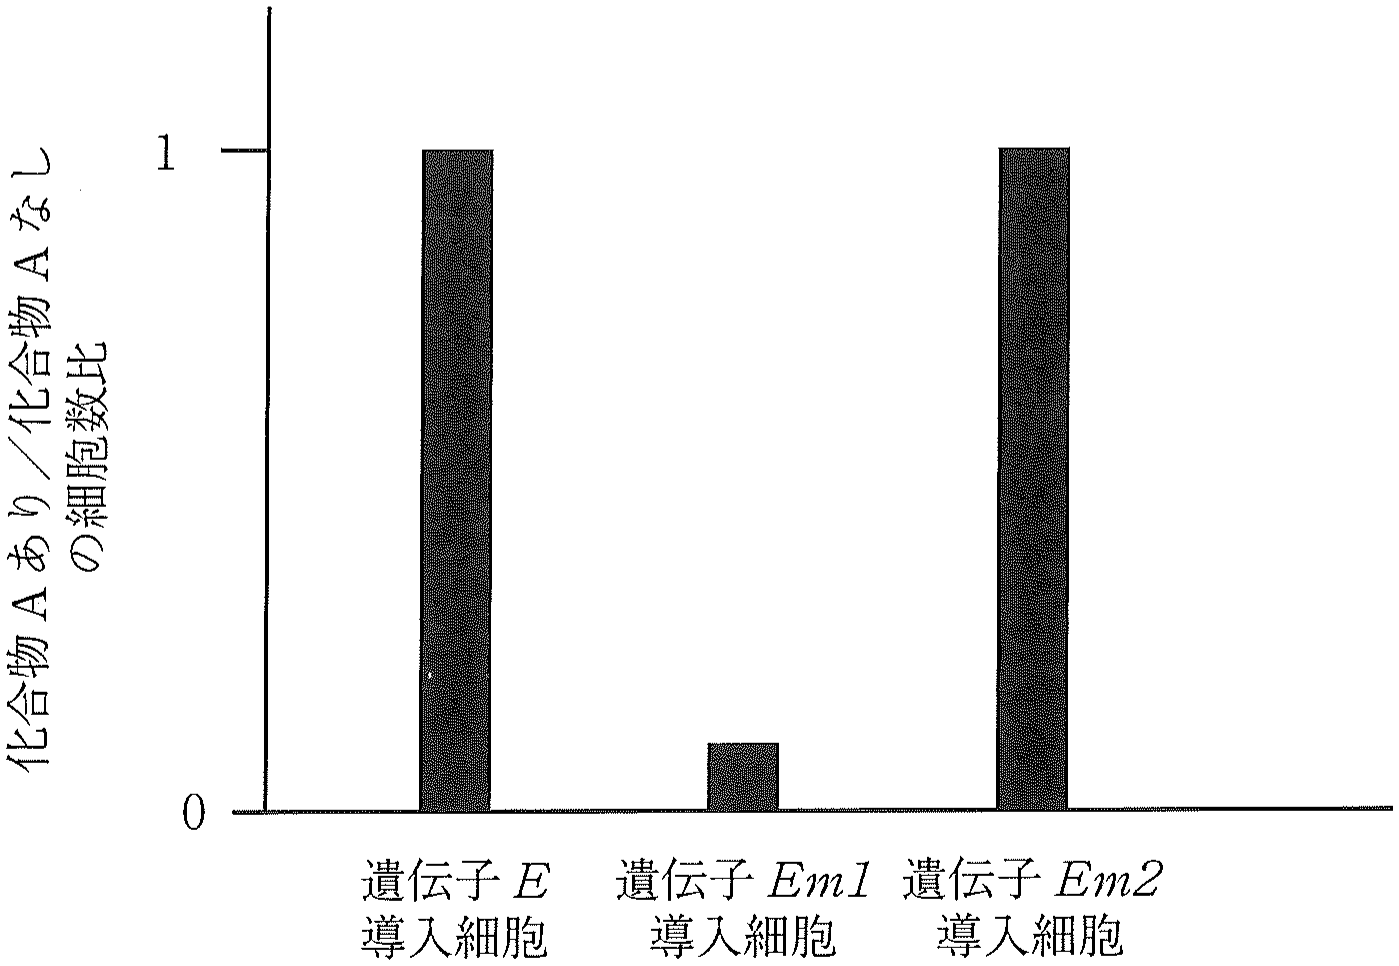
図 5 遺伝子 *E*,*Em1*,*Em2* 導入細胞における化合物 A の細胞増殖への影響
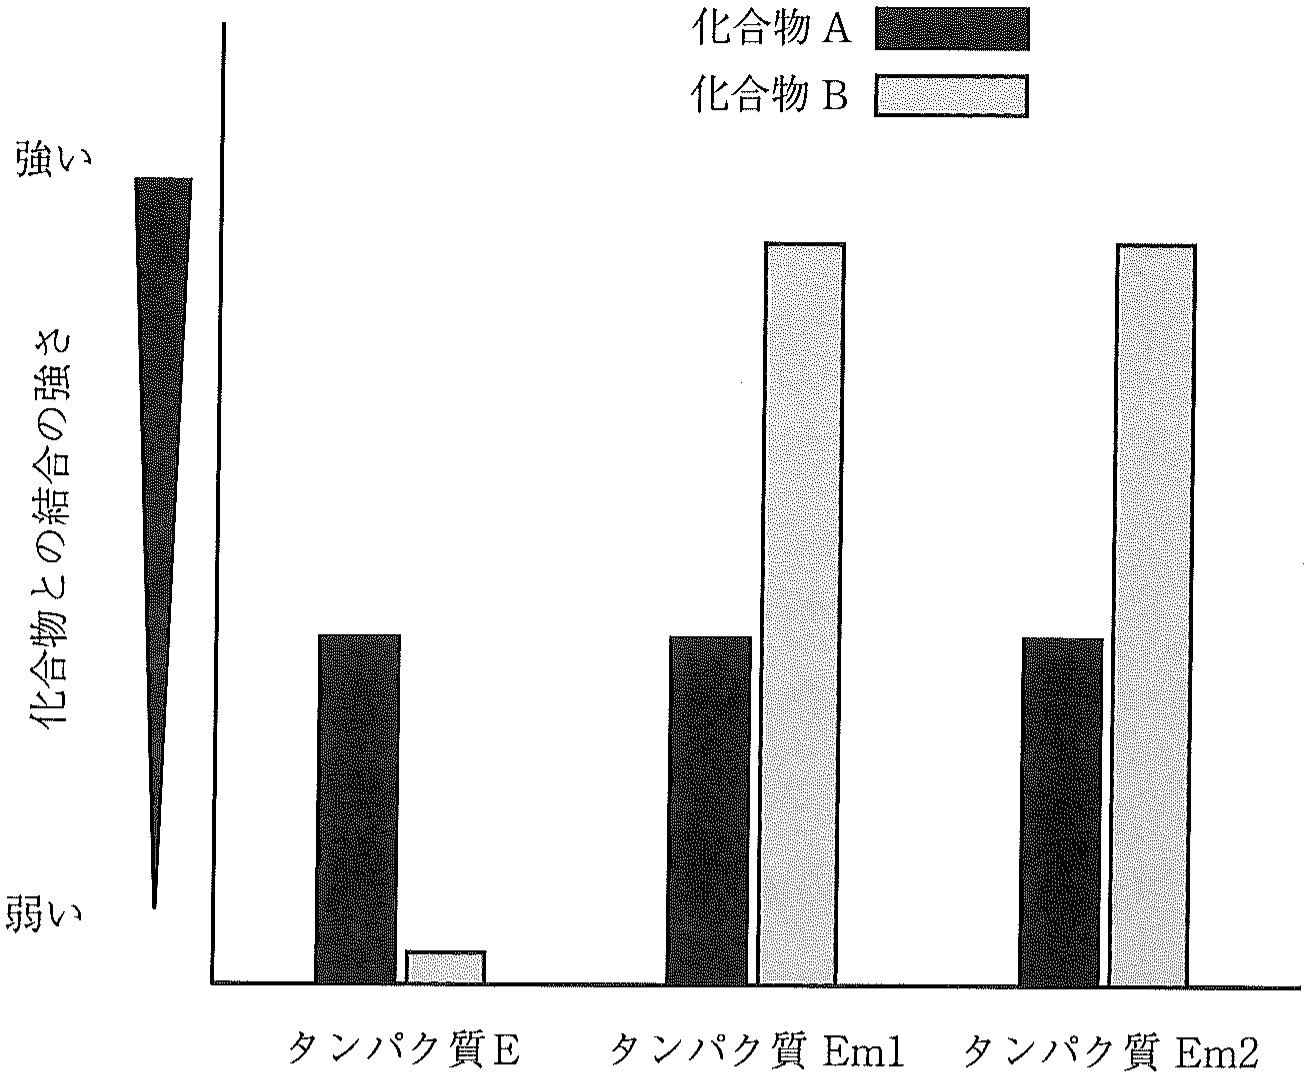
図 6 化合物 A,B とタンパク質 E,Em1,Em2 との結合の強さ
設問(4):実験 3 の結果から導かれる解釈を以下に示す。空欄に当てはまる適切な語句を以下の用語リストから選択し記入せよ。ただし,用語は複数回使用してもよい。
化合物 A とタンパク質 Em1,Em2 との結合の強さは化合物 A とタンパク質 E との結合の強さと比べると ①。そのため,化合物 A によるタンパク質 E,Em1,Em2 の酵素活性に対する阻害効果は,それぞれのタンパク質と ② との結合の強さの程度によって決まる。化合物 A は酵素活性の阻害メカニズムの一つである ③ によって,タンパク質の酵素活性を阻害していると予測されるため,タンパク質 Em1 は ② との結合の強さがタンパク質 E と比べ ④ と推測される。また,タンパク質 Em2 と ② との結合の強さはタンパク質 Em1 と ② との結合の強さに比べ ⑤ と推測される。一方,化合物 B は化合物 A と比べるとタンパク質 Em1 およびタンパク質 Em2 との結合の強さが
⑥。また,タンパク質 E との結合の強さは ⑦。化合物 B が遺伝子 *Em2* をもつ患者においてがんの縮小効果を示した場合,その有効性は化合物 B とタンパク質 Em2 との結合の特性に起因すると推測される。
(用語リスト)・同程度である ・強い ・弱い ・ATP ・ADP ・競争的阻害 ・非競争的阻害 ・フィードバック阻害 ・化合物 A ・化合物 B
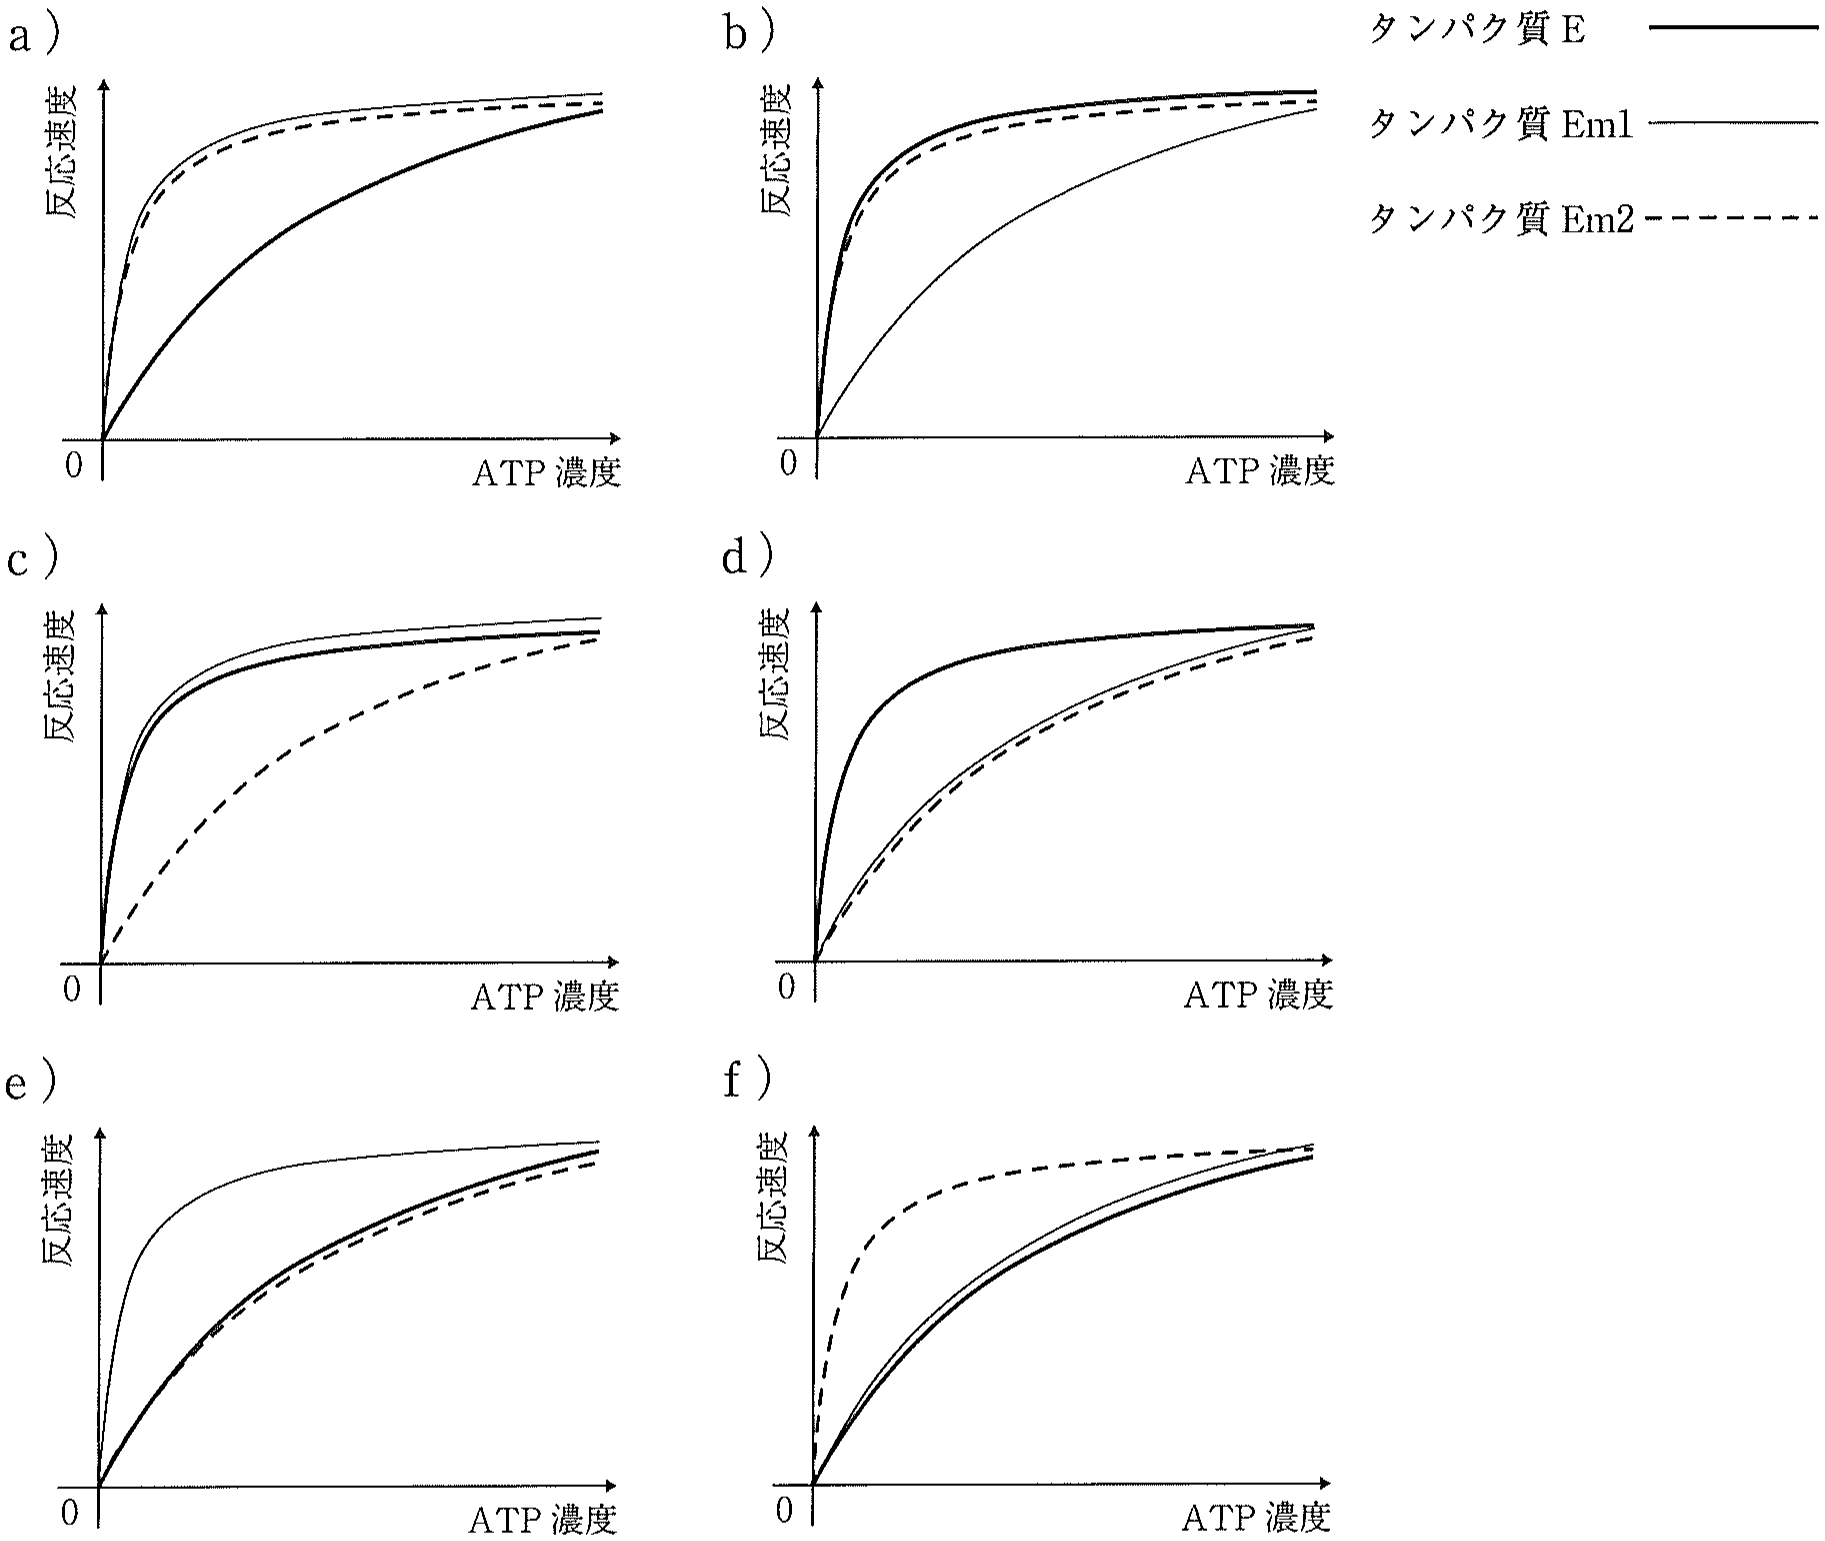
設問(5):変異がタンパク質 E の酵素活性に与える影響を明らかにするために,タンパク質 E,Em1,Em2 の酵素活性部位を使用して,ATP 濃度とそれぞれのタンパク質の酵素反応速度を測定した。予測される結果として,もっとも適切なものを下の a)〜f)のうちから一つ選び,記号で答えよ。
第3問
次の文章を読み,以下の設問に答えよ。
文 1
畑で作物を密に栽培すると,群落の内部では日光が届きにくくなる。最初に直射日光のよく当たる上位で成長し活発に光合成をしていた葉は,やがて個体の成長とともにさらに上位に展開した葉により日光を遮られ,受光量が減少した中位・下位葉となる。野外の強光下で展開した葉が群落内部で弱光下にさらされた場合にどのように順応しているかを明らかにするため,以下の模擬生育実験を行った(図 1)。
イネ科草本植物であるトウモロコシを自然光が入るガラス室にて鉢植えで数週間生育後,最も上位にある成熟葉に印(★)を付けた(成熟葉とは,出葉してから完全に展開した葉を指す)。同条件で生育した 2 つの鉢を 2 種類の区に分け,そのまま光が当たる非遮光区と,植物体全体を遮光して受光量を 5 分の 1 ほどに減らした遮光区に分け,それぞれ 3 週間生育させた。その結果,印を付けた葉は 3 週間後には中位の葉となった。遮光せず生育を続けて新たに発生・展開した最上位の成熟葉を“強光-上位葉”,3 週間前には上位葉であったが個体が生育するにつれ中位葉となり強光を受け続けた葉(印を付けた葉)を“強光-中位葉”とした。また,遮光して生育を続けて新たに発生・展開した最上位の成熟葉を“弱光-上位葉”,3 週間前に印を付け遮光下で生育後に中位になった葉を“弱光-中位葉”とした。なお,光強度以外の条件(温度, 濃度,栄養条件など)は両処理区で同じであるものとする。本実験では,強光-上位葉が群落内部で生育する個体の上位葉,弱光-中位葉が群落内部生育個体の中位・下位葉を反映している。
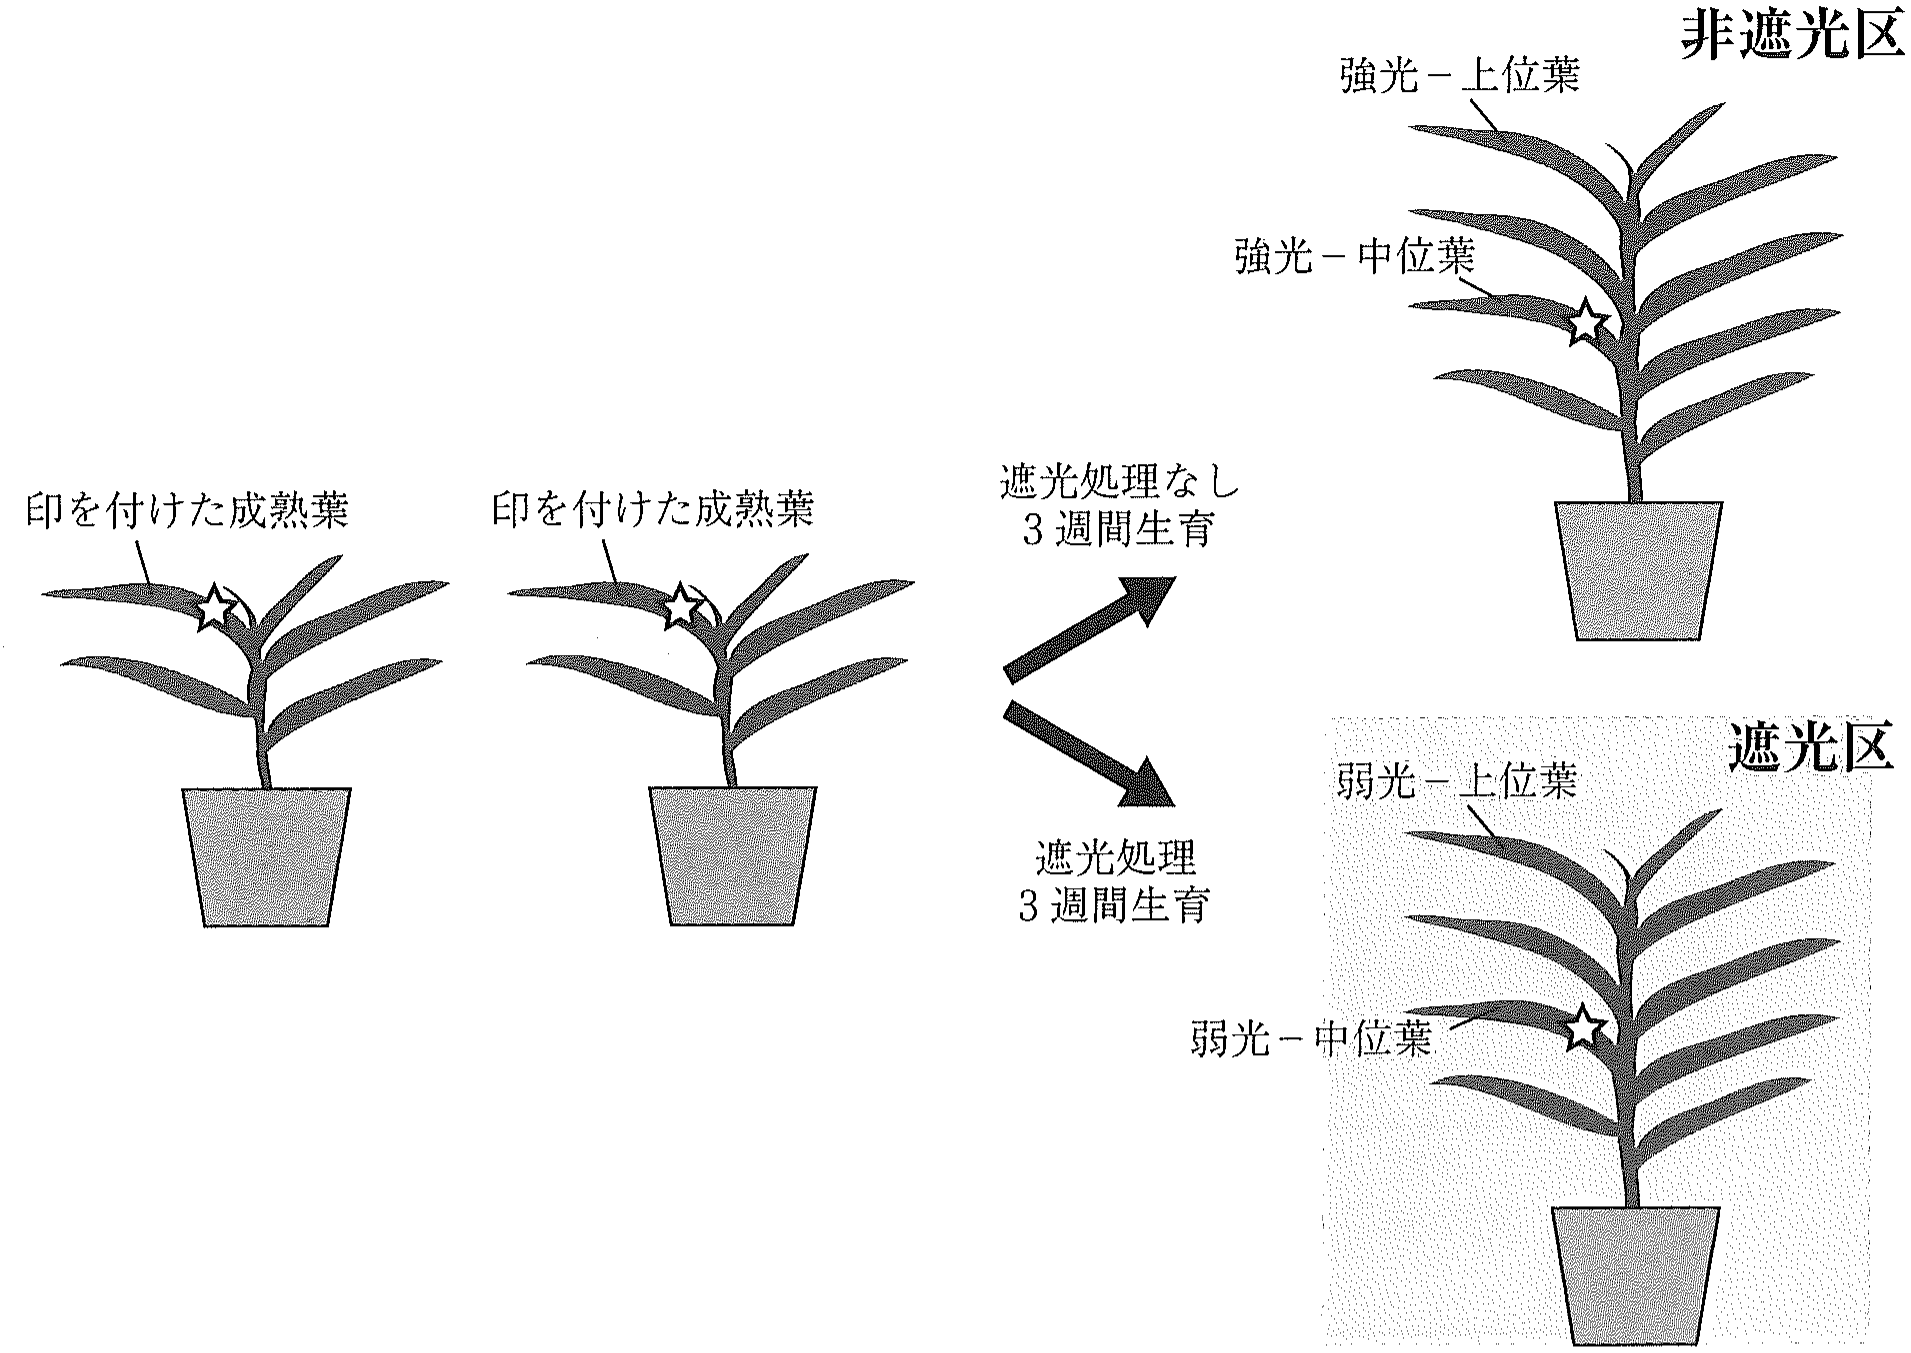
図 1 鉢植えトウモロコシの模擬生育実験
これら 4 種類の葉について,葉に当てる光の強さを段階的に変えて葉の二酸化炭素()吸収速度を測定し,光の強さと 吸収速度のグラフを作成した(図 2)。なお,光の強さは単位面積に 1 秒間に当たる光子数として表しており,この単位は光合成研究でよく用いられる。
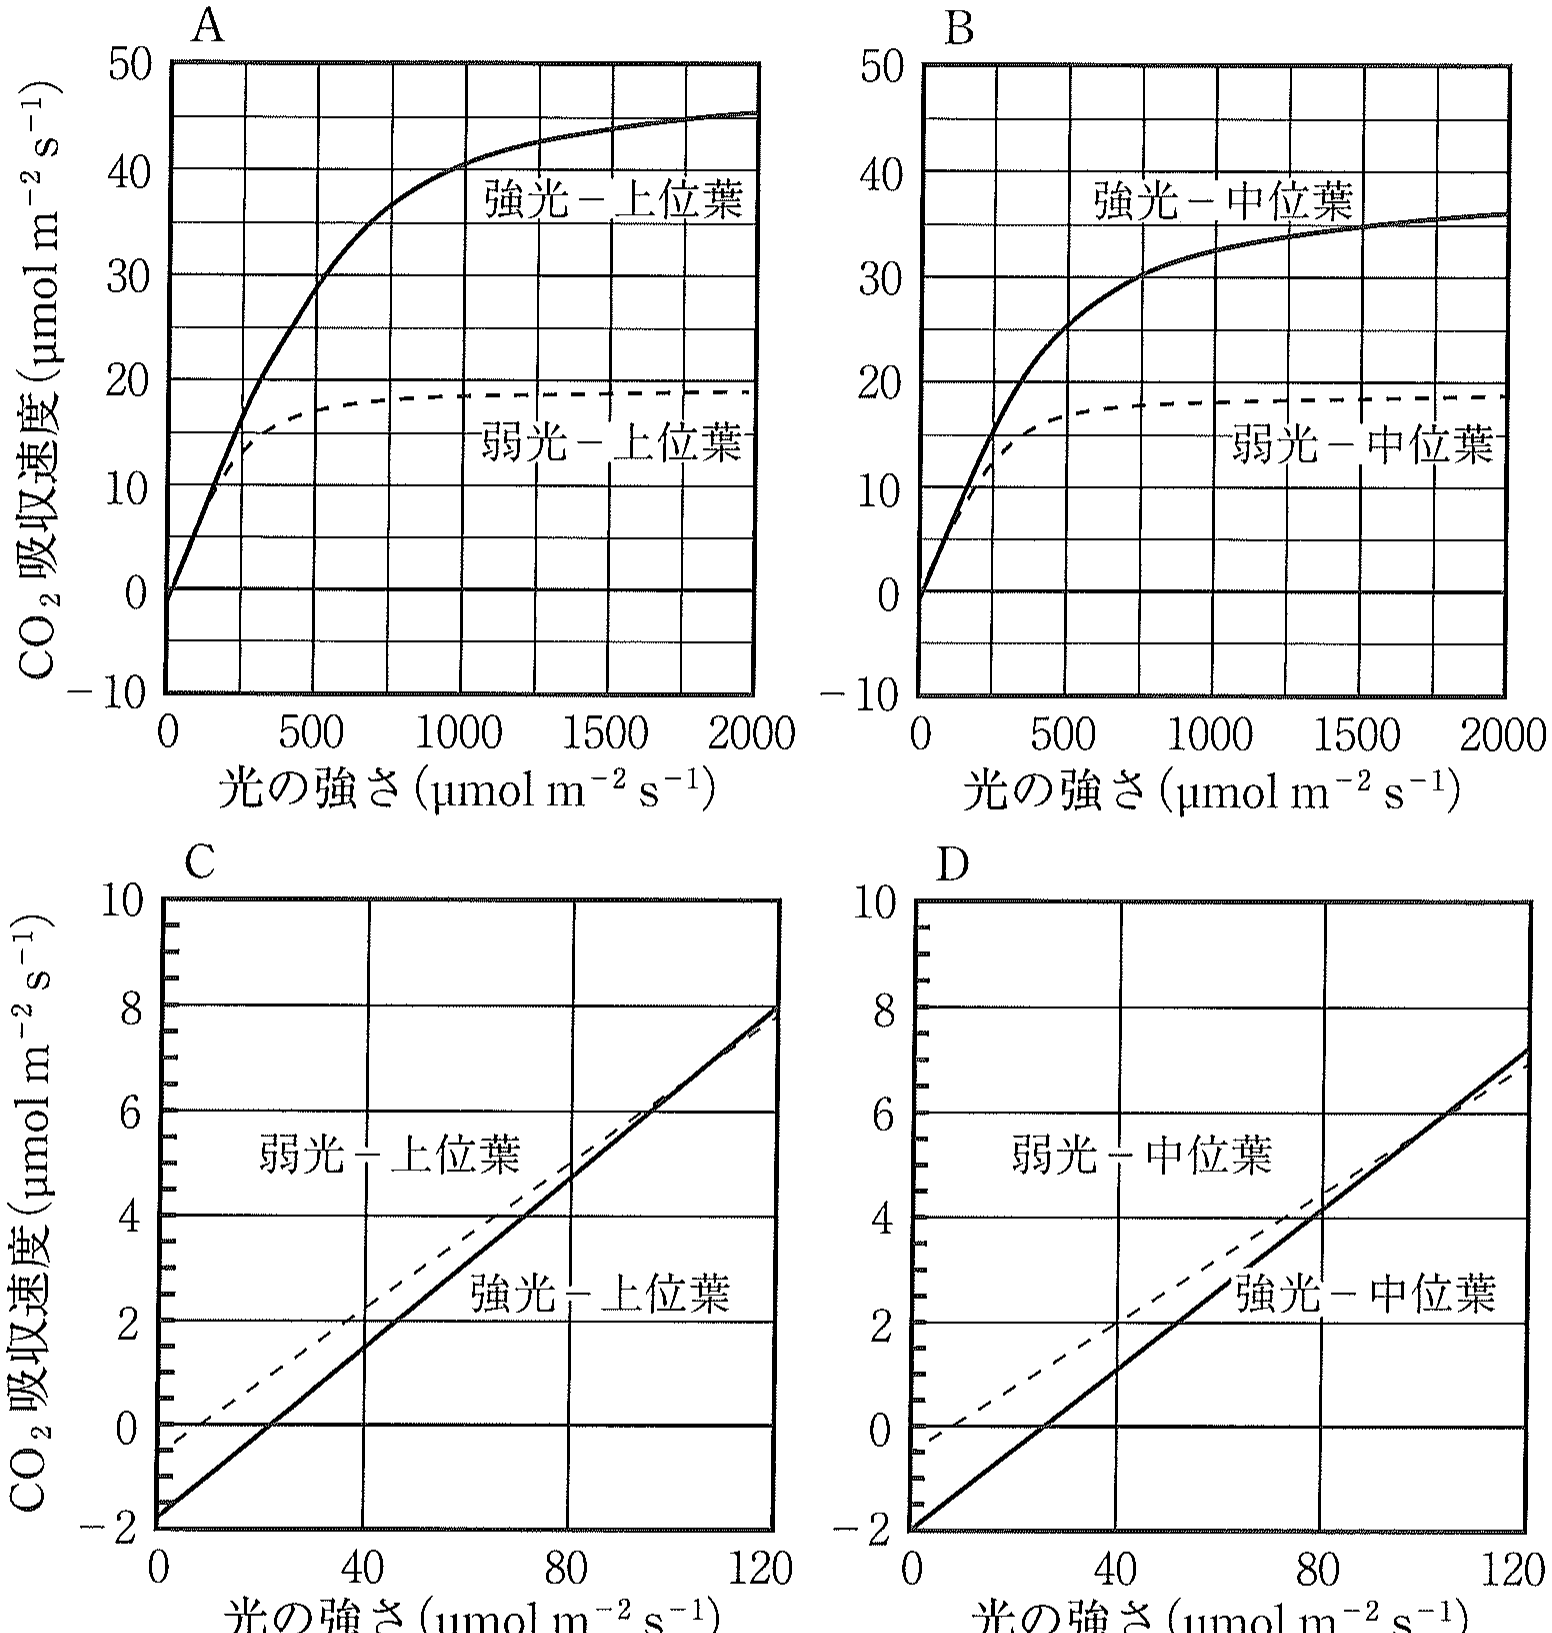
図 2 各葉における光の強さに応じた 吸収速度の変化 グラフ C,D は,それぞれグラフ A,B の弱光領域を拡大したものである。
設問(1):図 2A,C において,強光-上位葉と弱光-上位葉のグラフには強光生育植物および弱光生育植物でみられる典型的な特徴がそれぞれ現れている。その特徴を表す指標を 4 つあげ,それぞれが弱光-上位葉において強光-上位葉よりも高いか低いかを答えよ。
設問(2):図 2C,D において,群落内部生育個体の中位・下位葉を反映する弱光-中位葉と,上位葉を反映する強光-上位葉を比べると,光の強さ 100 μmol m⁻² s⁻¹ 以下での光合成能力は弱光-中位葉の方が高くなっている。以下の文中の空欄 (ア) 〜 (カ) にあてはまる語句や数値を答えよ。
葉緑体による (ア) 速度と,ミトコンドリアによる (イ) 速度の差として測定される葉の (ウ) 速度は,弱光-中位葉の方が強光-上位葉に比べて (エ) 光強度でプラスの値となる。したがって,弱光下では弱光-中位葉の方が強光-上位葉よりも炭素同化の程度が高いといえる。弱光-中位葉のミトコンドリアによる (イ) 速度は (オ) μmol m⁻² s⁻¹ である。また,弱光-中位葉に強さが 40 μmol m⁻² s⁻¹ の光が当たっている時の葉緑体による (ア) 速度は (カ) μmol m⁻² s⁻¹ である。
文 2
前述の遮光または非遮光条件で 3 週間生育した 4 種類の葉(図 1)の横断切片を作製して光学顕微鏡で観察し(図 3),形態特性を調べた(表 1)。C₄ 植物であるトウモロコシの葉では,維管束の周りを維管束鞘細胞と呼ばれる細胞群が取り囲み,さらに外側を葉肉細胞が密接に取り囲む同心円の構造が並んでいる。その葉肉細胞と維管束鞘細胞には,多くの葉緑体が含まれる。 は葉肉細胞で固定されて C₄ 化合物となり,維管束鞘細胞に移動して脱炭酸反応を受け, が生成する。そのため維管束鞘細胞内に が濃縮され,維管束鞘細胞に含まれるルビスコでの炭素同化が促進される。
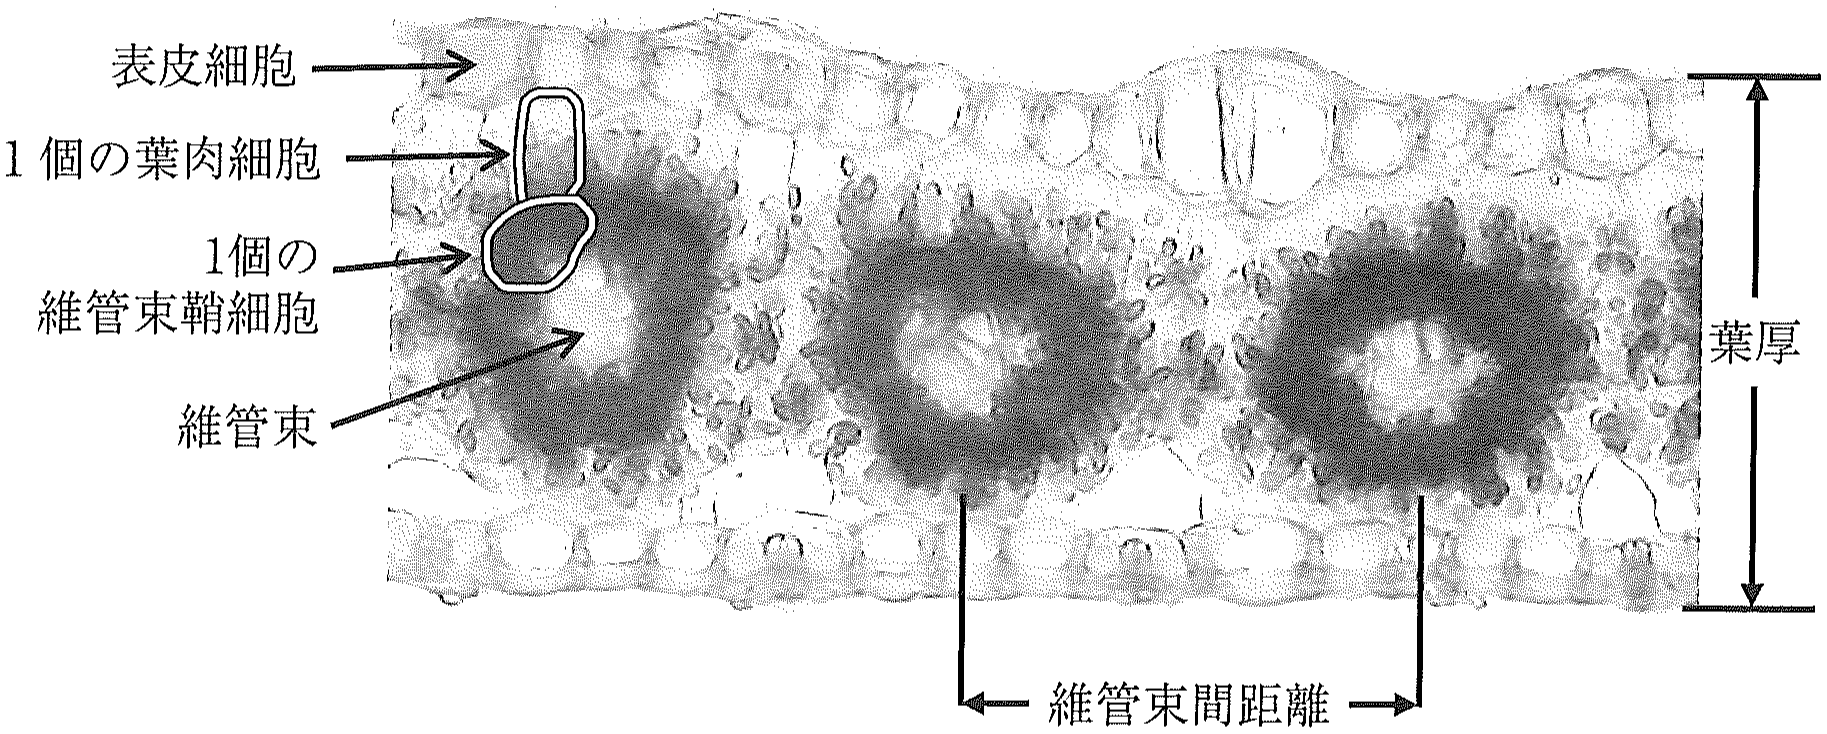
図 3 トウモロコシ葉の横断切片の光学顕微鏡像
表 1 葉の形態特性の比較
| 強光-上位葉 | 弱光-上位葉 | (弱光-上位葉)/(強光-上位葉) | 強光-中位葉 | 弱光-中位葉 | (弱光-中位葉)/(強光-中位葉) | |
| 葉の厚さ(μm) | 140 | 100 | 0.71 | 160 | 150 | 0.94 |
| 維管束間距離(μm) | 100 | 60 | 0.60 | 110 | 105 | 0.95 |
| 1 個の葉肉細胞の面積(μm²) | 360 | 240 | 0.67 | 510 | 450 | 0.88 |
| 1 個の維管束鞘細胞の面積(μm²) | 410 | 200 | 0.49 | 500 | 460 | 0.92 |
設問(3):C₄ 植物は,C₄ 光合成回路をもたない C₃ 植物に比べて,乾燥条件下での光合成活性の低下が小さい。その理由を「」と「蒸散」の用語を用いて解答欄の枠内で説明せよ。
設問(4):表 1 の結果では,強光-中位葉と弱光-中位葉の形態の差異は,強光-上位葉と弱光-上位葉間に比べると顕著でなかった。この理由を考察し,解答欄の枠内で述べよ。
文 3
4 種類の葉(図 1)について,葉面積あたりの窒素含量,クロロフィル含量,ルビスコ活性を測定した(表 2)。植物にとって窒素は重要な栄養素であり,タンパク質,核酸,クロロフィルなどの構成成分となっている。表 2 に示した“窒素含量”は,葉内の含窒素化合物に含まれる窒素を定量することで求めた。ルビスコは酵素反応速度が極めて遅く分子サイズが大きいため,光合成能力を高めるには多くの窒素をルビスコの合成に投資せねばならない。表 2 中の“ルビスコ活性”は,単位葉面積あたりの 付加反応速度を示している。これら 3 つの生化学特性は葉が受ける光の強さに影響され,上位葉,中位葉に関わらず強光の方が数値が大きかった。
表 2 葉の生化学特性の比較
| 強光-上位葉 | 弱光-上位葉 | (弱光-上位葉)/(強光-上位葉)比 | 強光-中位葉 | 弱光-中位葉 | (弱光-中位葉)/(強光-中位葉)比 | |
| 窒素含量(mmol m⁻²) | 100 | 50 | 0.50 | 65 | 40 | 0.62 |
| クロロフィル含量(mg m⁻²) | 400 | 240 | 0.60 | 410 | 240 | 0.59 |
| ルビスコ活性(μmol m⁻² s⁻¹) | 30 | 9 | 0.30 | 18 | 8 | 0.44 |
設問(5):以下の生体分子(a)〜(d)の葉緑体内での主な存在場所を以下の選択肢①〜⑤から 1 つ選び,番号で答えよ。なお,同じ選択肢を複数回選んでもよい。
(a) クロロフィル (b) ルビスコ (c) 光化学系 (d) 糖
選択肢 ① 外膜(外包膜) ② 内膜(内包膜) ③ ストロマ ④ チラコイド膜 ⑤ チラコイド内腔
設問(6):(A) 窒素同化・分配(窒素含量),(B) 光捕集(クロロフィル含量),(C) 炭素同化(ルビスコ活性),および(D) ミトコンドリア呼吸の生理機能の中で,群落内部生育個体の上位葉と中位・下位葉間において最も差異が小さい生理機能は A〜D のうちどれか,図 2 および表 2 の結果より判断して記号で答えよ。
また,その生理機能を示す数値を葉面積あたりから葉窒素量あたりに変換して比較すると,中位・下位葉の方が上位葉よりも大きくなった。この理由を考察し,解答欄の枠内で述べよ。
設問(7):トウモロコシは,上位から下位にわたって細長い大型の葉を付ける。畑で栽培しているトウモロコシ群落について,地上から一定間隔ごとの層に分け,群落内の各層に届く光の強さを調べた(図 4A)。その結果,中層・下層の葉に届く光が少ないことが確認できた。そこで,このトウモロコシ系統に比べて,上位の葉がより小ぶりで,かつ,地面に対してより垂直に展開するように改良した形質をもつトウモロコシ新系統(図 5)を栽培した場合,群落内でどのような光の強さの分布図が得られるか,図 4 の B〜G の中から適当と考えられるものを一つ選べ。
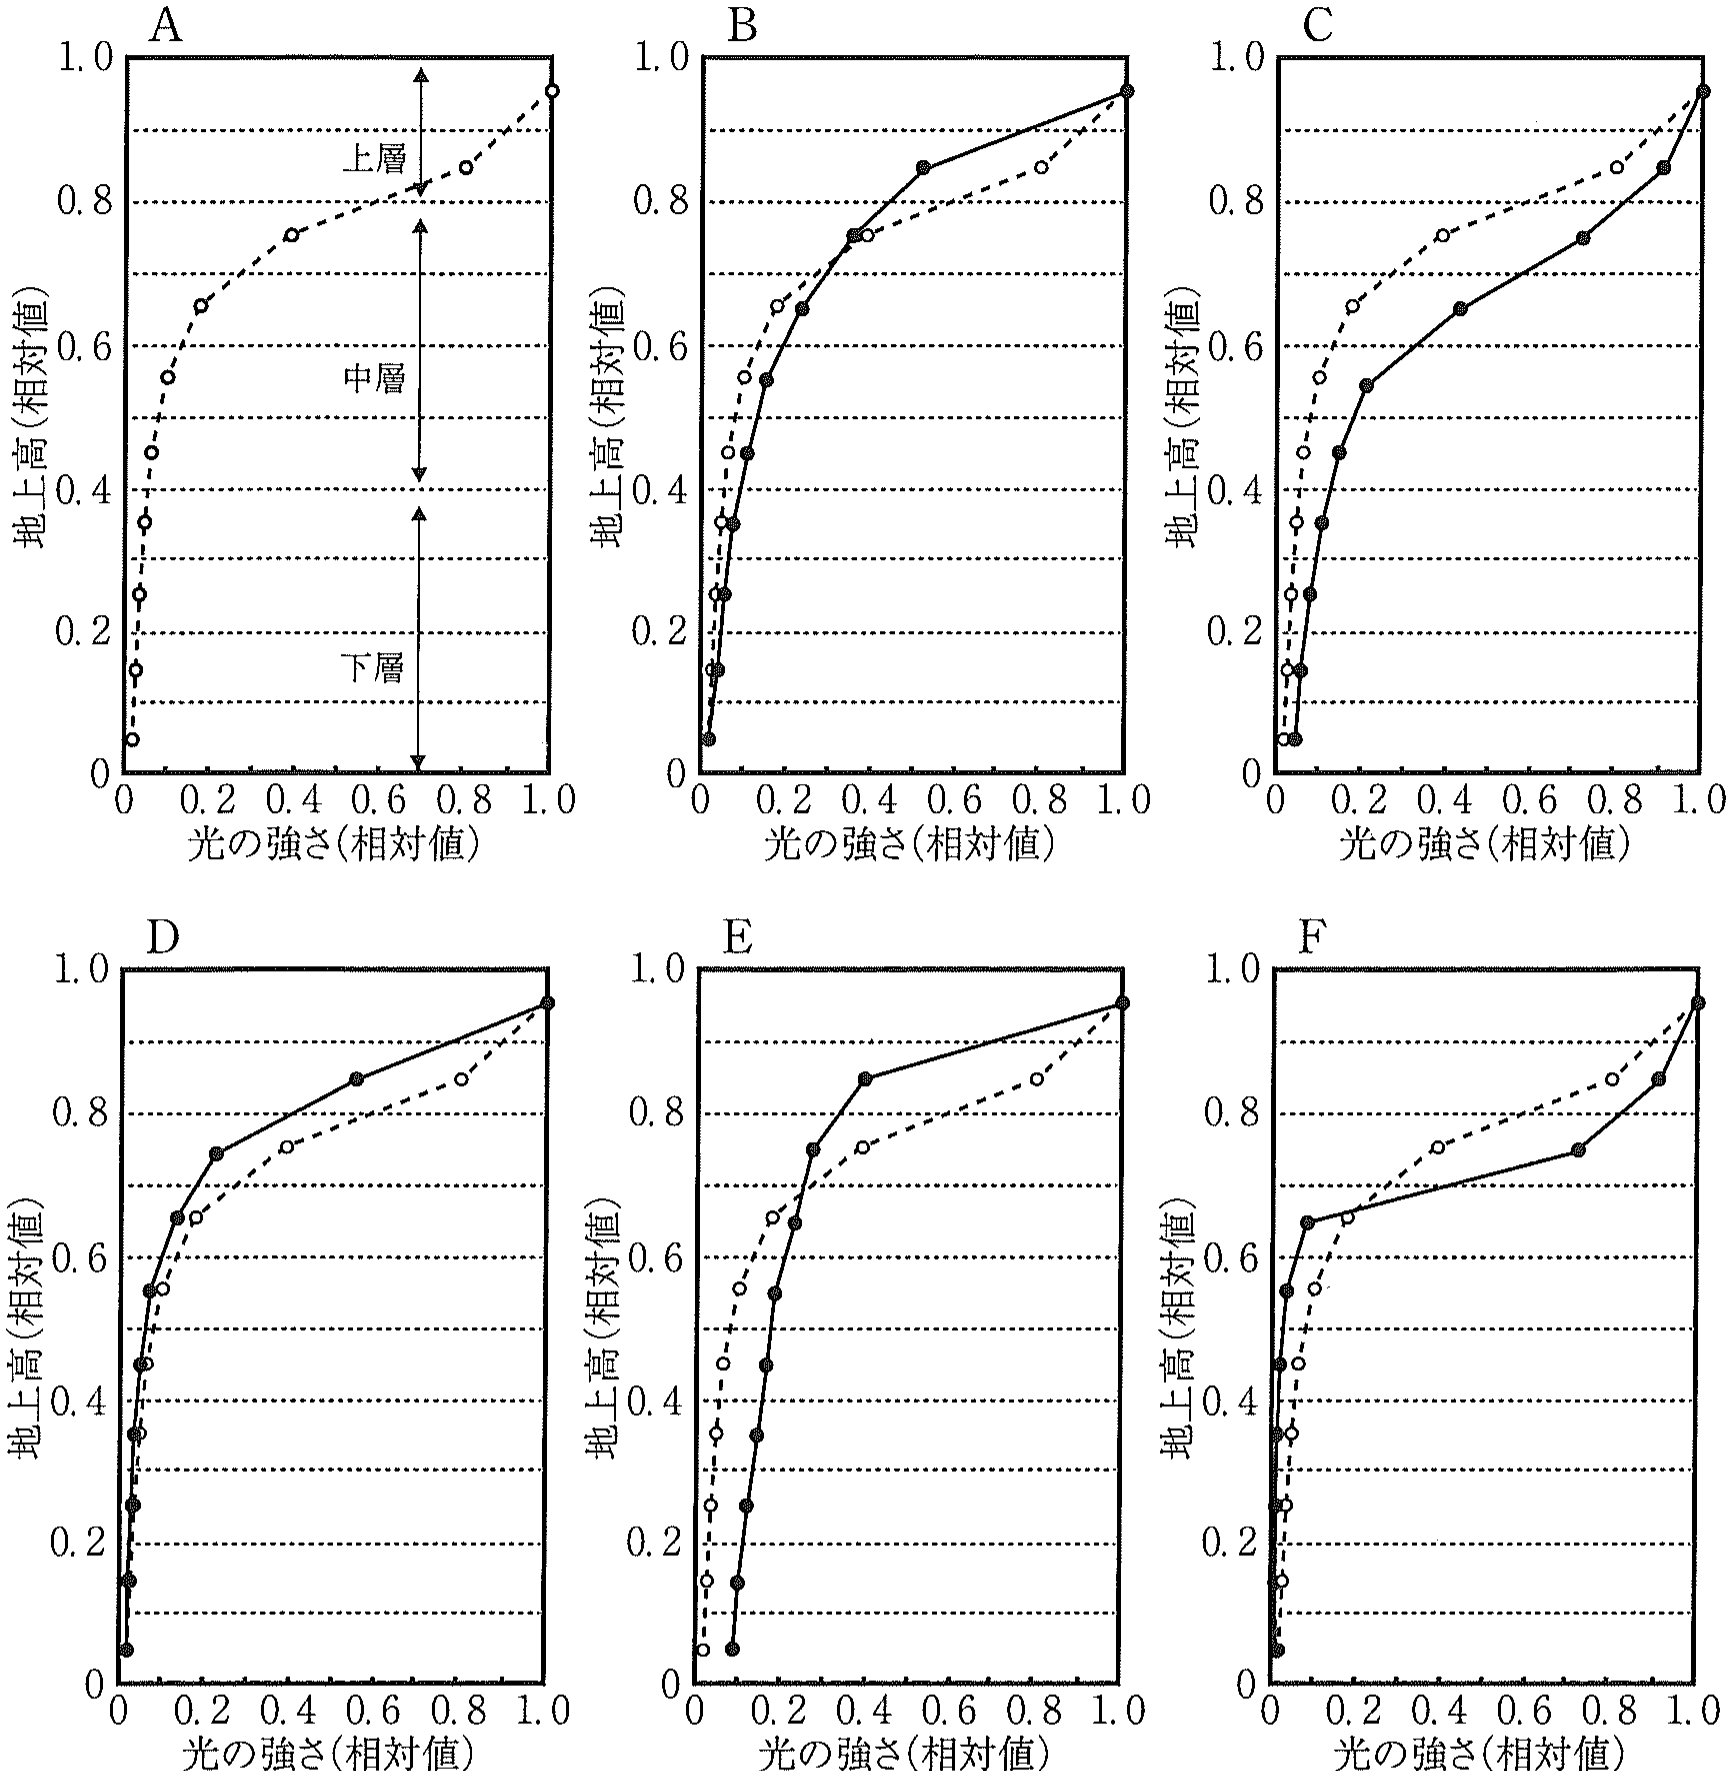
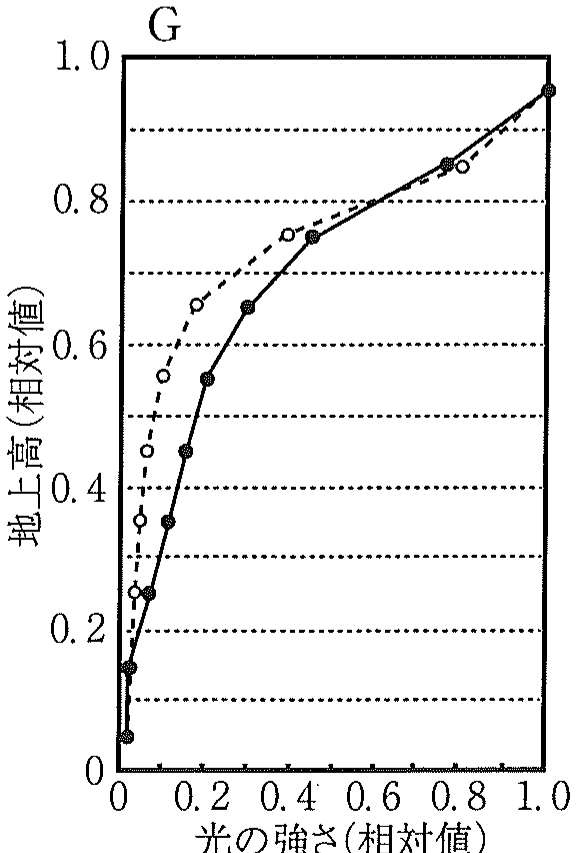
図 4 トウモロコシ群落内に届く光の強さの層別分布 最上層での光の強さを 1 として,光の強さを相対値で示した。各図中の点線は現系統個体群落内の光の強さの分布,実線は新系統群落内の光の強さの分布を示す。
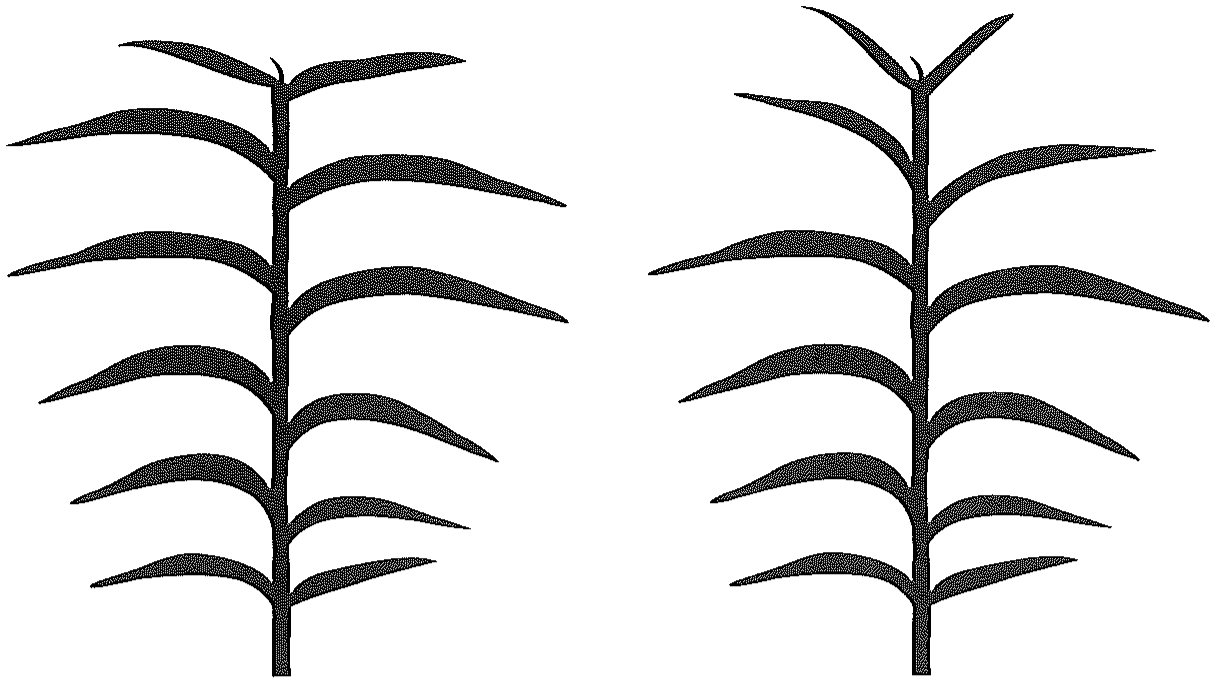
図 5 トウモロコシの現系統(左)と新系統(右)の模式図
設問(8):この新系統の群落内部生育個体の中層・下層葉の特性について述べた以下の文中の空欄 (キ) 〜 (ス) にあてはまる最も適当な語句を以下の選択肢①〜③より一つずつ選び,番号で答えよ。
選択肢 ① 増加する ② 減少する ③ 変わらない
新系統の個体群落内部では,中層・下層の葉が受ける光の総量は現系統と比べて (キ) と予想される。新系統の中層・下層葉を現系統の中層・下層葉と比べると,(1)葉の形態特性の差は (ク),(2)葉面積あたりの窒素含量は (ケ),(3)ルビスコへの窒素配分は (コ) と考えられる。したがって,新系統の中層・下層葉の弱光順応の程度は (サ) とともに炭素同化速度は (シ) ことで,十分な日照が得られる畑地では個体全体の光合成量が (ス) と考えられる。このように,葉や個体の形態を変えることにより,作物の生産性の改良が期待できる。