生 物 (4 問題 100 点)
生物問題 Ⅰ
次の文章(A),(B)を読み,問 1 〜問 6 に答えよ。解答はすべて所定の解答欄に記入せよ。
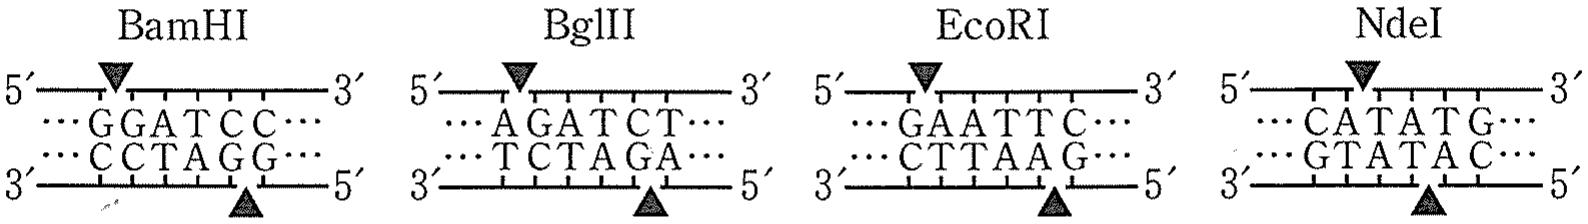
(A) 特定の塩基配列を認識して二本鎖 DNA を切断する酵素を制限酵素といい,DNA 断片の末端同士を共有結合で連結する酵素を DNA リガーゼという。図 1 に 4 種類の制限酵素によって認識・切断される DNA の塩基配列を示す。
プラスミドとは大腸菌などに由来する小型の環状 DNA であり,大腸菌から回収したプラスミドに任意の DNA 断片を組み込み,再び大腸菌に導入できる。図 2 にプラスミド A,B の概略図を示す。プラスミド A,B を大腸菌に導入すると,抗菌剤 X 耐性タンパク質が恒常的に発現し,大腸菌は抗菌剤 X を含む培地で生育可能となる。ここで,それぞれの制限酵素は,図 2 に示した切断位置だけを切断するものとする。
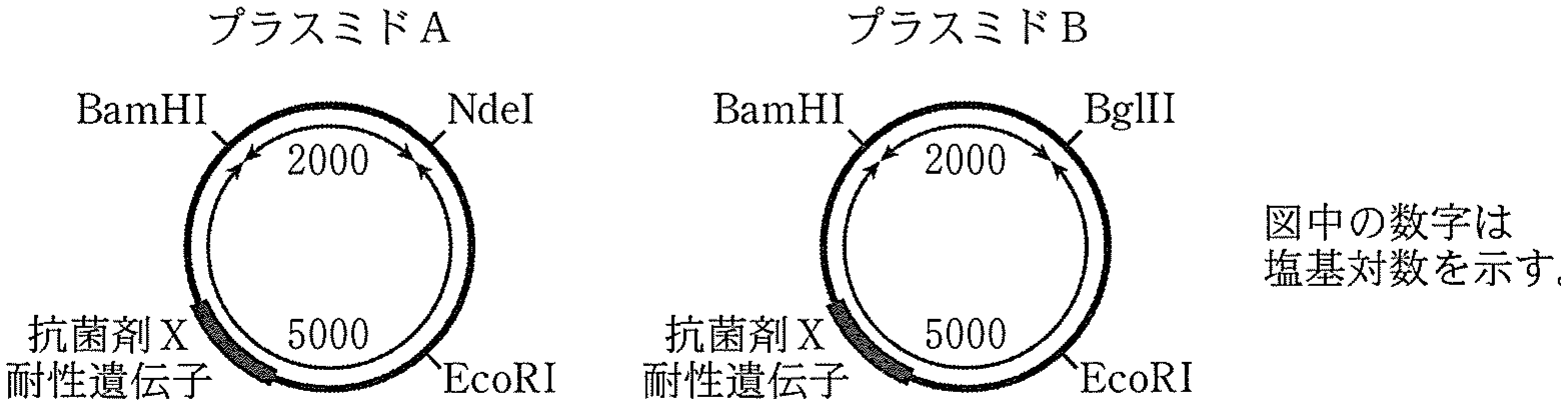
問 1 〜問 3 で行う実験では,プラスミドを制限酵素や DNA リガーゼで処理して得られた DNA に対して,下記の操作Ⅰおよび操作Ⅱを行った。
操作Ⅰ :得られた DNA を大腸菌に導入して,抗菌剤 X を含む寒天培地上で培養すると多数のコロニーが形成された。すべてのコロニーを,抗菌剤 X を含む液体培地を入れた 1 つのフラスコに移して培養したのち,大腸菌からプラスミドを回収した。
操作Ⅱ :得られたプラスミドを EcoRI で切断して電気泳動した。
操作Ⅱにおける電気泳動の結果を図 3 に示す。ただし,図 3 に示したバンド以外の DNA 断片は生じなかったものとする。また,問 1 〜問 3 において制限酵素の切断効率は 100 % であり,かつ,DNA リガーゼを用いた処理によって,切断末端同士が相補的なすべての組み合わせで,DNA 断片が連結されるものとする。さらに,大腸菌内で環状 DNA の塩基配列は変異しないものとし,DNA リガーゼで連結されないまま大腸菌に導入された DNA 断片は大腸菌内で分解されるものとする。
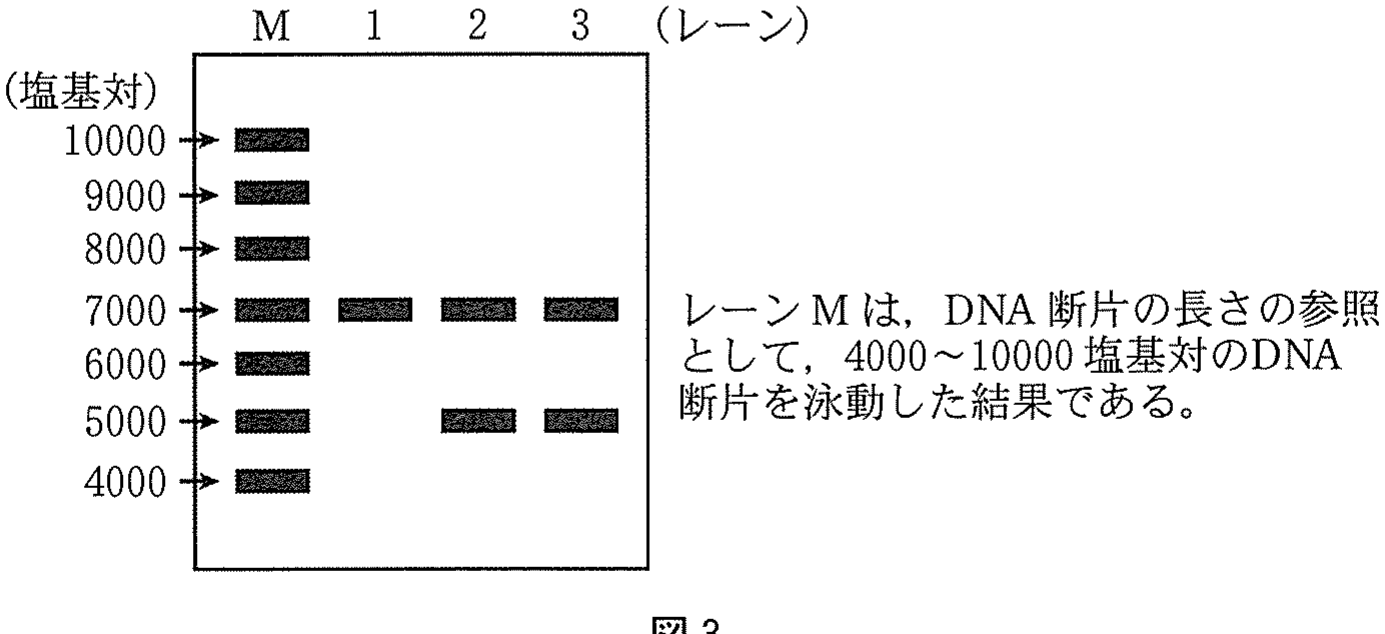
問 1 プラスミド A を BamHI と NdeI で切断し,得られた DNA 断片を DNA リガーゼで処理した。連結された DNA に対して操作ⅠおよびⅡを行ったところ,図 3 のレーン 1 の結果が得られた。操作Ⅰを終えた時点で大腸菌から回収されたプラスミドは最大何種類かを解答欄に記せ。
問 2 プラスミド B を BamHI と BglII で切断し,得られた DNA 断片を DNA リガーゼで処理した。連結された DNA に対して操作ⅠおよびⅡを行ったところ,図 3 のレーン 2 の結果が得られた。操作Ⅰを終えた時点で大腸菌から回収されたプラスミドは最大何種類かを解答欄に記せ。
問 3 プラスミド B を BamHI と BglII で切断し,得られた DNA 断片を DNA リガーゼで処理した。連結された DNA に対して操作Ⅰを行い,得られたプラスミドを再度 BamHI と BglII で処理してから,DNA リガーゼで処理せずに操作ⅠおよびⅡを行ったところ,図 3 のレーン 3 の結果が得られた。2 回目の操作Ⅰを終えた時点で大腸菌から回収されたプラスミドは最大何種類かを解答欄①に記せ。また,図 3 のレーン 3 において 7000 塩基対の長さのバンドに含まれる DNA 断片と,図 2 のプラスミド B を EcoRI で切断して得られる DNA 断片の差異について,解答欄②の枠の範囲内で説明せよ。
(B) サイトカインは,標的細胞の細胞膜にある受容体に結合することで,細胞内のタンパク質を活性化し,遺伝子の発現などを調節する。その際,細胞内では,タンパク質をリン酸化する酵素が他のタンパク質リン酸化酵素をリン酸化する反応の連鎖などにより,情報が伝達される。
受容体 X と Y はいずれも酵素型受容体であり,細胞内に存在する部分はタンパク質リン酸化酵素としてはたらく。サイトカイン A 非存在下では,受容体 X と Y は複合体を形成しないが,サイトカイン A が受容体 X に結合すると,受容体 X と Y は 1 時間以内に複合体を形成する。そしてその情報が,調節タンパク質 S に伝達される。
受容体 X と Y のそれぞれについて,野生型あるいはタンパク質リン酸化酵素活性を失った変異型を発現するプラスミドを準備した。これらのプラスミドを,受容体 X と Y の遺伝子をいずれも欠失した培養細胞 M1,あるいは受容体 X と Y および調節タンパク質 S の遺伝子をいずれも欠失した培養細胞 M2 に導入し,以下の 2 つの実験を行った。
実験 1 :図 4 の下部に示す処理 1 〜 20 の組み合わせでプラスミドを導入した培養細胞 M1 と M2 をサイトカイン A で 1 時間処理したのち,受容体 X と Y を回収し,タンパク質の電気泳動を行った。そして,リン酸化されたタンパク質をバンドとして検出する方法によって,受容体 X と Y のリン酸化状態を調べた。また同様の方法で,調節タンパク質 S のリン酸化状態も調べた。それらの結果を図 4 に示す。
実験 2 :図 4 の処理 1 〜 20 と同じ組み合わせでプラスミドを導入した培養細胞 M1 と M2 をサイトカイン A で 12 時間処理したのち,遺伝子 Z の mRNA 量を測定した。その結果を図 5 に示す。
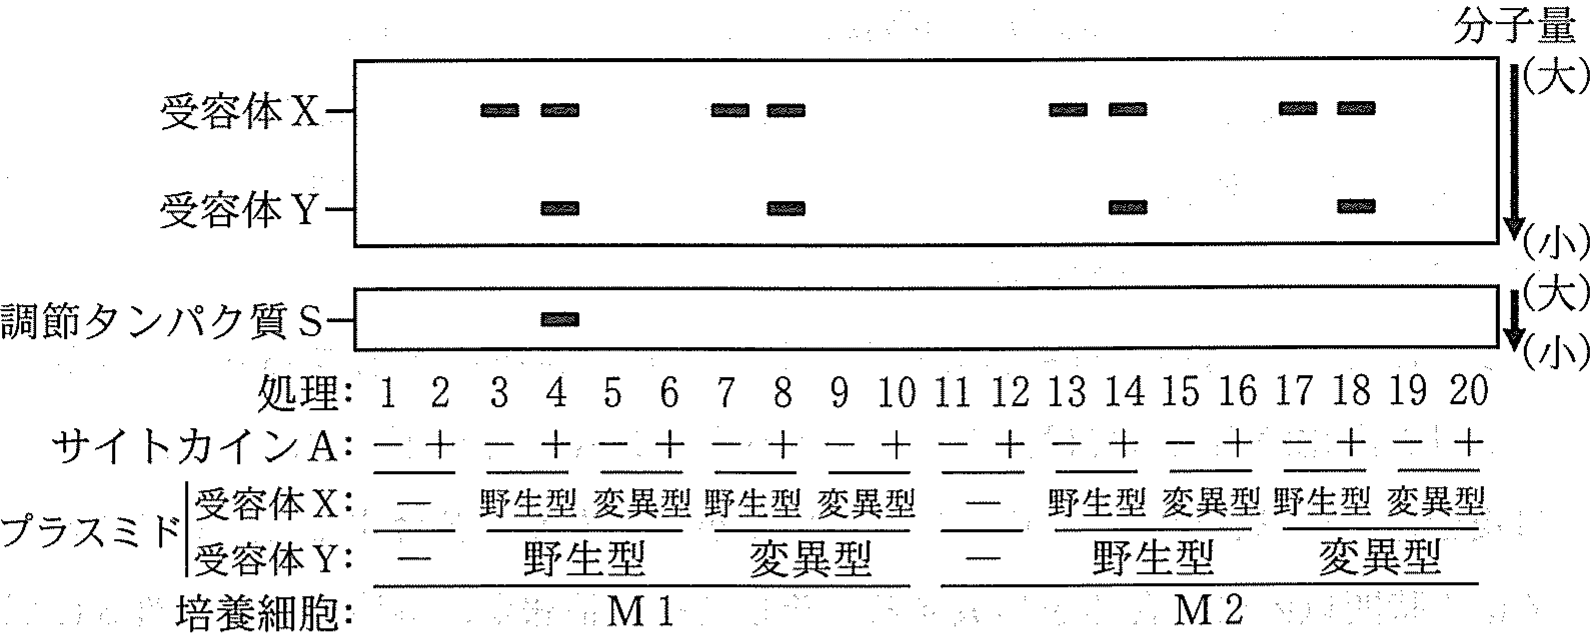
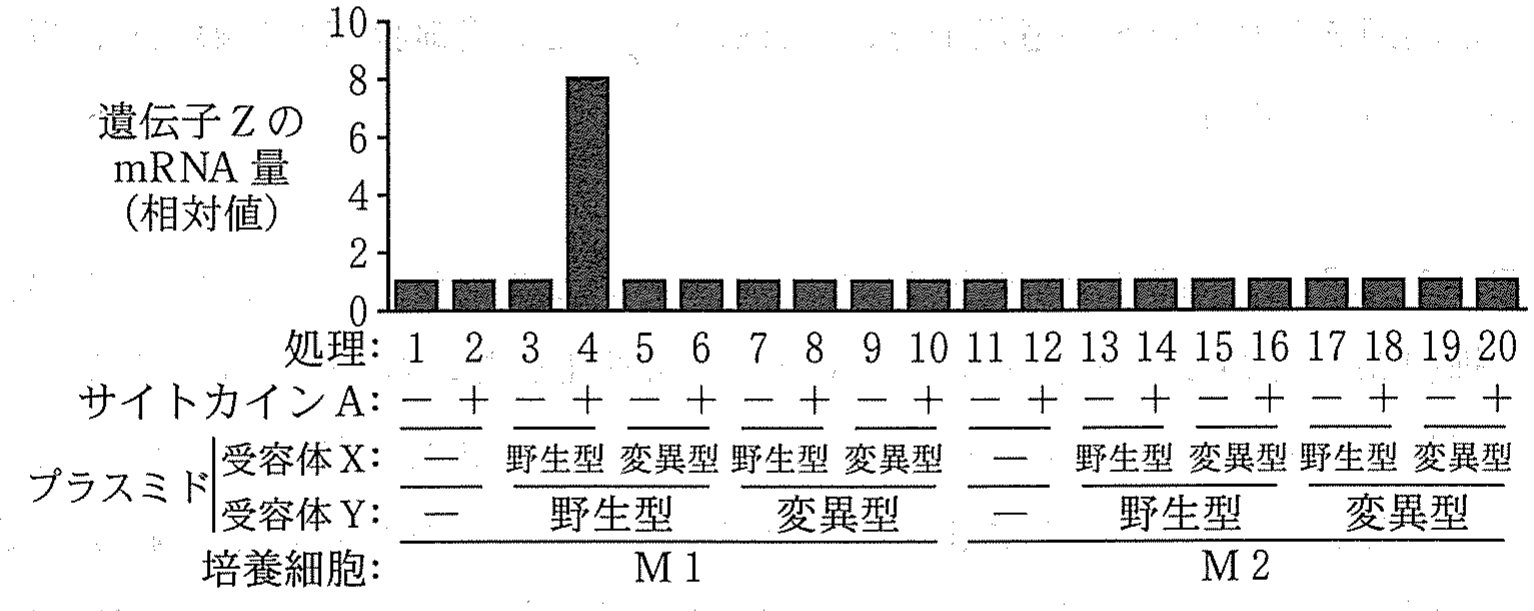
問 4 野生型の受容体 X と Y の性質に関する説明として適切なものを(あ)〜(え)からすべて選び,記号を記せ。
(あ) 受容体 X は,サイトカイン A 非存在下で恒常的にリン酸化されている。
(い) 受容体 Y は,サイトカイン A 非存在下で恒常的にリン酸化されている。
(う) 受容体 X のリン酸化は,自身が有するタンパク質リン酸化酵素活性に依存している。
(え) 受容体 Y のリン酸化は,自身が有するタンパク質リン酸化酵素活性に依存している。
問 5 図 6 は,図 5 の処理 4 において,サイトカイン A 処理により遺伝子 Z の mRNA 量が増加する過程を示している。ア 〜 ウ に当てはまる文章として最も適切なものを(あ)〜(か)から 1 つずつ選び,記号を記せ。
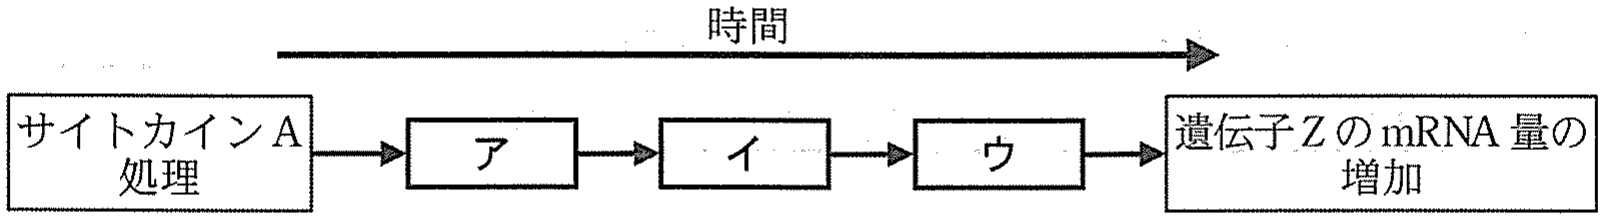
(あ) 調節タンパク質 S のリン酸化が促進される。
(い) 調節タンパク質 S のリン酸化が抑制される。
(う) 受容体 X のタンパク質リン酸化酵素活性が上昇する。
(え) 受容体 Y のタンパク質リン酸化酵素活性が上昇する。
(お) 受容体 X のリン酸化酵素活性に依存して,受容体 Y がリン酸化される。
(か) 受容体 Y のリン酸化酵素活性に依存して,受容体 X がリン酸化される。
問 6 遺伝子 Z の mRNA から翻訳されて生じるタンパク質 Z は,受容体 Y に結合し,受容体 Y の分解を誘導する。遺伝子 Z がサイトカイン A の情報伝達において果たす役割として考えられることを,解答欄の枠の範囲内で説明せよ。
生物問題 Ⅱ
次の文章(A),(B)を読み,問 1 〜問 7 に答えよ。解答はすべて所定の解答欄に記入せよ。
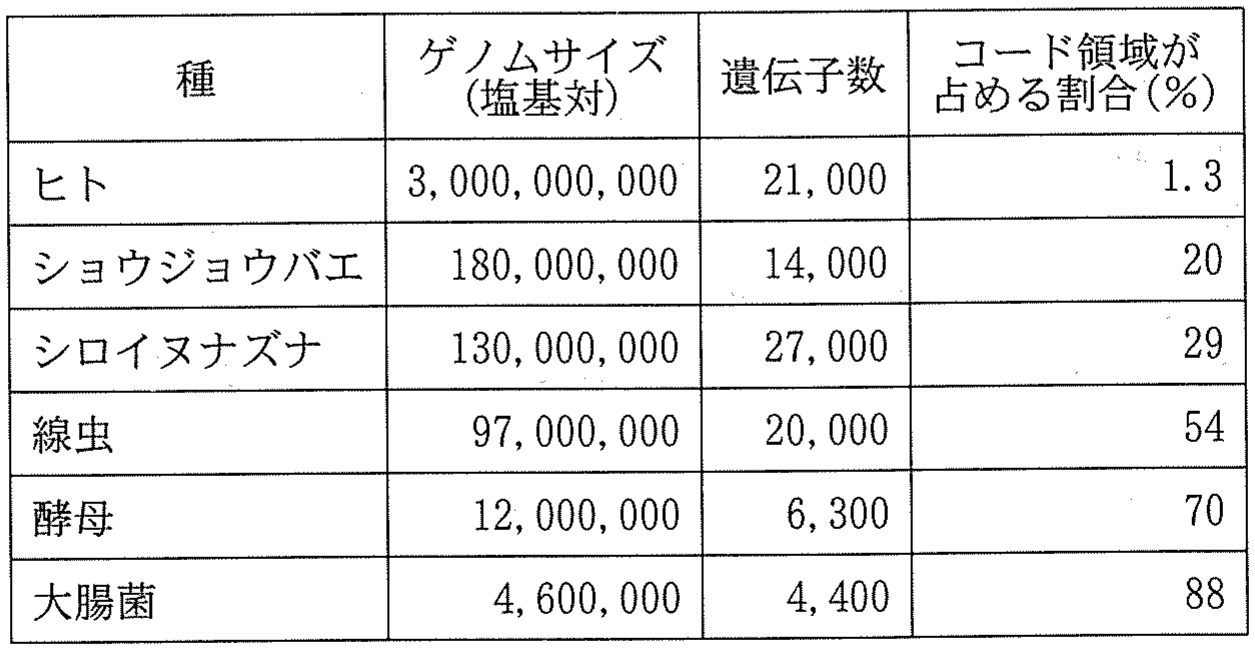
(A) ヒトゲノムには,転写・翻訳を経てタンパク質のアミノ酸配列情報に変換される領域(コード領域)と,アミノ酸配列に変換されない領域(非コード領域)が存在する。非コード領域には①RNA ポリメラーゼによって転写されるが,翻訳されない領域も存在する。様々な生物種におけるおおよそのゲノムサイズ,遺伝子数,ゲノムにおけるコード領域の割合を表 1 に示す。
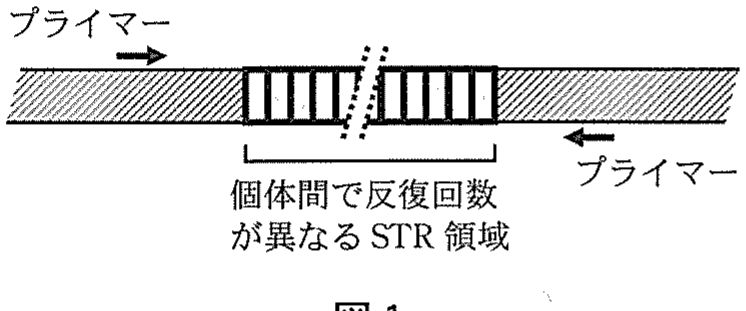
非コード領域には,様々な種類の「反復配列」が存在する。ショートタンデムリピート(STR)は,数塩基対の短い配列が 5 〜 100 回程度繰り返された反復配列である。STR の変異率は他の領域に比べて高く,同種の個体間でも反復回数などに違いがみられるため,②血縁関係の解析などに利用されている。STR は,おもに非コード領域に存在するが,まれにコード領域内に存在することもあり,③反復回数の違いがタンパク質の構造・機能に影響を及ぼすケースも存在する。
問 1 下線部①の領域から転写される RNA の代表として rRNA と tRNA が挙げられる。① rRNA,および② tRNA に関する記述として正しいものを(あ)〜(お)からすべて選び,記号を所定の解答欄に記せ。
(あ) リボソームタンパク質のアミノ酸配列を指定する。
(い) 内部のアンチコドンを介して mRNA と塩基対合する。
(う) 原核生物には存在しない。
(え) 翻訳の過程でアミノ酸を運ぶ役割を果たす。
(お) タンパク質とともにリボソームを構成する。
問 2 表 1 に関する記述として正しいものを(あ)〜(お)からすべて選び,記号を記せ。
(あ) 動物は植物よりも遺伝子数が多い。
(い) 真核生物は原核生物よりも遺伝子数が多い。
(う) 線虫の全タンパク質の平均アミノ酸数は,ヒトよりも大きい。
(え) 遺伝子数の増加に比例してゲノムサイズは増大している。
(お) 遺伝子数の増加とともに,非コード領域の割合は減少している。
この問題は,次のページに続いている。
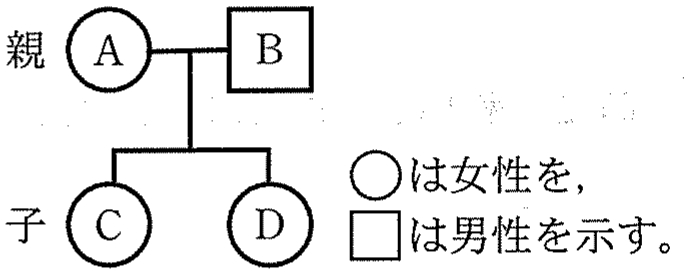
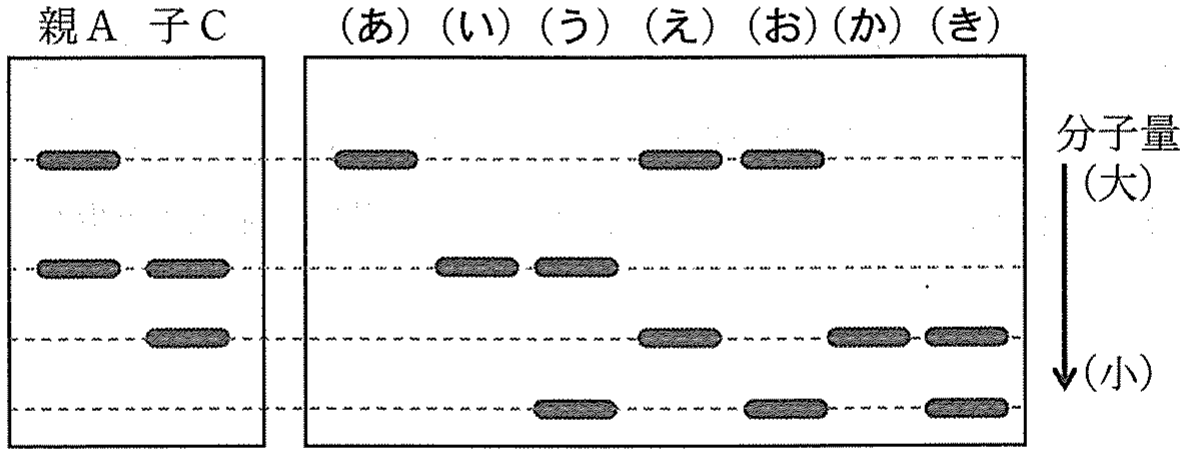
問 3 下線部②に関して,STR における反復回数の多型解析には,PCR 法が用いられる。解析する特定の STR の外側にプライマーを設計し,増幅された DNA を電気泳動で解析することで,反復回数の違いを検出することができる(図 1 )。図 2 に示す関係にある個体 A 〜 D のゲノムを対象に,常染色体上に存在する標的 STR の多型解析を行った。親 A と子 C から得られた PCR 産物の電気泳動の結果が図 3 の通りであったとすると,子 D の結果としてあり得ないものを(あ)〜(き)からすべて選び,記号を記せ。ただし,これらの世代間では反復回数は変化しないものとする。
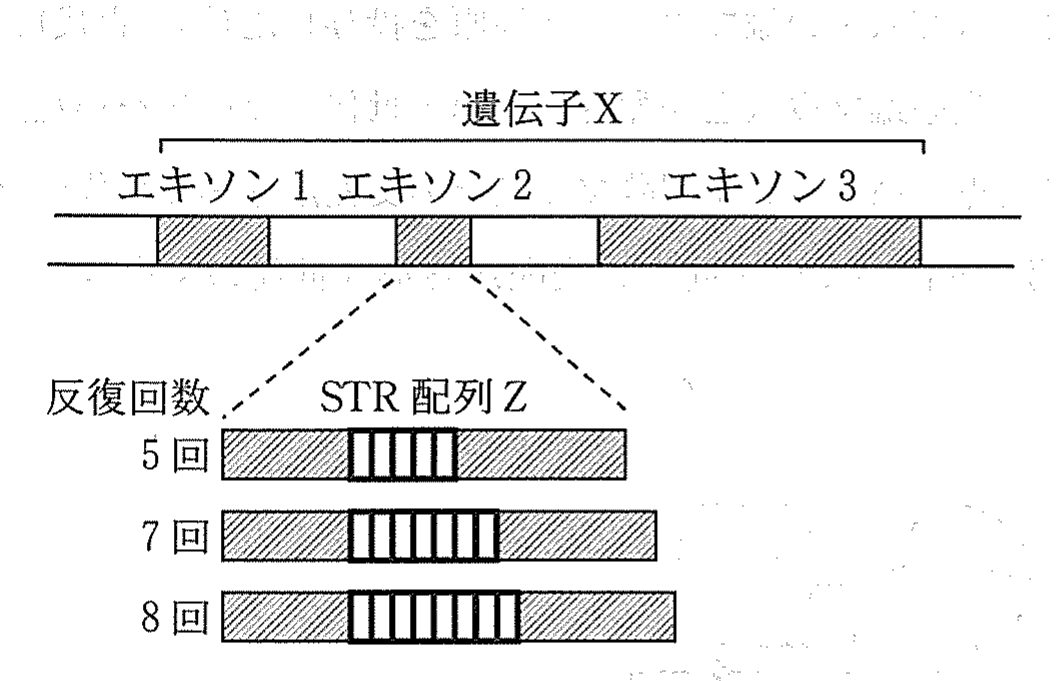
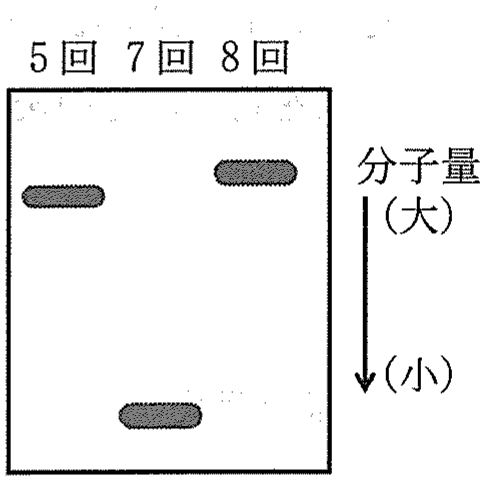
問 4 下線部③に関して,STR 配列 Z は,遺伝子 X のコード領域内に存在し,ある個体群では,5,7,8 回の反復回数の多型が見られた(図 4 )。それぞれのホモ接合体から採取した細胞のタンパク質を,電気泳動を用いて分子量により分離し,遺伝子 X の産物であるタンパク質 X に対する特異的抗体(エキソン 1 から翻訳されるタンパク質領域を認識)で検出した(図 5 )。このとき,Z の繰り返し単位として最も考えにくい塩基配列を(あ)〜(お)から 1 つ選び,記号を記せ。ただし,STR 配列 Z は反復回数のみで多型がみられ,その他の塩基挿入や塩基置換などはないものとする。
(あ) GGCC
(い) GGCCA
(う) GGCCAA
(え) GGCCAAC
(お) GGCCAACA
(B) モデル動物の近交系は,近親交配を繰り返すことでゲノム中のほぼすべての遺伝子座がホモ接合体となった系統である。近交系の個体に対して変異原を投与し,人為的に突然変異を誘発したのちに体系的な交配実験を行うことで,様々な遺伝子座の変異を同定することができる。以下の実験 1 〜実験 3 において,同じ近交系の個体はいずれも,すべての遺伝子座において同一の対立遺伝子をもつものとする。また,交配実験では十分な個体数が得られ,変異による致死や不妊は起こらないものとする。
実験 1 :図 6 に示すように,近交系 1 の雄マウスに変異原を投与した(第 0 世代)。これを,同じ近交系 1 の野生型雌マウスと交配させ,第 1 世代のマウスを得た。その第 1 世代の雄マウスと近交系 1 の野生型雌マウスとの交配から第 2 世代のマウスを得た。その後,第 2 世代のマウス同士の交配から第 3 世代のマウスを得た。
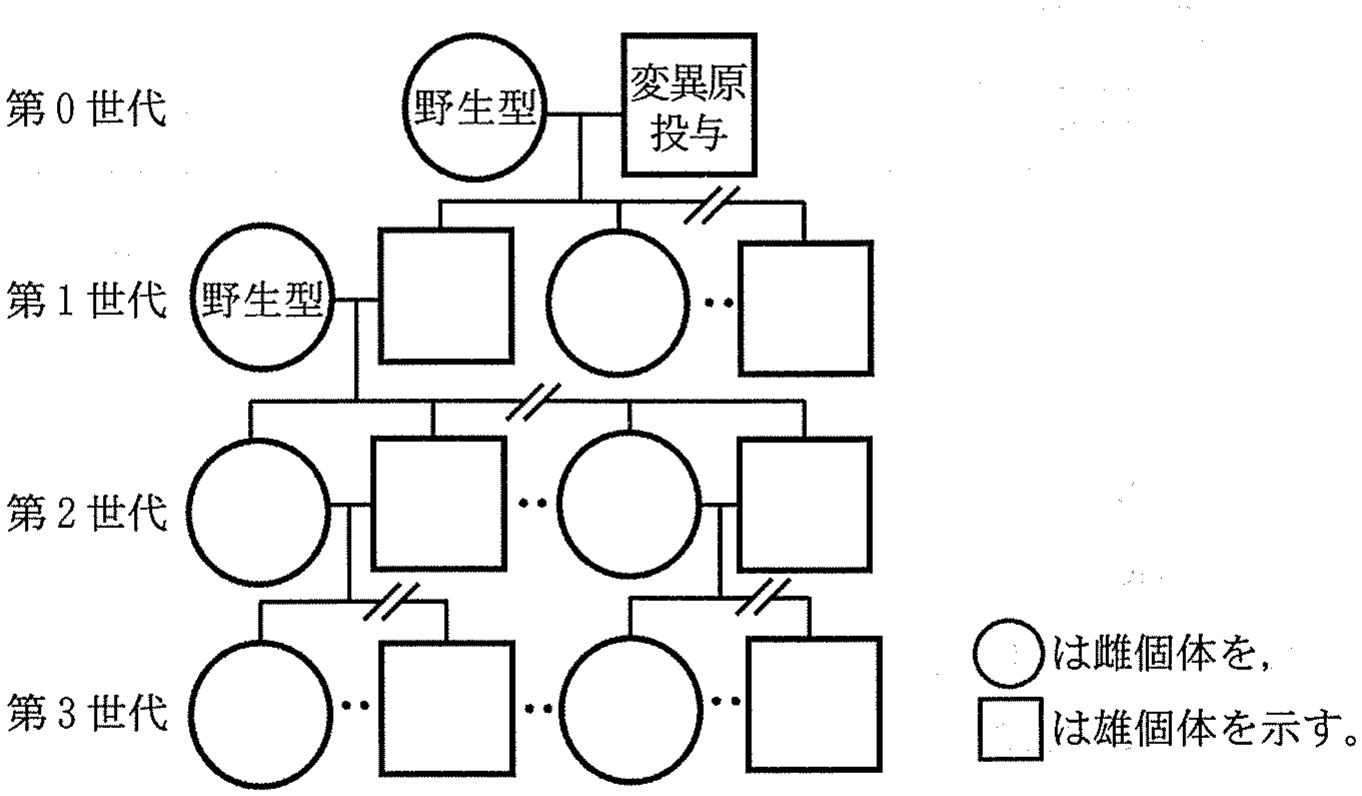
問 5 実験 1 において,変異原を投与した第 0 世代の雄マウスの生殖細胞に,①顕性(優性)変異,または②潜性(劣性)変異が生じたものとする。それぞれの変異が次世代に伝わり,以降の交配実験で変異に由来する表現型を示す個体が観察されうる最初の世代を,解答欄①,②に記入せよ。
この問題は,次のページに続いている。
実験 2 :実験 1 により常染色体上の遺伝子座 A に潜性(劣性)変異をもつ変異体マウスを得た。遺伝子座 A の野生型の対立遺伝子を A,潜性(劣性)変異をもつ対立遺伝子を a とする。近交系 1 の遺伝子型 aa の変異体マウスと近交系 2 の野生型マウスの交配実験を行った。近交系 1 と近交系 2 はゲノム DNA の塩基配列が異なる箇所があり,常染色体上の遺伝子座 B における近交系 1 の対立遺伝子を B1,近交系 2 の対立遺伝子を B2 とする。図 7 に示すように,近交系 1 の遺伝子型 aaB1B1 のマウスと近交系 2 の遺伝子型 AAB2B2 のマウスの交配を行い,第 1 世代のマウスを作出した。その後,第 1 世代のマウス同士の交配により第 2 世代のマウスを得た。
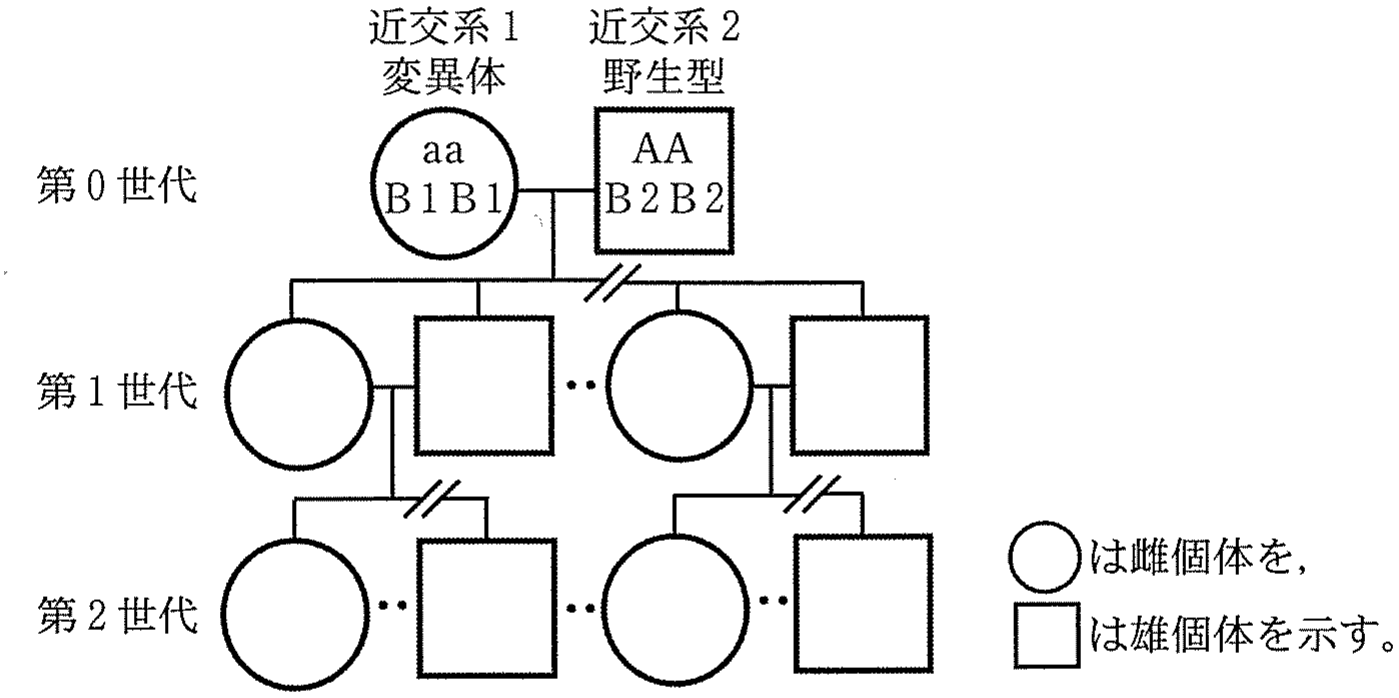
問 6 実験 2 の遺伝子座 A と B が,①異なる染色体上にある場合,または②同一染色体上にあり,かつそれらの間の減数分裂時の組換え価が雌雄共に 0.2 の場合に,第 2 世代における遺伝子型 aa の個体のうち,遺伝子座 B の遺伝子型が B1B1 となる個体の割合として期待される値を,解答欄①,②に百分率(小数点以下は切り捨て)で記せ。
実験 3 :実験 1 の第 1 世代のマウスで現れたある表現型が,常染色体上の遺伝子座 C の変異に起因することがわかった。遺伝子座 C の野生型の対立遺伝子を C,変異型の対立遺伝子を c とする。通常の顕性(優性)または潜性(劣性)変異とは異なり,遺伝子型 CC の雌マウスと遺伝子型 Cc の雄マウスの交配からは,次世代にて変異表現型を示す個体が雌雄共に半数現れた一方で,遺伝子型 Cc の雌マウスと遺伝子型 CC の雄マウスの交配からは,変異表現型を示す個体は雌雄にかかわらず現れなかった(表 2 )。なお,遺伝子型 cc のマウスはいずれの個体も雌雄にかかわらず変異表現型を示した。
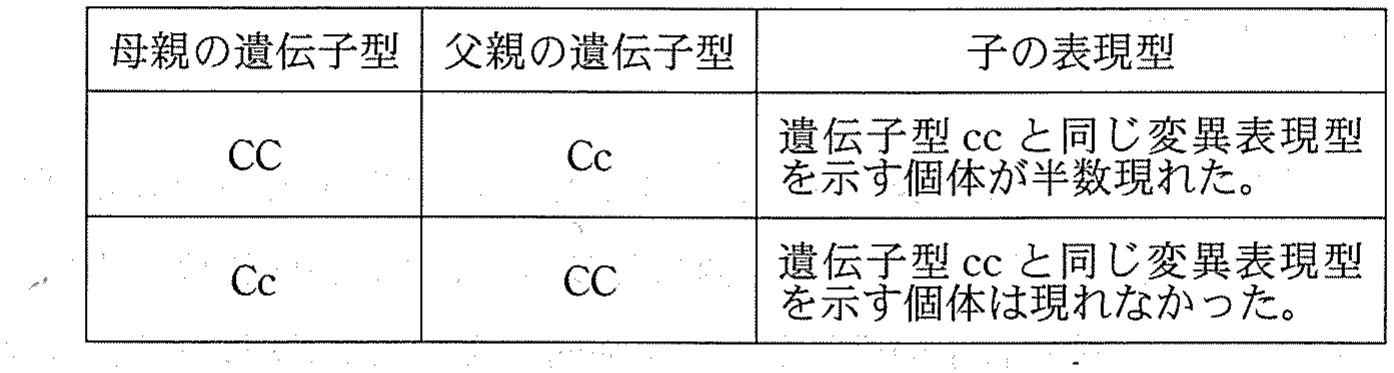
問 7 実験 3 の結果は,遺伝子座 C からの転写が相同染色体の片方でしか起こらないことで説明できる。このとき,遺伝子型 Cc の雄マウスと遺伝子型 Cc の雌マウスを交配して得られる次世代のマウスのうち,遺伝子型 cc と同じ変異表現型を示す個体の割合として期待される値を,百分率(小数点以下は切り捨て)で記せ。
生物問題 Ⅲ
次の文章(A),(B)を読み,問 1 〜問 8 に答えよ。解答はすべて所定の解答欄に記入せよ。
(A) 一部の植物では,低温に一定期間さらされることで花芽形成が促進される春化と呼ばれる現象が観察される。植物によって低温に反応する発達段階は異なり,吸水した種子の段階から低温に反応する植物もあれば,植物体が比較的大きく育つまで低温に反応しない植物もある。①前者は種子春化型の植物,後者は植物体春化型の植物と呼ばれる。春化には②ジベレリンと総称される一連の植物ホルモンが関与していることが明らかにされている。
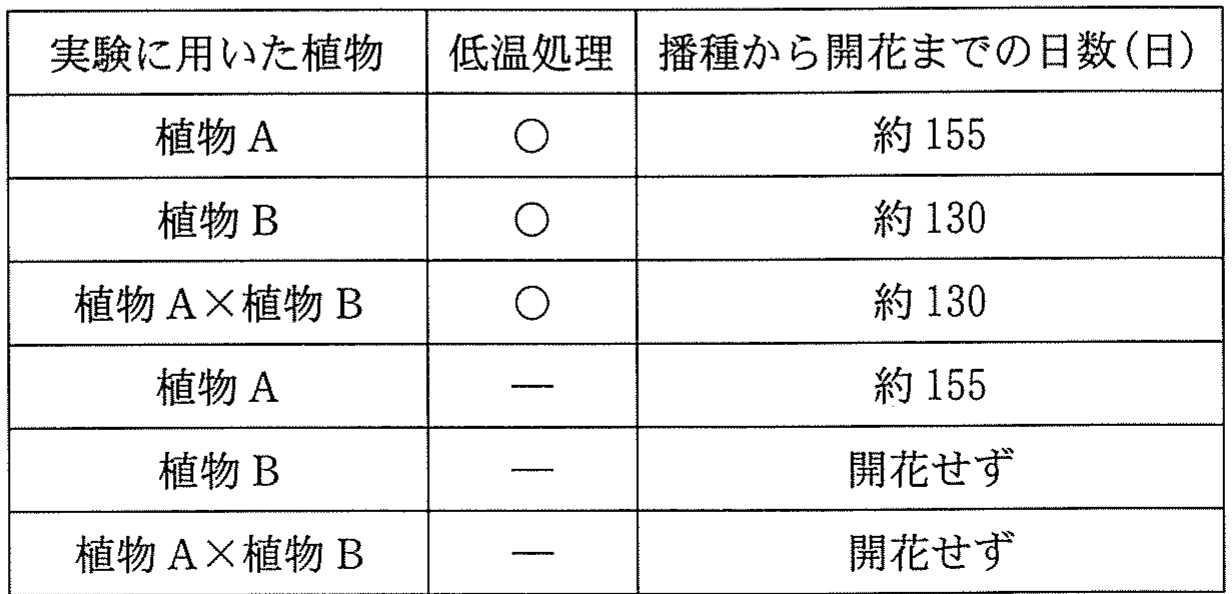
問 1 下線部①に関して,表 1 は,植物体春化型の植物 A と種子春化型の植物 B,およびそれらをかけ合わせた際に生じる 4 倍体の種間雑種(植物 A × 植物 B)について,吸水種子の段階から一定期間与える低温処理の有無,および播種(はしゅ)から開花までの日数をまとめたデータである。種子春化型と植物体春化型が対立形質である場合,この交雑においてどちらが顕性(優性)形質であると考えられるか,解答欄①に記せ。また,そのように考えた理由を解答欄②の枠の範囲内で説明せよ。なお,十分な期間,開花の有無を観察したものとする。
問 2 下線部②に関して,ダイコンにおいて低温処理とジベレリンの関係を調査する実験を行った。表 2 は低温処理・活性型ジベレリン処理・試薬 X 処理の有無と,播種から開花までの日数の関係を示したデータである。試薬 X がジベレリンの生合成・代謝経路に作用する場合,図 1 の経路のどの段階に,どのように作用していると考えられるか。その説明として最も適切なものを(あ)〜(え)から 1 つ選び,記号を記せ。なお,自然界には数多くのジベレリン誘導体が存在し,その中には,活性をもつ活性型ジベレリンだけでなく,活性をもたない未成熟型ジベレリンや不活性型ジベレリンも含まれるものとする。また,活性型ジベレリンは低温処理によって増加し,開花促進効果をもつものとする。

(あ) 試薬 X は図 1 の A の反応を促進している。
(い) 試薬 X は図 1 の A の反応を抑制している。
(う) 試薬 X は図 1 の B の反応を促進している。
(え) 試薬 X は図 1 の B の反応を抑制している。
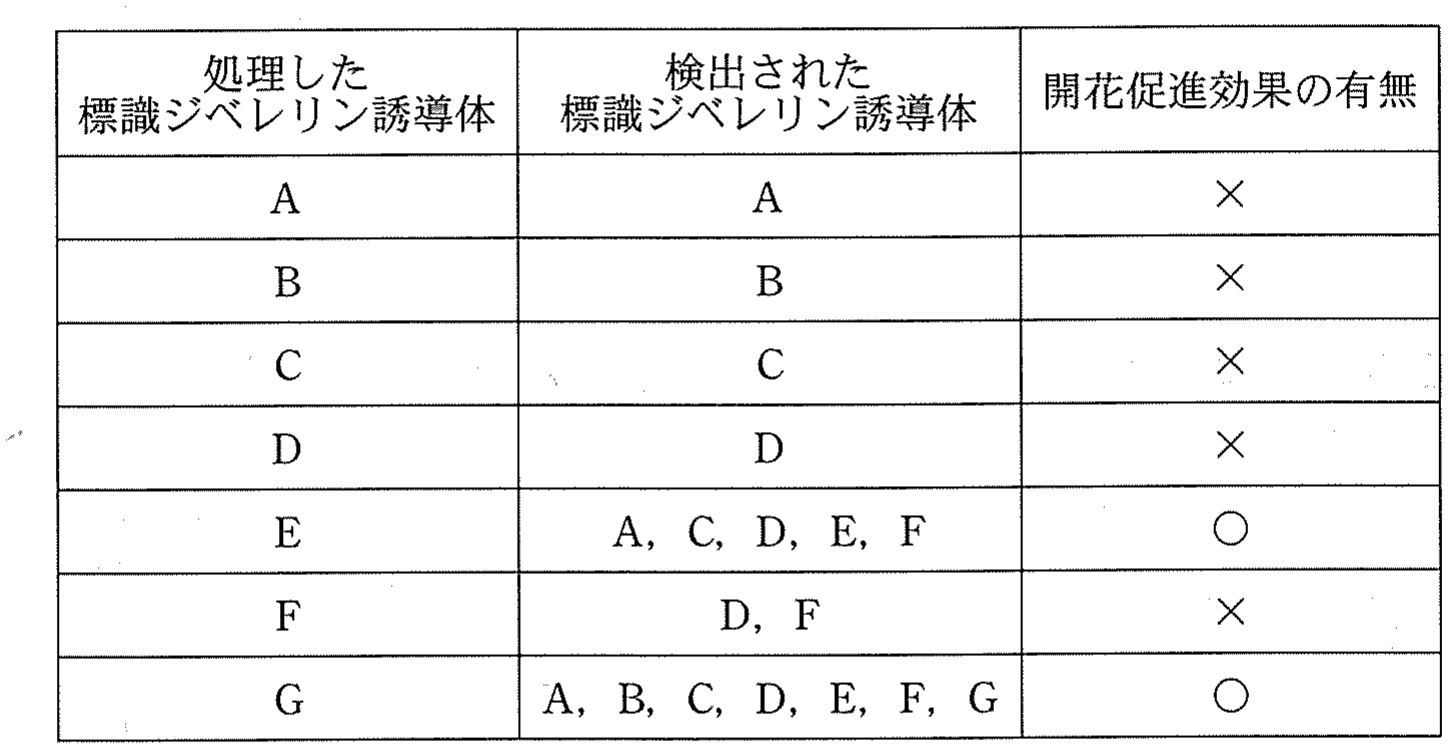
問 3 下線部②に関して,ダイコンの茎葉部からジベレリンを抽出して解析したところ,A 〜 G の 7 種類のジベレリン誘導体が同定された。放射性同位元素で標識したそれぞれのジベレリン誘導体でダイコンを一定期間処理し続けた際に,検出される標識ジベレリン誘導体と,開花促進効果の有無を調べたところ,表 3 に示す結果が得られた。この A 〜 G の 7 種類の誘導体のうち 1 つのみが活性型ジベレリンである場合,どれであると考えられるか。A 〜 G から 1 つ選び,記号を記せ。
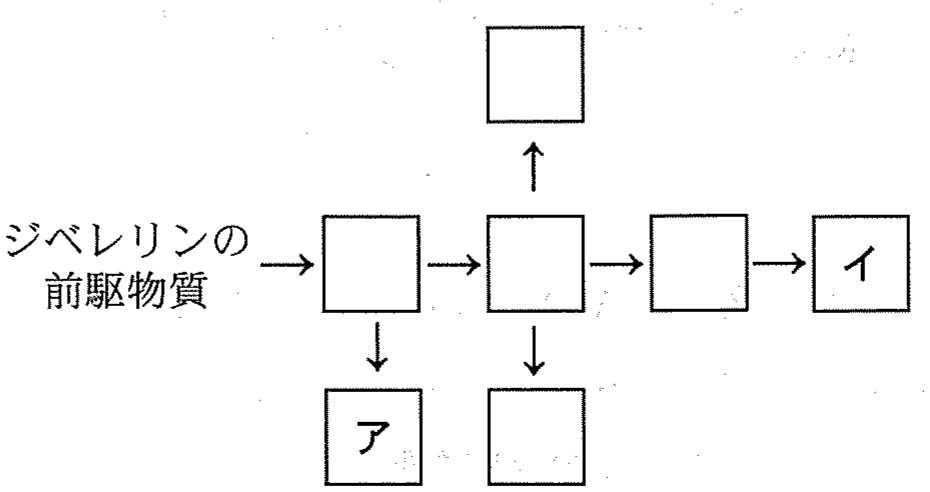
問 4 表 3 の結果から,A 〜 G の 7 種類のジベレリン誘導体の生合成・代謝経路は図 2 のように推定される。ア および イ に入る誘導体を A 〜 G から 1 つずつ選び,記号を記せ。
(B) ヒトの平衡感覚を司る ウ として,内耳には前庭と半規管がある。前庭には エ をもった感覚細胞があり,その上には オ と呼ばれる炭酸カルシウムの結晶が多数乗っている。体が傾くと オ が動いて エ が曲がり,感覚細胞が反応して体の傾きを感じることができる。半規管にも エ をもった感覚細胞がある。頭が回転すると,半規管の中のリンパ液が慣性のために一方向に流され,その流れによって エ が曲がり,感覚細胞が反応して回転の方向を識別することができる。また,半規管は前庭動眼反射の ウ としての役割を担う。前庭動眼反射は,頭の回転にかかわらず網膜に安定した像を保つための反射機構であり,頭の回転を感知してただちに反対方向に無意識的な目の運動を引き起こす。
問 5 文中の ウ 〜 オ に当てはまる最も適切な語句を,以下の語群の(あ)〜(し)から 1 つずつ選び,記号を記せ。
語群:
(あ) 適刺激,(い) 効果器,(う) 受容器,(え) 運動神経,
(お) 平衡石(耳石),(か) 虹彩,(き) 聴覚器,(く) 耳小骨,
(け) 基底膜,(こ) うずまき管,(さ) 聴細胞,(し) 感覚毛
問 6 ヒトは様々な方向への頭の回転を感知することができるが,それを可能とする半規管の構造上の特徴について,解答欄の枠の範囲内で説明せよ。
この問題は,次のページに続いている。
前庭動眼反射による左右方向の眼球運動を調べることを目的として,健常な被検者を対象に検査 1 および検査 2 を行った。なお,以下では,半規管の中でリンパ液が流れる方向のみにより,眼球運動の方向が説明できるものとする。
検査 1 :図 3 のように被検者を仰向けに寝かせ,外側(水平)半規管の形成する平面を重力軸と平行になるようにした。被検者を暗所で開眼させ,前方を注視するように指示し,被検者の頭を検者が右方向へ回転させた。
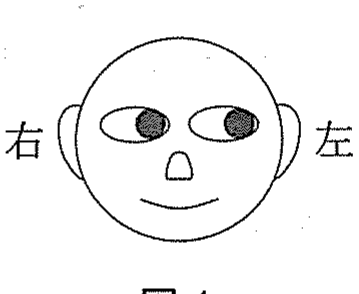
検査 1 の結果:図 4 のように被検者の左右眼球はともに前庭動眼反射により左方向へ動いた。
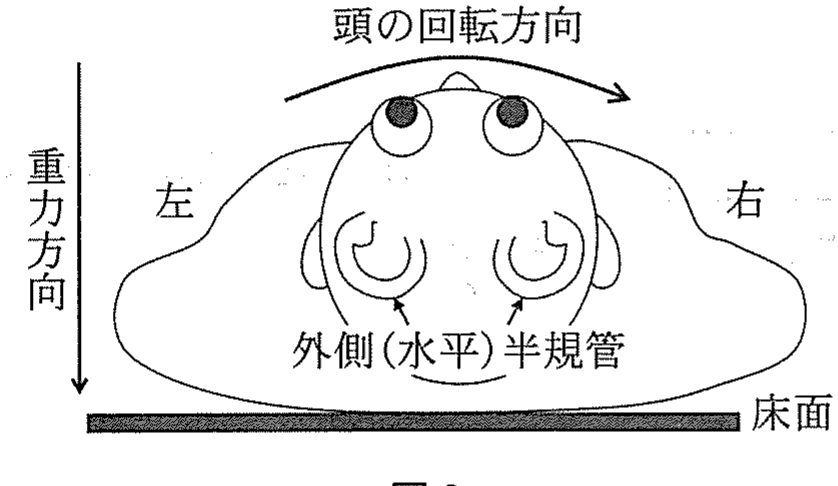
検査 2 :検査 1 と同じ条件で被検者を仰向けに寝かせたのち,被検者の頭を回転させる代わりに,図 5 のように右外耳道に体温よりも高い温度の温水(44 ℃)を,一方,左外耳道には体温よりも低い温度の冷水(30 ℃)を同時に注入した。
検査 2 の結果:左右外耳道に近い外側(水平)半規管の一部の温度が変化し,その内部のリンパ液の比重も変化することで,図 5 の矢印で示す向きのリンパ液の流れが生じた。
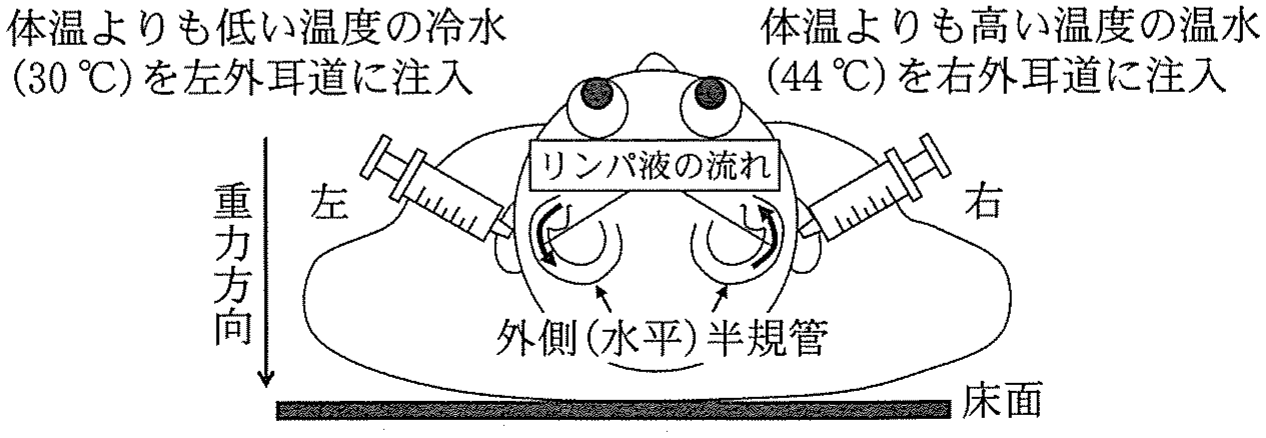
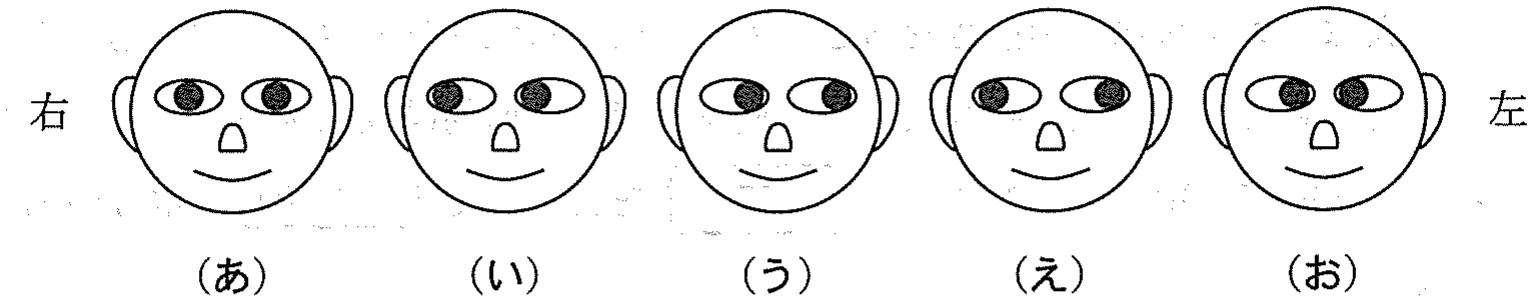
問 7 検査 2 で誘発される前庭動眼反射による眼球運動の方向を,以下の(あ)〜(お)から 1 つ選び,その記号を解答欄①に記せ。また,その方向を選択した理由を解答欄②の枠の範囲内で説明せよ。
問 8 前庭動眼反射により被検者の左右眼球が右方向へ動くと考えられる検査方法を,以下の(あ)〜(く)からすべて選び,記号を記せ。なお,うつ伏せとは図 3 の姿勢から 180° 回転して顔を床面に向けた姿勢を表し,座位とは椅子に腰掛けて外側(水平)半規管の形成する平面が重力軸と直交する姿勢を表す。また,指定した条件以外は,検査 1 および検査 2 の条件と同一とする。
(あ) うつ伏せの被検者の右外耳道に体温よりも低い温度の冷水(30 ℃)を,左外耳道に体温よりも高い温度の温水(44 ℃)を同時に注入する。
(い) うつ伏せの被検者の右外耳道に体温よりも高い温度の温水(44 ℃)を,左外耳道に体温よりも低い温度の冷水(30 ℃)を同時に注入する。
(う) うつ伏せの被検者の頭を,検者が右方向へ回転させる。
(え) うつ伏せの被検者の頭を,検者が左方向へ回転させる。
(お) 座位の被検者の右外耳道に体温よりも低い温度の冷水(30 ℃)を,左外耳道に体温よりも高い温度の温水(44 ℃)を同時に注入する。
(か) 座位の被検者の右外耳道に体温よりも高い温度の温水(44 ℃)を,左外耳道に体温よりも低い温度の冷水(30 ℃)を同時に注入する。
(き) 座位の被検者の頭を,検者が右方向へ回転させる。
(く) 座位の被検者の頭を,検者が左方向へ回転させる。
生物問題 Ⅳ
次の文章を読み,問 1 〜問 6 に答えよ。解答はすべて所定の解答欄に記入せよ。
気孔は,葉から水を蒸散させることで,根による栄養分や水分の取り込みを促進するとともに,光合成に必要なガス交換をも担う。植物は乾燥ストレスにさらされると,体内で植物ホルモンである ア を合成し,①気孔を閉じ,水分の損失を防ぐ。
寄生植物であるストライガは,モロコシなどの根に吸器と呼ばれる器官を連結させることで,宿主植物から栄養分や水分を収奪し生育する。ストライガ自身も光合成を行うが,自らの光合成によって獲得できるエネルギーだけでは生存することができないため,一部のエネルギーを宿主植物に依存している。ストライガは ア を合成することができるが,そのシグナル伝達経路の一部に異常があるため,②乾燥ストレスにさらされても気孔が閉じにくい性質をもつ。
問 1 文中の ア に当てはまる適切な語句を記せ。
問 2 下線部①に関して,植物ホルモンが作用して気孔が閉じるしくみについて,以下の 4 つの用語をすべて用いて,解答欄の枠の範囲内で説明せよ。なお,用語を用いる順番や回数は問わない。
膨圧,カリウムイオン,浸透圧,孔辺細胞
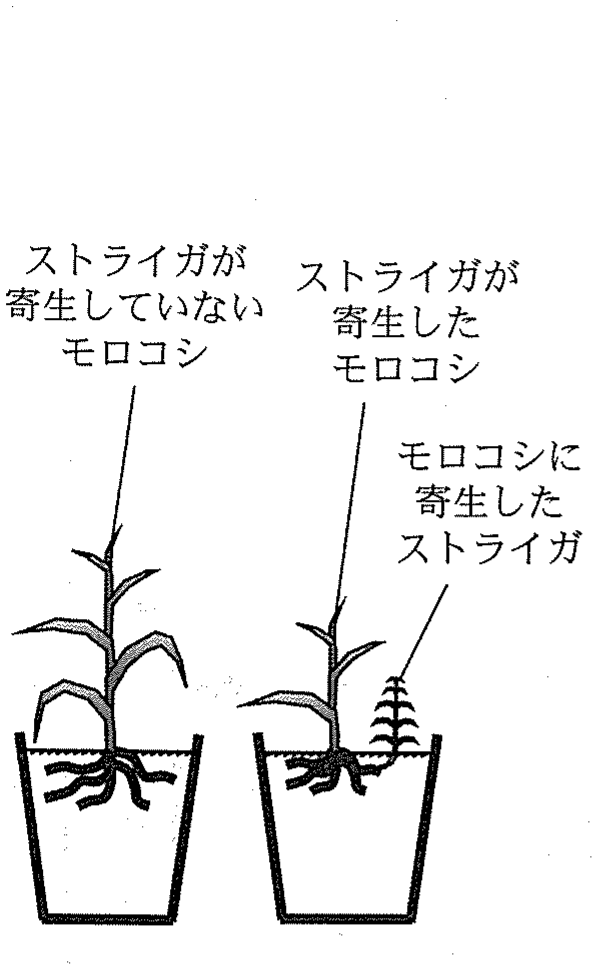
ストライガが宿主植物から栄養分や水分を収奪するしくみを理解するために,次の実験を行った。ストライガが寄生していないモロコシとストライガが寄生したモロコシを,湿潤条件で 60 日間栽培した(図 1 )。その後,土壌中の水分量が高い湿潤条件下,もしくは低い乾燥条件下で一定期間栽培後に,葉面積あたりの光合成速度と蒸散速度を測定し,図 2 の結果を得た。
問 3 以上の実験結果からわかるモロコシとストライガの性質について,最も適切な記述を(あ)〜(え)から 1 つ選び,記号を記せ。
(あ) モロコシはストライガに寄生されると,葉面積あたりの光合成速度が上昇する。
(い) モロコシはストライガに寄生されると,葉面積あたりの蒸散速度が低下する。
(う) ストライガは湿潤条件よりも乾燥条件の方が,葉面積あたりの光合成速度が速い。
(え) ストライガの葉面積あたりの蒸散速度は,湿潤・乾燥いずれの条件でも,モロコシの葉面積あたりの蒸散速度よりも速い。
問 4 下線部②に関して,乾燥ストレスにさらされても気孔が閉じにくいという性質は,宿主植物に寄生するストライガにとってどのような利点があると考えられるか。実験の結果を踏まえて,解答欄の枠の範囲内で説明せよ。
生物の形質の進化を考えるうえで,系統樹が役に立つ。図 3 は遺伝子の塩基配列に基づいて推定された陸上植物の系統関係の仮説の 1 つである。陸上植物の系統関係の比較のためにシャジクモ藻類も含めている。
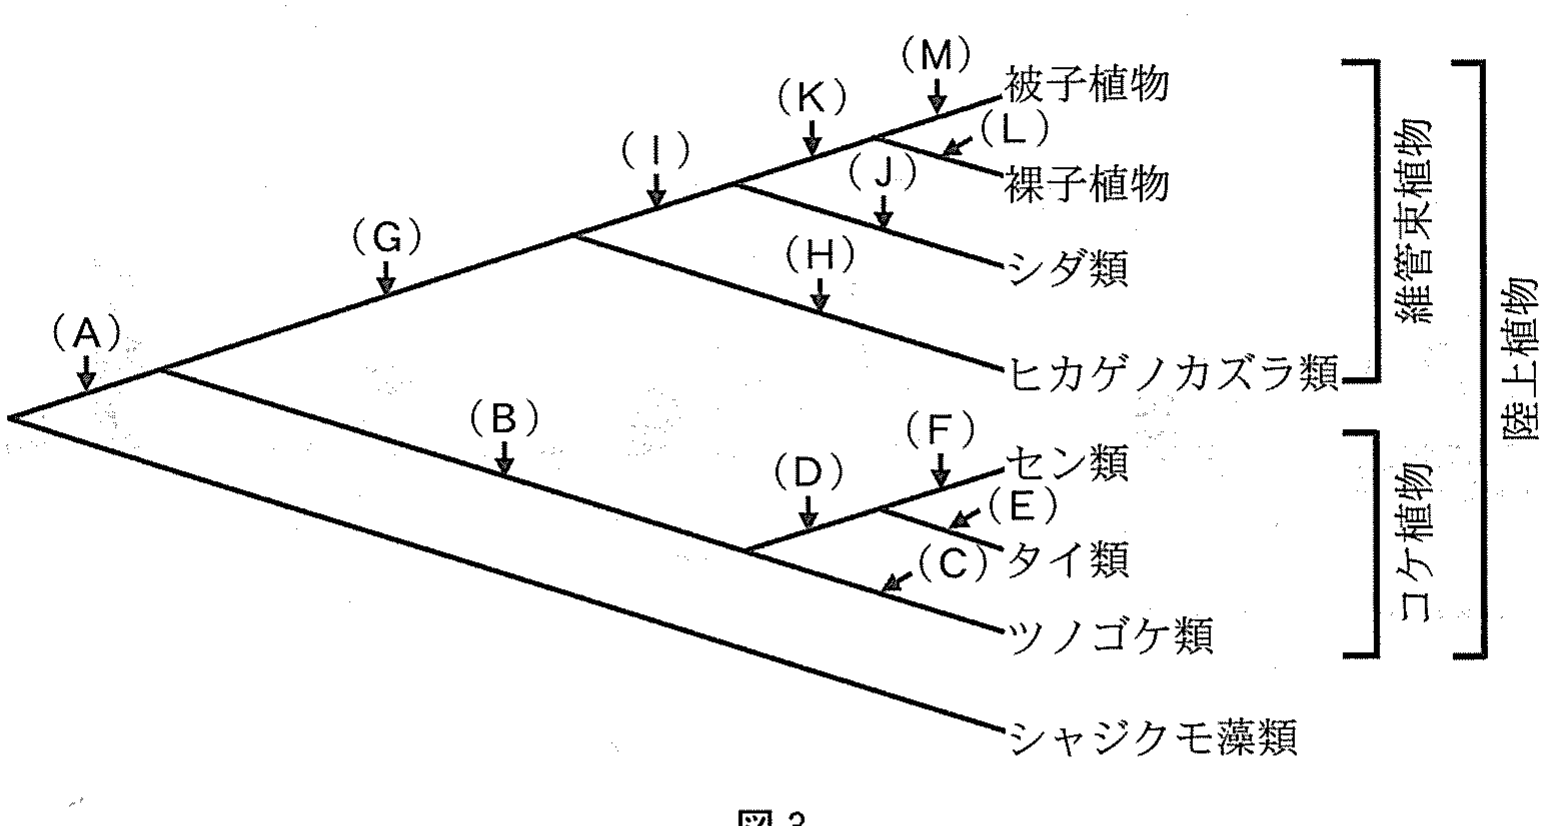
問 5 図 3 の(A),(K),(M)では,それぞれ陸上植物,裸子植物と被子植物,被子植物への進化の過程でどのような形質や性質が獲得されたと考えられるか。最も適切な語句を(あ)〜(お)から 1 つずつ選び,記号を記せ。
(あ) 多細胞,(い) 種子,(う) 重複受精,(え) 光合成,(お) クチクラ
問 6 気孔は,ほぼすべての陸上植物に存在するが,タイ類には存在しない。また,シャジクモ藻類にも気孔は存在しない。図 3 が陸上植物の真の系統関係を示していると仮定した場合,陸上植物の気孔の獲得あるいは喪失は,図 3 の(A)〜(M)のどこで生じたと考えられるか。獲得と喪失の合計回数が最も少ない状況を想定し,解答欄の枠の範囲内で説明せよ。
補足説明(理科(生物))
生物問題 Ⅳ 58 ページ
図 2 に以下の出典を補足する。
(Inoue ら,2013 を改変)
以 上