生 物 (4 問題 100 点)
生物問題 Ⅰ
次の文章(A),(B)を読み,問 1 〜問 6 に答えよ。解答はすべて所定の解答欄に記入せよ。
(A) ATP 合成酵素はミトコンドリアの内膜に存在するタンパク質で,ミトコンドリアの膜間腔(こう)からマトリックスへ が流入する際の経路になっている。 が ATP 合成酵素の内部を通過する際,この酵素の回転子と呼ばれる部分が回転し,触媒部位が活性化されることで ATP が合成される。このように, の移動によって ATP が合成される仕組みは,化学浸透と呼ばれる。
ミトコンドリアの膜間腔側の 濃度がマトリックス側の 濃度より高くても, の流入によって得られるエネルギーが ア に不十分なときには ATP 合成酵素の回転子が逆方向に回転し,機能も逆転する。このとき, はその濃度勾配に イ 輸送され,ウ がおこるので,これは エ 輸送である。
ATP 合成酵素は の流入によって ATP を合成するため,ミトコンドリアの内膜には をくみ出してエネルギーを蓄える仕組みがある。この仕組みは電子伝達系と呼ばれ,クエン酸回路で得られた電子を使って をくみ出している。
クエン酸回路では,基質となる有機物を酸化することで①電子を取り出し,電子伝達系を構成するタンパク質複合体に電子を渡す。細胞内の酵素のはたらきによって還元力の強い物質が生成することを,実験 1 によって確かめた。
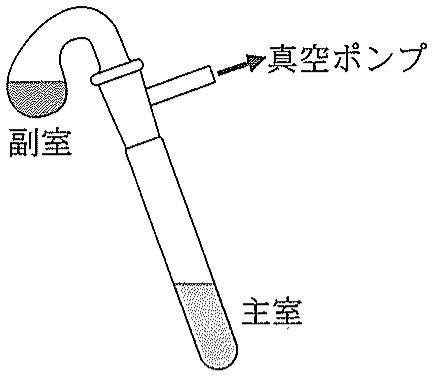
実験 1 :ツンベルク管(図 1 )の主室に②組織破砕液(ニワトリの胸筋に蒸留水を加えてすりつぶしたもの)を,副室にコハク酸ナトリウム水溶液(基質)とメチレンブルー溶液を入れた。次に,ツンベルク管の内部を③真空ポンプで減圧した。副室内の溶液を主室に移動させて混合したところ,混合液の色は青色から乳白色に変化した。真空ポンプを外し,混合液を空気にさらすと,混合液の色は青色に戻った。
問 1 ア 〜 エ に当てはまる最も適切な語句を以下の語群から選んで記入せよ。
語群:アセチル CoA の合成,ATP の合成,アセチル CoA の分解,ATP の分解,従って,逆らって,能動,受動
問 2 下線部①に関して,クエン酸回路で取り出された電子は とともに補酵素で運搬される。クエン酸回路と電子伝達系の間で電子を運ぶ補酵素のうち,還元型補酵素を 2 つ記入せよ。
問 3 実験 1 の下線部②に関して,この実験の対照実験として,組織破砕液にどのような操作を加えるべきかを説明せよ。
問 4 実験 1 の下線部③に関して,組織破砕液中では,クエン酸回路における有機物の酸化により が生成するが, を遮断すると が生成しなくなる。その理由を説明せよ。
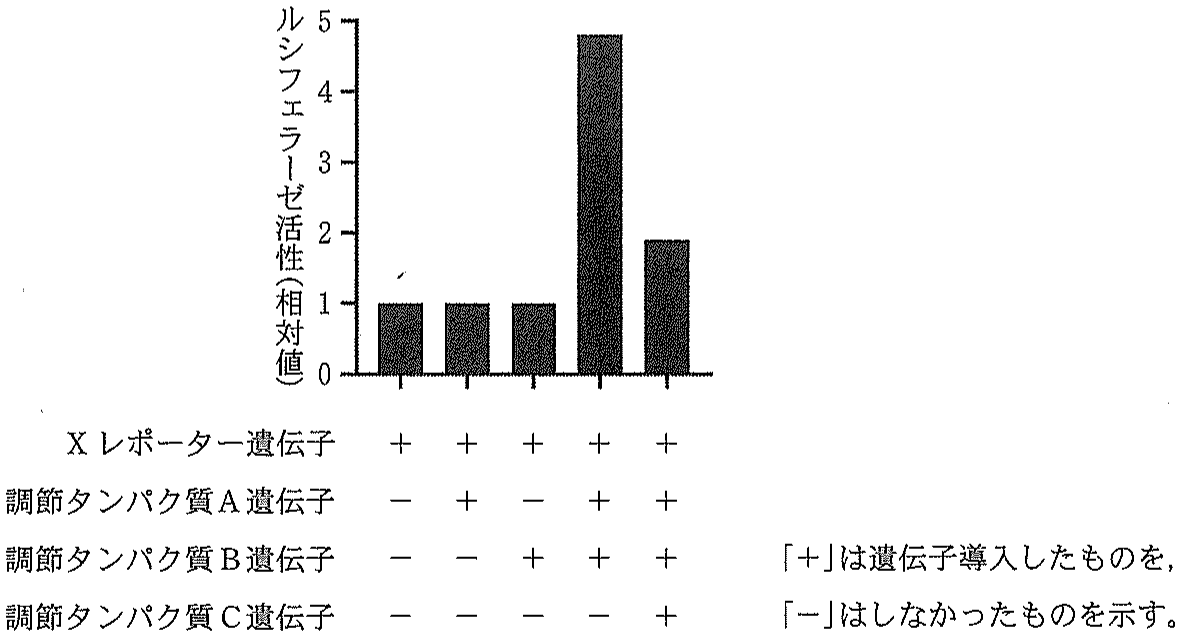
(B) 遺伝子発現は,転写を調節する調節タンパク質によって制御される。調節タンパク質 A と調節タンパク質 B は,複合体を形成した後に遺伝子 X のプロモーターに結合するが,調節タンパク質 C と調節タンパク質 D はプロモーターには結合しないことが知られている。また,調節タンパク質 D は,調節タンパク質 A とも調節タンパク質 B とも結合しない。遺伝子 X の転写調節機構を明らかにするため,下記の実験 2 から実験 4 を行った。
実験 2 :ホタルの発光反応を触媒する酵素であるルシフェラーゼの遺伝子を,遺伝子 X のプロモーターに制御されるように連結した。これを X レポーター遺伝子とする。X レポーター遺伝子と共に,図 2 に示すように色々な組み合わせで調節タンパク質 A,調節タンパク質 B,調節タンパク質 C の遺伝子を培養細胞に導入して発現させ,発光基質を添加して発光量を測定した。この方法では,細胞を破砕することなく生物発光を経時的に測定できる。
実験 3 :培養細胞に調節タンパク質 A と調節タンパク質 B の遺伝子を導入し,一定時間後に遺伝子 X の mRNA 量を測定した結果,mRNA 量の上昇が観察された。その後,翻訳阻害剤を添加し,さらに一定時間後に mRNA 量を測定した場合にも mRNA 量の上昇が観察された。
培養細胞に調節タンパク質 D の遺伝子を導入した場合も,一定時間後に遺伝子 X の mRNA 量を測定した結果,mRNA 量は上昇した。しかし,つぎに翻訳阻害剤を添加した後の遺伝子 X の mRNA 量の測定では,mRNA 量の上昇は抑制された。
この問題は,次のページに続いている。
実験 4 :DNA 断片にタンパク質が結合すると,DNA 断片のみの場合よりも全体としての分子量が大きくなり,電気泳動の移動距離が小さくなる。電気泳動による移動距離は,リンの放射性同位体, で DNA 断片を標識し,その放射線をオートラジオグラフィーという手法で可視化することで測定できる。
調節タンパク質 A,調節タンパク質 B,調節タンパク質 D と で標識した遺伝子 X のプロモーターの DNA 断片を混合し,電気泳動により分離した(図 3 )。この 標識 DNA 断片は,単独では移動距離が大きいところに集積したが(レーン L),調節タンパク質と結合すると移動距離が小さいところにも観察された(レーン M のバンド W)。レーン N では,レーン M の条件に加え, 標識 DNA 断片と同じ配列で,標識していない DNA 断片を大過剰に混合した。すると,バンド W が消失した。
また,レーン O とレーン P では,レーン M の条件に加え,それぞれ,調節タンパク質 A に対する抗体と調節タンパク質 D に対する抗体を加えた。
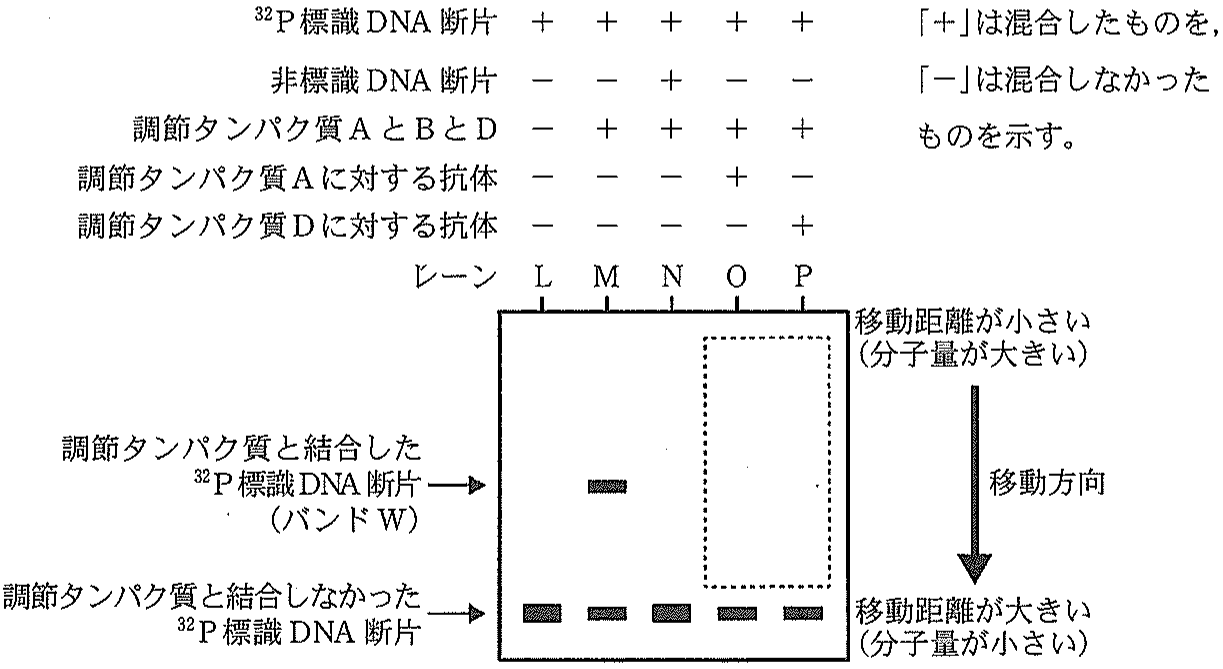
問 5 図 3 において,バンド W は,①レーン O と②レーン P ではどのように観察されるか,その理由も含めてそれぞれ説明せよ。ただし,抗体が調節タンパク質に結合しても,調節タンパク質の DNA への結合は阻害されないものとする。
問 6 次の(あ)〜(か)より実験 2 から実験 4 をふまえた考察として,適切でない文章をすべて選び,記号を解答欄に記入せよ。
(あ) 遺伝子 X の転写の活性化には,調節タンパク質 A,調節タンパク質 B および調節タンパク質 C が必要である。
(い) 調節タンパク質 C の機能は,調節タンパク質 A と調節タンパク質 B の複合体の形成,あるいは遺伝子 X のプロモーターへの結合を阻害することなどが考えられる。
(う) 調節タンパク質 D による遺伝子 X の転写の活性化には,別の調節タンパク質が必要である。
(え) 遺伝子発現を経時的に調べる実験において,ルシフェラーゼを用いると,生きた細胞で経時的な測定が可能である。
(お) 図 3 のレーン N でバンド W が消失した理由は,調節タンパク質 A と調節タンパク質 B の複合体が 標識 DNA 断片よりも非標識 DNA 断片により強く結合するためである。
(か) 図 3 のレーン N でバンド W が消失した理由は,調節タンパク質 A と調節タンパク質 B の複合体が結合した非標識 DNA 断片が,オートラジオグラフィーでは検出できないためである。
生物問題 Ⅱ
次の文章(A),(B)を読み,問 1 〜問 6 に答えよ。解答はすべて所定の解答欄に記入せよ。
(A) マイクロサテライトは,染色体に散在する反復配列で,とくに CACACA…のような数塩基の単位配列の繰り返しからなるものである。また個人ごとに異なる繰り返し数をもつ。
以下に,ある個人の染色体上の DNA 配列を示す(図 1 )。
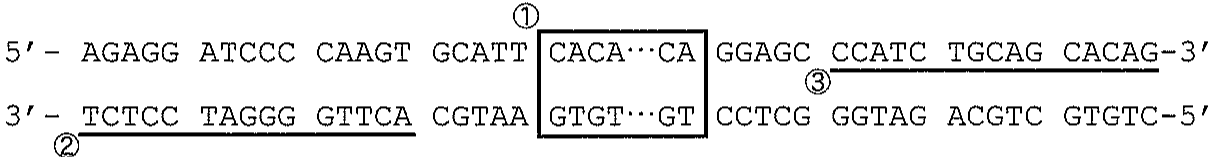
枠線部①は CA を単位配列とするマイクロサテライトである。この繰り返し数を PCR 法で調べる。下線部②,下線部③の配列に相補的に結合する ア を使用して図 1 の塩基配列をもつ DNA 断片を増幅した。増幅された DNA 断片の長さを電気泳動法で調べたところ,2 つの異なる長さの断片が観察された。これは父方,母方から由来するそれぞれのマイクロサテライトで単位配列の繰り返し数が異なるためである。この DNA 断片は 52 塩基対と 66 塩基対の長さをもっていたことから,CA の繰り返し数はそれぞれ イ 回と ウ 回である。
同一染色体上の異なる位置のマイクロサテライトについて,片方の親由来の 1 本の染色体にある単位配列の繰り返し数の並びをハプロタイプと呼ぶ。
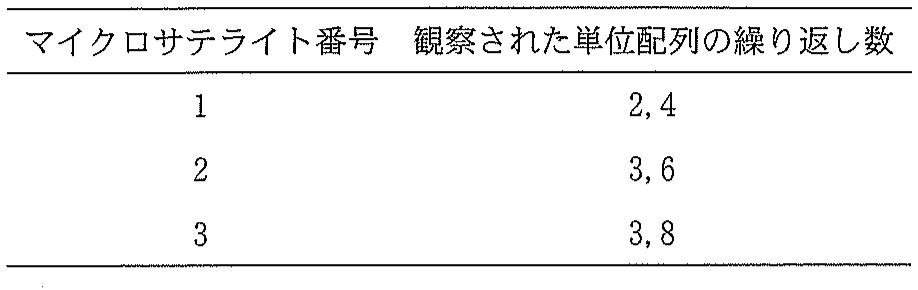
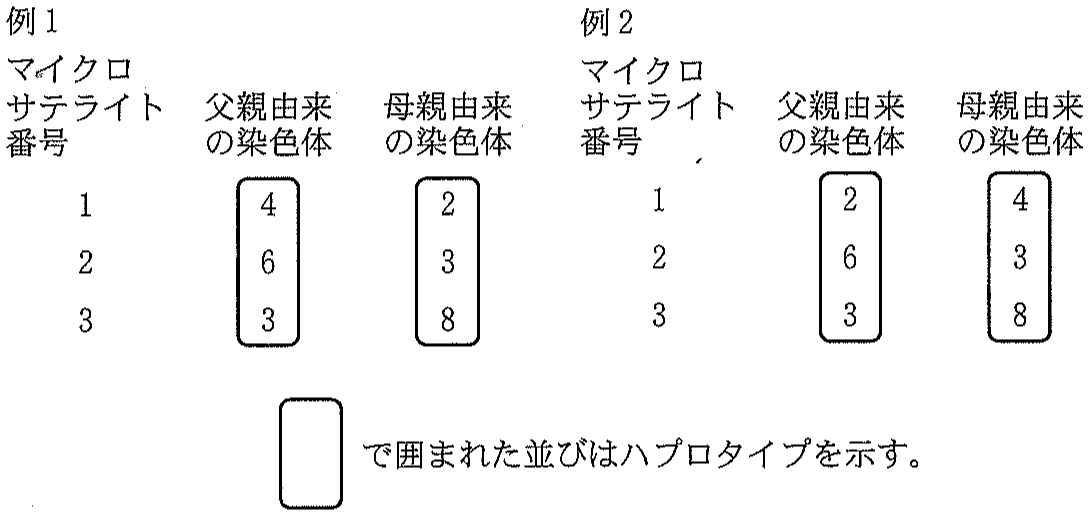
ある個人について,常染色体上で位置がわかっている 3 つのマイクロサテライトについて,それぞれ PCR 法で繰り返し数を調査した(表 1 )。表 1 の結果のみでは図 2 に示すような複数のハプロタイプの例が考えられ,一人のマイクロサテライトの実験結果からはハプロタイプを決定することはできない。
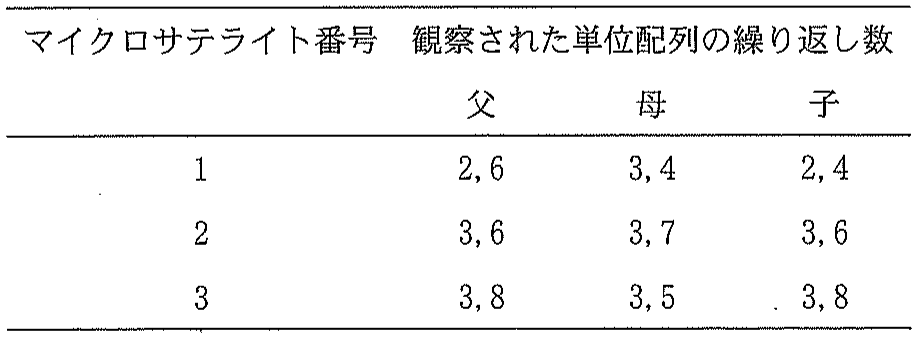
ハプロタイプを決定するためには,親子間でのマイクロサテライトの単位配列の繰り返し数の伝わり方の情報を用いる。血縁関係のある親子のある常染色体のマイクロサテライトの単位配列の繰り返し数を PCR 法で調べた(表 2 )。
問 1 文中の ア 〜 ウ に当てはまる適切な語句または数値を記せ。
問 2 表 2 の結果から子の染色体のハプロタイプを図 2 の例にならって記せ。ただし,この領域では乗換えは生じていない。またマイクロサテライトの突然変異は起こっていないとする。
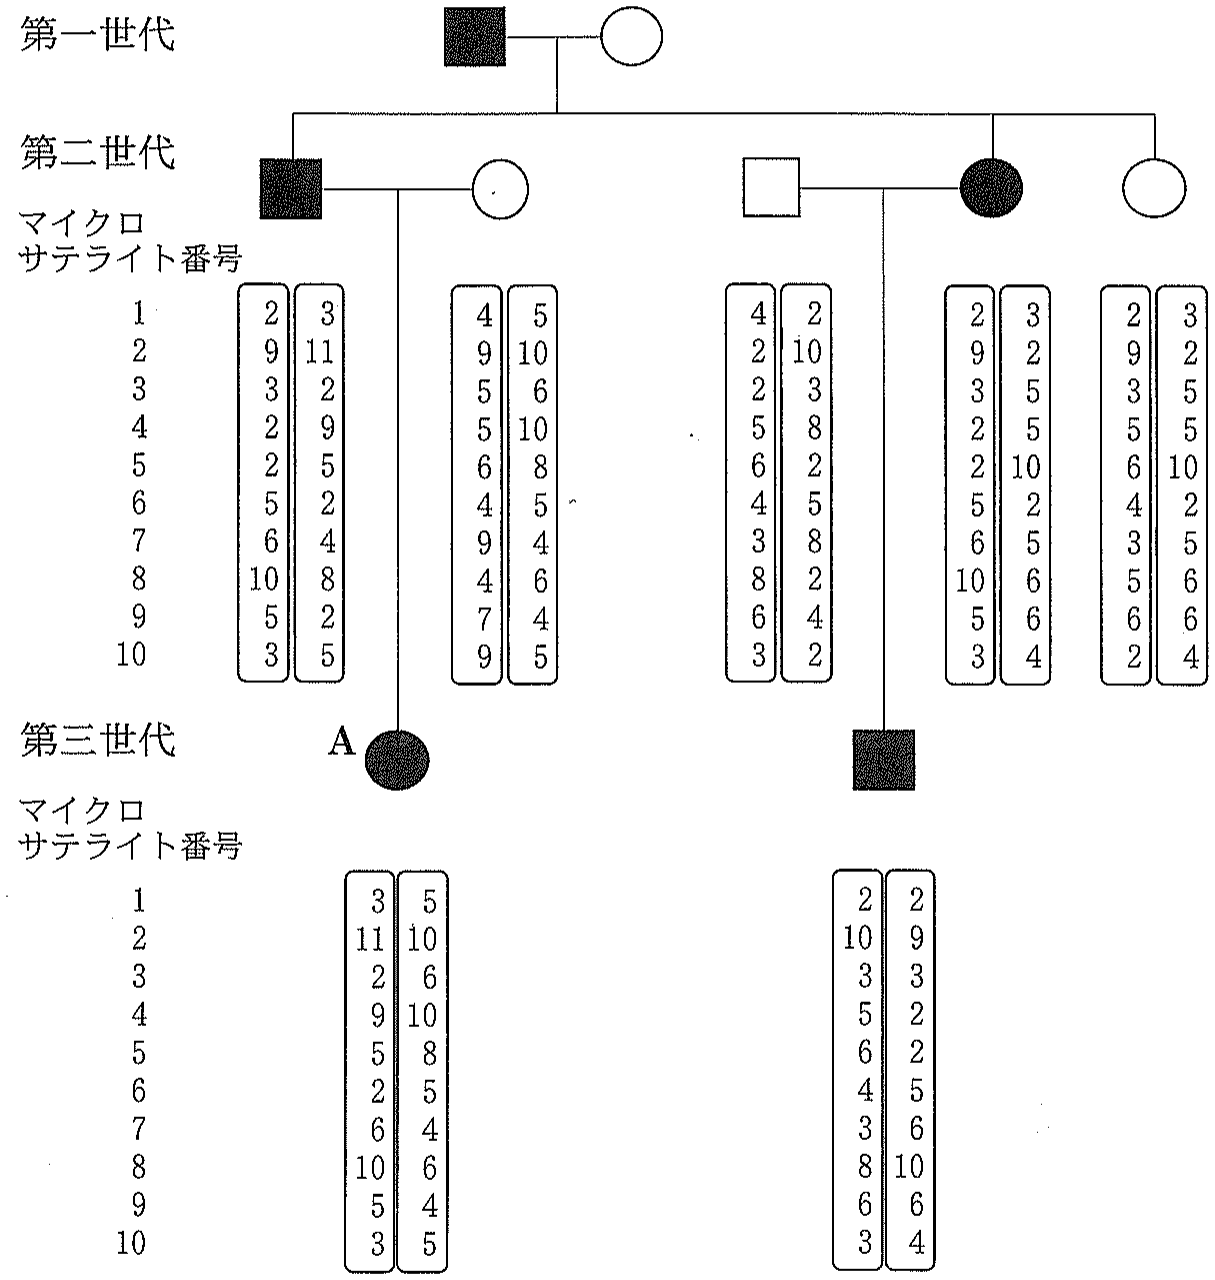
X 病患者は 10 万人に約 1 人の頻度で見つかり,常染色体上の単一の遺伝子の変異が原因で顕性(優性)遺伝すると考えられる。図 3 は X 病患者がいる家系図である。□,○はそれぞれ X 病の原因となる遺伝子の変異をもたないと考えられる男性,女性を示す。■,●は X 病患者である男性,女性を示す。上から下に世代が新しくなっている。この家系について,常染色体のマイクロサテライトを調べ,ハプロタイプを決定した結果を示す。X 病にかかわる遺伝子の変異は第 1 マイクロサテライトと第 10 マイクロサテライトの間にあることがわかっていた。その遺伝子の変異は第一世代の患者から伝わっている。これらのマイクロサテライトは同一染色体上で順番にほぼ等間隔に並んでいる。両端のマイクロサテライト間での組換え価はおおよそ 30 % 程度である。このなかでマイクロサテライトの突然変異は起こっていなかった。
問 3 図 3 の第三世代の A のハプロタイプに関して,父親,母親の配偶子が形成される際に乗換えが起こったと考えられるならば,父親,母親のどちらの染色体の何番と何番のマイクロサテライトの間で起こったのかを記せ。
問 4 この家系のマイクロサテライトの情報から,X 病にかかわる遺伝子の変異の染色体上の位置をさらに絞り込むことができる。何番と何番のマイクロサテライトの間に遺伝子の変異があるか,最小の範囲を記せ。
この問題は,次のページに続いている。
(B) ショウジョウバエの発生初期には,体節と呼ばれる分節構造が形成される。分節構造の形成には,エ 遺伝子群,オ 遺伝子群,カ 遺伝子群が順番にはたらくことが必要である。それぞれの体節は キ 遺伝子群のはたらきにより,前後軸に沿った位置特有の形態へと変化する。キ 遺伝子群の発現領域に変化がおきると,体の一部の領域の形態が別の位置の形態に転換する。
キ 遺伝子群は哺乳類を含むほとんどの動物にも存在する。哺乳類の脊椎骨や肋骨(ろっこつ)の形態形成は,胎児期の Hox 遺伝子群の発現により制御される。マウス胎児における *Hox 1*,*Hox 3*,*Hox 6*,*Hox 10*,*Hox 11*,*Hox 12* の発現領域は,将来の脊椎骨および肋骨の位置と図 4 のように対応していた。なお,マウスの *Hox 1*,*Hox 3*,*Hox 6*,*Hox 10*,*Hox 11*,*Hox 12* には同等の機能をもつ複数の遺伝子が存在するが,本問では簡単のために 1 つの遺伝子として表した。
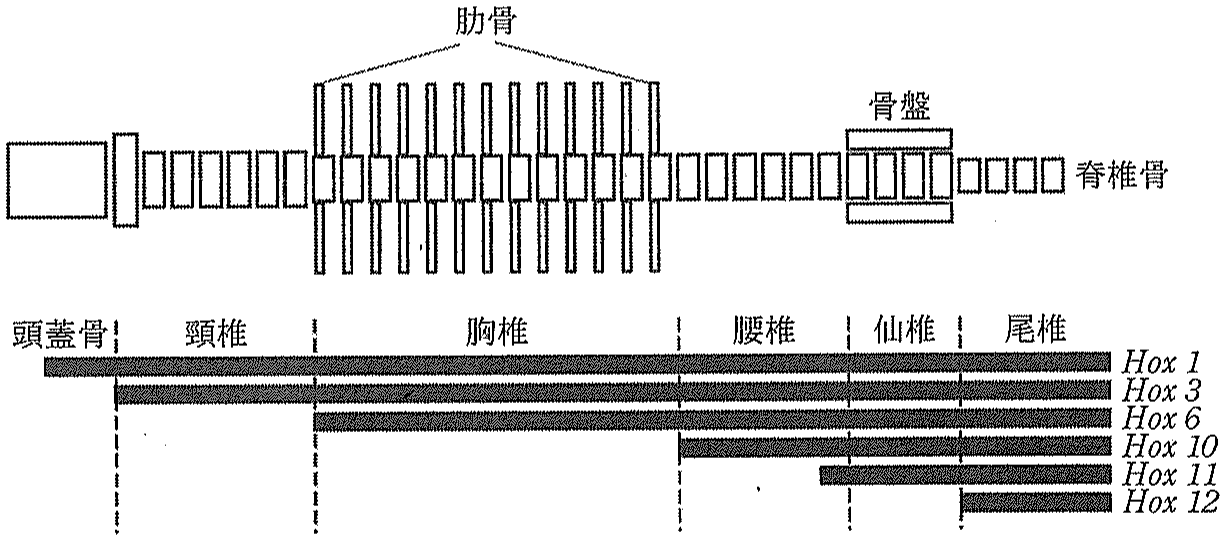
問 5 エ 〜 キ に入る最も適切な語句を,以下の語群から選び記せ。エ 〜 カ については発生の段階で機能する順に記せ。
語群:BMP,ペアルール,セグメントポラリティー,アポトーシス関連,Smad,ホメオティック,ギャップ,Nodal
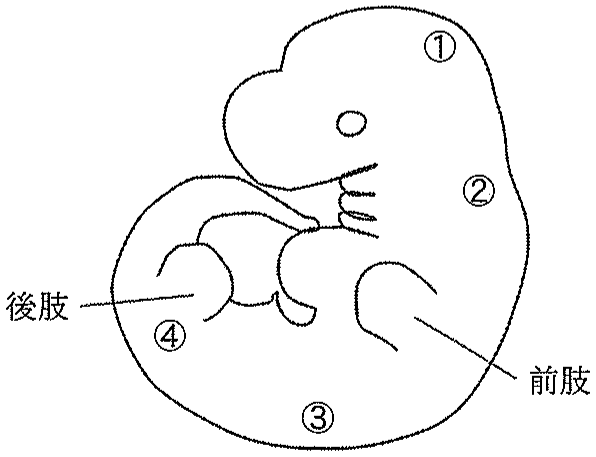
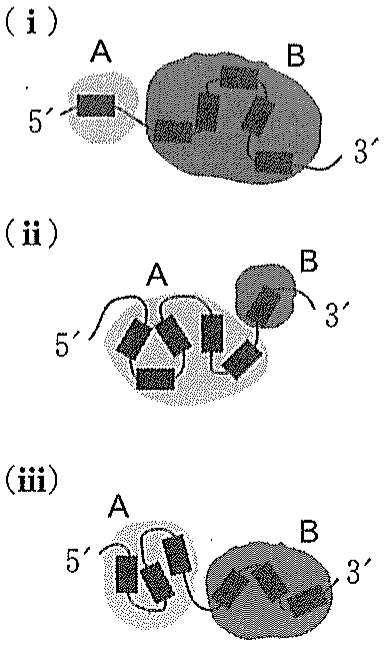
問 6 Hox 遺伝子群の空間的配置は,転写の活性化状態と関連があると考えられている。図 5 は,Hox 遺伝子の染色体上の配置,図 6 は図 4 で示した Hox 遺伝子の発現パターンが観察されたマウス胎児,図 7 は遺伝子の空間的配置をそれぞれ模式的に表しており,図 7 における A,B のどちらかは転写が活性化された領域,もう一方は転写が抑制された領域を表す。図 7 の(i)〜(iii)は,図 6 ①〜④のうち,どの部分の状態を表していると考えられるか,図 4 を参考に,最も適切なものを番号で答えよ。また,A,B の転写制御について,転写活性化または転写抑制いずれの状態か記せ。

生物問題 Ⅲ
次の文章(A),(B)を読み,問 1 〜問 6 に答えよ。解答はすべて所定の解答欄に記入せよ。
(A) 外界からの刺激に対して意識を介さずに起こる反応を反射と呼び,少数のニューロン間の連絡が,この反応を担っている。しつがい腱反射を例にとると,ひざ関節の下の腱をたたくと伸筋が伸び,①この筋肉に並列している筋紡錘が筋肉の伸張を検出し感覚ニューロンが興奮する。次に,②感覚ニューロンの興奮が伸筋を支配する運動ニューロンに伝わり伸筋が収縮する。また,感覚ニューロンの興奮は,脊髄の抑制性の介在ニューロンを介して,屈筋を支配する運動ニューロンの活動を抑制する。これにより,屈筋が収縮することなく伸筋が収縮し,足がはね上がる。
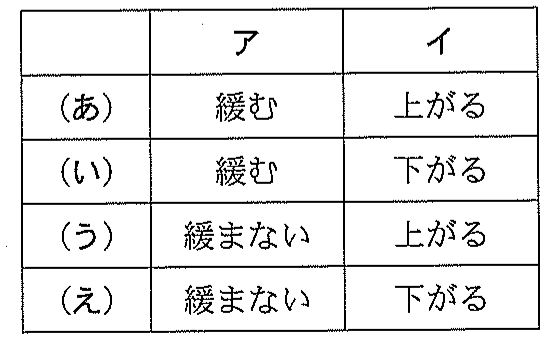
問 1 下線部①に関する下記の記述について,ア,イ に当てはまる最も適切な語句の組み合わせを(あ)〜(え)より 1 つ選び,その記号を記せ。
筋紡錘は筋肉に並列する錘内筋繊維上にあり,筋肉が伸張して錘内筋繊維が一緒に引き伸ばされたときに筋紡錘の感覚ニューロンが興奮する。一方,筋肉が運動ニューロンからの信号を受けて収縮するときには,錘内筋繊維も別の運動ニューロンからの信号を受けて収縮する。したがって,筋収縮時でも錘内筋繊維は ア ので,筋紡錘は筋収縮後の筋伸張を検出できる。すなわち,錘内筋繊維が収縮しないときと比べ,筋肉の長さの変化を検出する感度が イ。
問 2 下線部②に関連して,以下の(1)と(2)に答えよ。
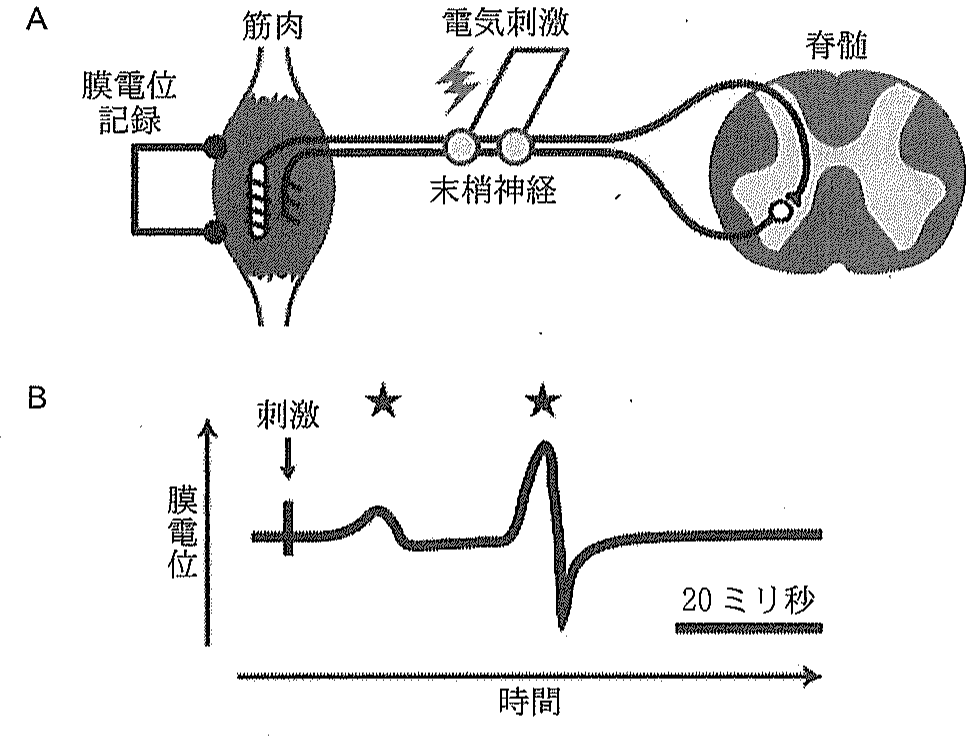
(1) 図 1 A で示すように末梢神経を適度な強度で電気刺激し筋肉の膜電位を記録した。筋肉の膜電位の経時変化をグラフにすると,図 1 B の星印で示される早い波と遅い波の 2 つの応答が検出された。2 つの波が発生する仕組みについて説明せよ。
(2) 1960 年代に筋収縮にカルシウムイオンが作用する過程が明らかになった。それ以来,生体内の数多くの現象でカルシウムイオンが重要な機能を担っていることが明らかになっている。カルシウムイオンが制御因子として機能するためには,定常状態での細胞質基質のカルシウムイオン濃度が低く保たれていることが重要である。筋細胞では,どのようにして低いカルシウムイオン濃度を維持しているのか,「筋小胞体」という用語を用いて説明せよ。
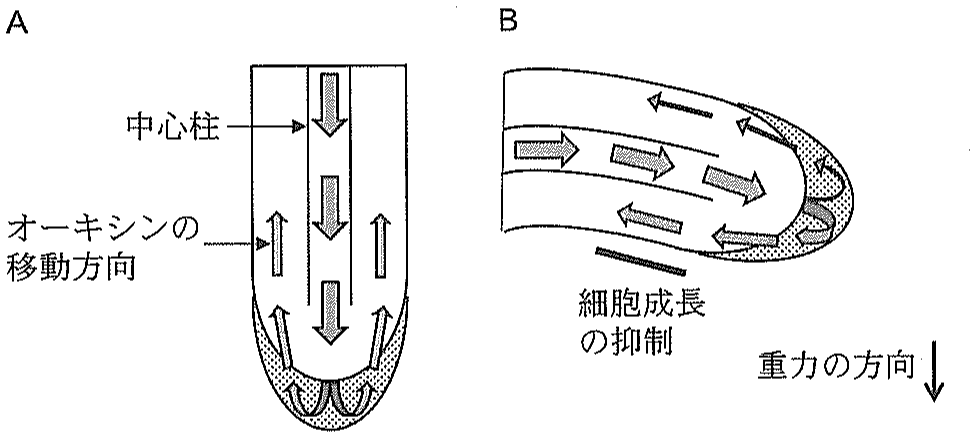
(B) 植物は重力の方向を感知し,根は重力に対して正の方向に成長する。根では,その先端にある ウ が重力の感知に関わる。ウ では,細胞小器官であるアミロプラストが平衡石として重力の方向を感知するのにはたらく。図 2 A は,重力の方向にまっすぐ伸びる根を示す。地上部で作られたオーキシンは,根の中心柱を通って ウ まで運ばれるが,ここで方向を変え,中心柱の外側の細胞を通って,根の伸長領域に達する。この植物を横倒しにすると,アミロプラストが新しい重力方向に移動し,植物は重力方向の変化を感知する(図 2 B)。その結果,オーキシンは根の重力方向側の細胞に多く分配されるようになる。これは,オーキシンの③極性移動による。根の重力方向側の細胞では,オーキシンの濃度が高くなり,成長が抑制されるため,根は重力方向に屈曲する。
問 3 文中の ウ に当てはまる適切な語句を記せ。
問 4 下線部③に関して,オーキシンの極性移動に関わる仕組みを,以下の 3 つの用語をすべて用いて説明せよ。
取り込み輸送体, 拡散, 排出輸送体
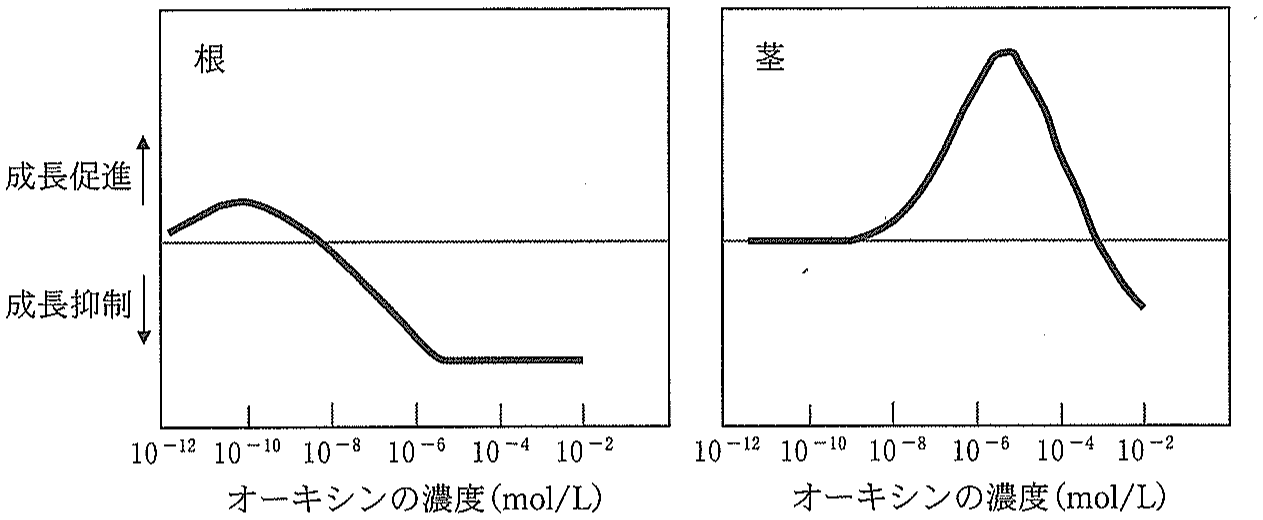
問 5 横倒しにした植物の茎では,オーキシンは根と同様,重力方向側の細胞に多く分布する。しかし,茎は重力に対して負の屈性を示す。図 3 は,様々な濃度のオーキシンで処理したときの,ある植物の根と茎の成長に対する影響を示したものである。この図を見て,茎が重力に対して負の屈性を示す理由を説明せよ。
問 6 根は,葉緑体をもたず,光合成を行わない。根の細胞が,どのように ATP を得るのかを説明せよ。
生物問題 Ⅳ
次の文章(A),(B)を読み,問 1 〜問 7 に答えよ。解答はすべて所定の解答欄に記入せよ。
(A) 光合成生物は多様であり,水圏では藻類が光合成を介した生産者としての役割を担っている。シアノバクテリアを除くと,すべての藻類は真核生物であり,陸上植物と同様にこれらの光合成は葉緑体で行われる。緑藻類は,葉緑体内にクロロフィル ア とクロロフィル イ,カロテノイドである ウ とカロテンをもつ緑色の藻類である。この色素の組み合わせは,緑藻類が陸上植物と系統的に近縁であることとよく一致している。緑藻類および陸上植物,そしてアサクサノリを含む エ はアーケプラスチダと呼ばれる生物群に属する。アーケプラスチダに属する生物がもつ葉緑体は,従属栄養性であったアーケプラスチダの祖先で起きたシアノバクテリアの オ に由来する。アーケプラスチダに属する生物間でも光合成に利用しやすい光波長は異なっており,①緑藻類や陸上植物が比較的利用しにくい波長域の光も,エ の多くは光合成に効率的に利用することができる。これは,エ が②フィコビリソームと呼ばれる,類似したアミノ酸配列をもつ複数の異なるタンパク質から構成される集光性アンテナ色素タンパク質複合体をもつことが理由の一つである。アーケプラスチダ以外にも,ミドリムシやケイ藻類,渦鞭毛藻類といった葉緑体をもつ藻類が知られる。このように③葉緑体はアーケプラスチダ以外の多様な真核生物にも存在するが,すべての葉緑体の起源はシアノバクテリアであると考えられている。
問 1 文中の ア 〜 オ に当てはまる適切な語句またはアルファベットを記せ。
問 2 下線部①の波長域に該当する色として最も適切なものを,青,緑,オレンジ,赤の 4 色より 1 つ選び記せ。
問 3 下線部②に関して,フィコビリソーム構成タンパク質の遺伝子の多くは遺伝子重複と遺伝情報の変化によって生じたことがわかっている。
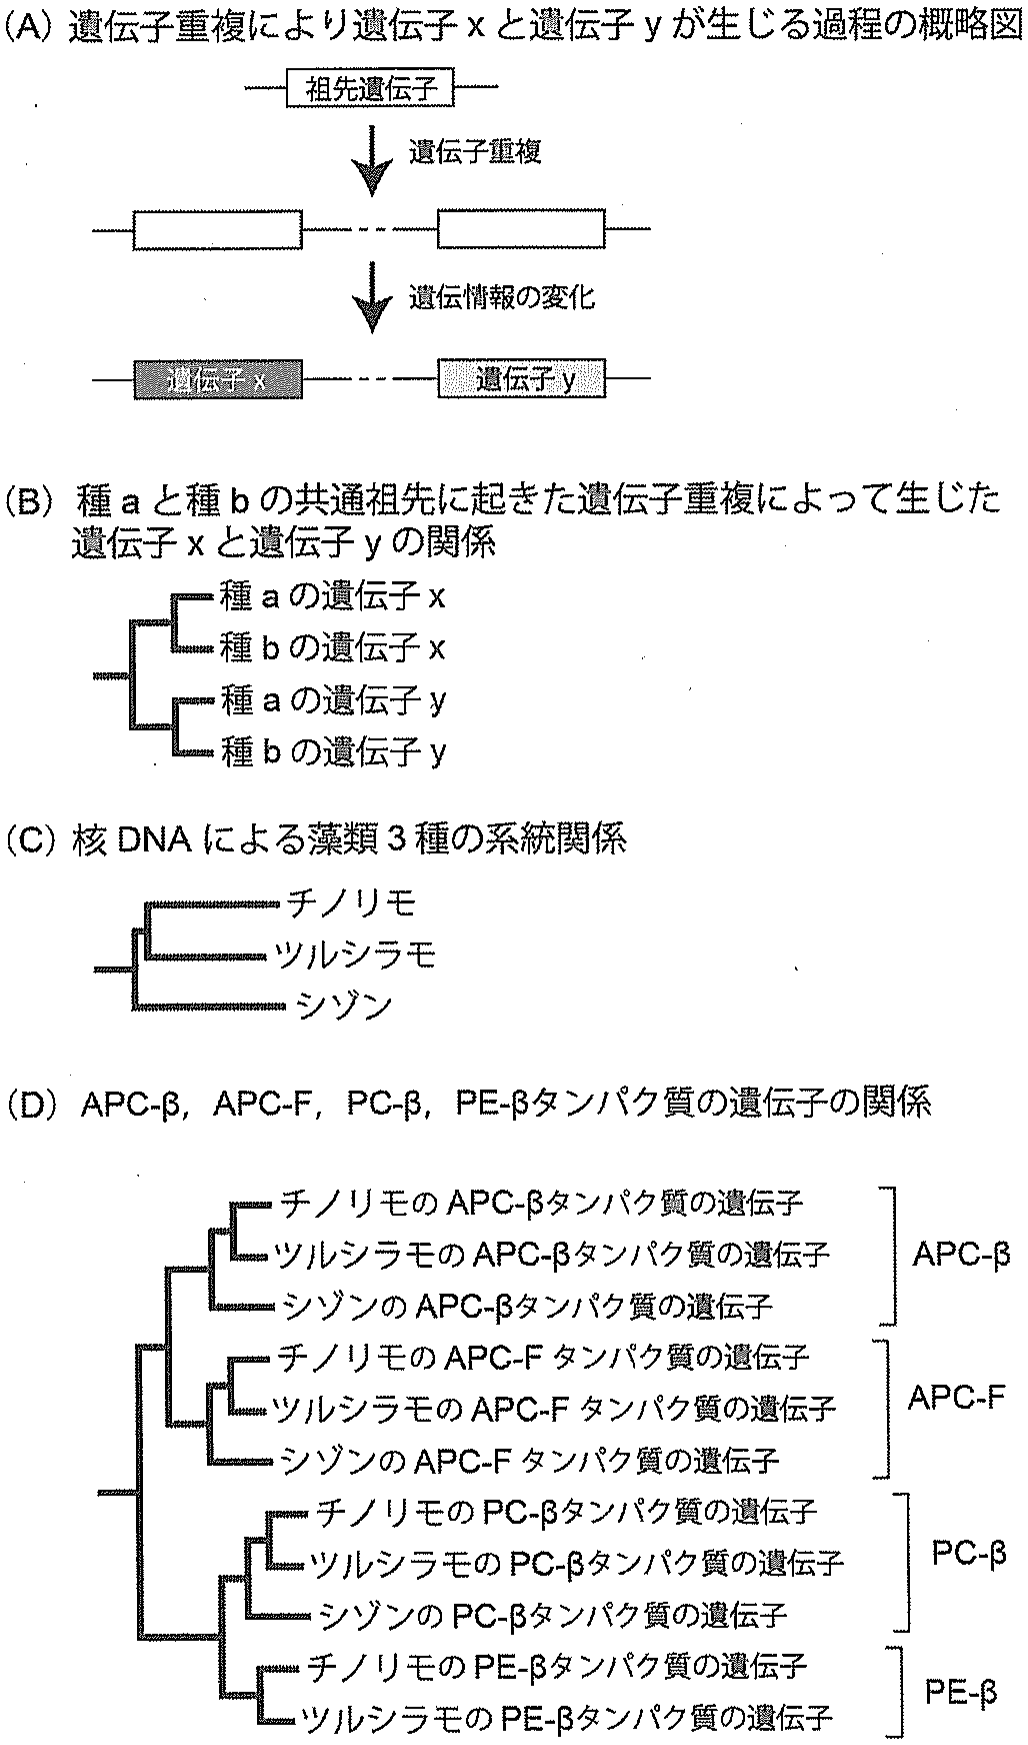
分子系統樹は,生物の系統関係のみならず,遺伝子の進化を知る上でも有用である。例えば図 1 (A)のように,遺伝子重複を経て遺伝子 x と遺伝子 y を生じる進化が,ある生物の種 a と種 b の共通祖先に起きた場合,分子系統樹における,遺伝子 x と遺伝子 y の関係は図 1 (B)のようになると考えられる。
フィコビリソームをもつ 3 種の藻類の系統関係を核 DNA の分子系統解析により調べたところ図 1 (C)のようになった。つぎに,これら 3 種がもつすべてのフィコビリソーム構成タンパク質の遺伝子塩基配列を決定した。そして,それらの遺伝子進化を調べるため,遺伝子塩基配列から推定したタンパク質アミノ酸配列を用いて分子系統解析を行った。フィコビリソーム構成タンパク質の遺伝子の分子系統樹において,APC–β,APC–F,PC–β,PE–β タンパク質の遺伝子の関係は図 1 (D)のようになった。図 1 (C),(D)に関する以下の(あ)〜(く)の記述で誤っているものをすべて選び,その記号を記せ。なお,個体間や種間を遺伝子が移動する現象は考慮しないものとする。
(あ) ツルシラモはチノリモよりもシゾンと近縁である。
(い) 4 つのタンパク質の遺伝子の中で最も早く誕生した遺伝子は決定できない。
(う) 4 つのタンパク質の遺伝子は,共通の祖先遺伝子をもつ。
(え) 3 種の藻類のうち,シゾンのみ PE–β タンパク質の遺伝子を欠く。
(お) 3 種の藻類の共通祖先は,APC–β,APC–F,PC–β タンパク質の遺伝子をすべて有しており,これら 3 つの遺伝子すべてが 3 種の藻類に遺伝した。
(か) APC–β タンパク質の遺伝子は,PC–β タンパク質の遺伝子よりも APC–F タンパク質の遺伝子と近縁である。
(き) PE–β タンパク質の遺伝子は,シゾンの系統から分かれた後に他 2 種の共通祖先において遺伝子重複した PC–β タンパク質の遺伝子が起源である。
(く) 図 1 (D)から読み取れる遺伝子重複の回数は 1 回である。
問 4 ミドリムシやケイ藻類,渦鞭毛藻類は,それぞれトリパノソーマ,卵菌類,ゾウリムシを含む異なる従属栄養性真核生物の系統と近縁であることが核 DNA を用いた分子系統樹によってわかっている。この点に留意し,下線部③はどのような進化過程で説明できるか,「葉緑体の獲得」という点から記せ。ただし,真核生物進化の過程において,以下 2 つを仮定するものとする。
仮定 1 シアノバクテリアが葉緑体になる進化がアーケプラスチダでのみ起こり,その他の真核生物では起こらなかった。
仮定 2 問題文中の従属栄養性真核生物の系統は,一度も葉緑体を保持したことがない。
(B) 自然界の生物はある一定の地域に生息する同種の個体の集まりである個体群として特有の性質を持っている。個体群の大きさが変動する様子を観察することで,同種の個体間での関係,異種間の関係,環境の影響などを検討することができる。個体群の大きさを把握する際,面積の大きい地域では全数調査による個体数の把握が難しく,一部のサンプルから個体数を推定する方法がとられる。個体数を推定する方法として,区画法と標識再捕法がある。区画法では,ある地域を一定面積の区画に区切り,調査対象となったいくつかの区画内の個体数を数える。区画内の個体数の平均値から比例計算によって,その地域の個体数を推定する。標識再捕法では,最初に一定数の個体を捕獲し標識をつけて元の個体群に戻す。ある期間の後に,再度,個体を捕獲し,標識がついた個体数を数える。2 回目の捕獲時に標識がついていた個体の割合から,その地域の個体数を推定する。
問 5 区画法による個体数調査が適した生物の特徴を記せ。
問 6 区画法によって推定された個体数が地域の個体数を反映しない場合がある。その理由について,①調査対象とする区画の数,②区画の大きさの 2 つの観点からそれぞれ説明せよ。
問 7 標識再捕法を用いて,ある個体群の個体数を推定する際に(a)〜(d)のような問題が生じてしまった場合,標識を付けた時点での個体数の推定結果は,過大評価されるか,過小評価されるかのどちらかである。それぞれの場合について,過大評価される場合は「過大」,または過小評価される場合は「過小」と記入することで解答せよ。
(a) 1 回目と 2 回目捕獲の間に,標識の外れた個体がいた。
(b) 1 回目と 2 回目捕獲の間に,調査地域外から調査地域に個体が移入した。
(c) 1 回目と 2 回目捕獲の間に,標識された個体が死亡した。
(d) 2 回目の捕獲時に,非標識個体よりも標識個体に偏って捕獲された。
生物問題は,このページで終わりである。