第1問
次の文章を読み,以下の設問に答えよ。
文 1
生殖細胞以外の細胞に後天的におきた突然変異を体細胞変異と呼ぶ。体細胞変異をもつ細胞が分裂して生まれた娘細胞は同じ体細胞変異をもつ。したがって,われわれの体は,異なる体細胞変異を後天的に獲得したさまざまな細胞の集まりとしてとらえることができる。「がん(癌)」は,細胞の増殖を調節する遺伝子などに複数の体細胞変異が生じた細胞が異常に増殖した結果おきると考えられている。
血液は全身に酸素や栄養分を運搬する重要な体液であり,赤血球・白血球・血小板といった多様な血液細胞を含む。哺乳類の成体では,骨髄に存在する造血幹細胞が分裂および分化することにより血液細胞が産生される。同一の体細胞変異をもつ血液細胞が末梢血液(体中をめぐっている血液)の細胞集団の大部分を占有する現象をクローン性造血という。クローン性造血は病気の症状がなく血液検査の結果が正常な人でもみられるが,クローン性造血がみられると,血液のがんや心臓および血管の病気がおきやすいことから,医学分野で最近注目されている。
がんや血液の細胞集団の大部分が同一の体細胞変異をもった細胞によって占められているかどうかを推定する手法として,X 染色体の不活性化に注目した手法がある。文 2 と文 3 では,この手法を紹介する。
ヒトの染色体のうち,性の決定に関わる 1 対の染色体は (ア) と呼ばれる。残りの (イ) 対の染色体は (ウ) と呼ばれる。女性は X 染色体を 2 本もつが,女性の細胞では,胎生期に父由来もしくは母由来の X 染色体のどちらかがランダム(無作為)に DNA のメチル化などを通じて不活性化される。この片方の X 染色体の不活性化は以降の細胞分裂後も安定的に維持される。
設問(1):文中の空欄 (ア) 〜 (ウ) に適切な用語または数字を記入せよ。
文 2
X 染色体上の遺伝子 A について以下の実験を行い,造血幹細胞の X 染色体不活性化の状態を検証した。
(1) まず,病気の症状のない健康な女性について,骨髄から 1 個の造血幹細胞を回収し,シャーレの中で約 100 個の細胞まで分裂させ,DNA を抽出した。
(2) 次に,抽出した DNA について,HpaII という制限酵素で処理したものと処理していないものを用意し,図 1 に示すプライマーを用いて PCR 法を実施し,PCR 産物の電気泳動を行った。以下の条件 1〜4 に注意して実験を行った。
(条件 1)制限酵素 HpaII は CCGG という配列を認識して切断する。CCGG 配列は図 1 のように遺伝子 A の内部に存在する。ただし,不活性化された X 染色体上の CCGG 配列はメチル化されているため HpaII によって切断されない。メチル化されていない CCGG 配列は HpaII によって完全に切断される。
(条件 2)遺伝子 A の内部には CAG という 3 塩基の繰り返し配列がある。この繰り返しの数が個人ごとに異なり,父由来と母由来の X 染色体でも違うことが多い。
(条件 3)遺伝子 A の CCGG 配列に変異はなく,細胞培養や PCR 法の途中で CCGG 配列および CAG 繰り返し配列の変異や繰り返しの数の変化はおきない。
(条件 4)PCR 法の増幅効率は一定であり,PCR 産物のバンドの太さと鋳型 DNA の量は比例する。
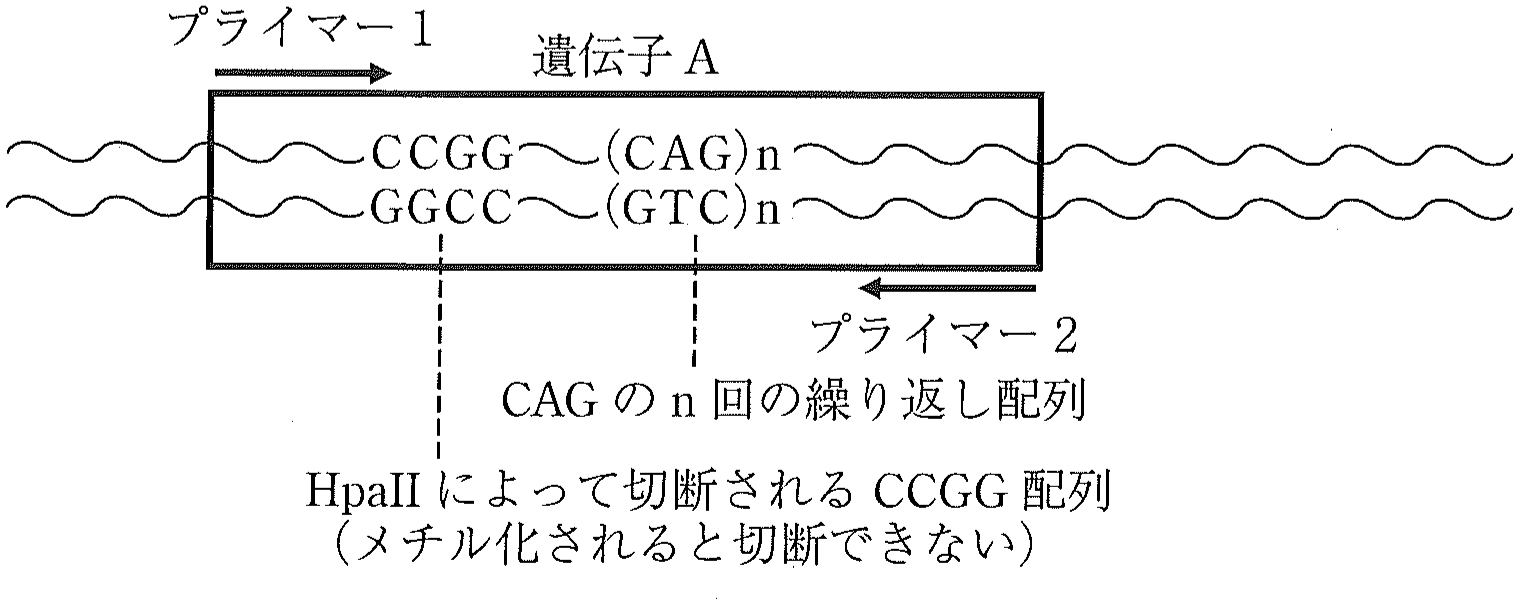
図 1 遺伝子 A の構造とプライマーの位置
設問(2):この実験の電気泳動の結果,制限酵素処理なしのサンプルは図 2 の左から 1 番目のバンドパターンを示した。この女性では父由来の X 染色体の CAG 繰り返し配列が,母由来の X 染色体の CAG 繰り返し配列より長く,かつ,この造血幹細胞では母由来の X 染色体がメチル化されていた。制限酵素処理ありのサンプルのバンドパターン(図 2 の点線部分)として適切なものを図 2 のバンドパターン(a)〜(h)から選べ。
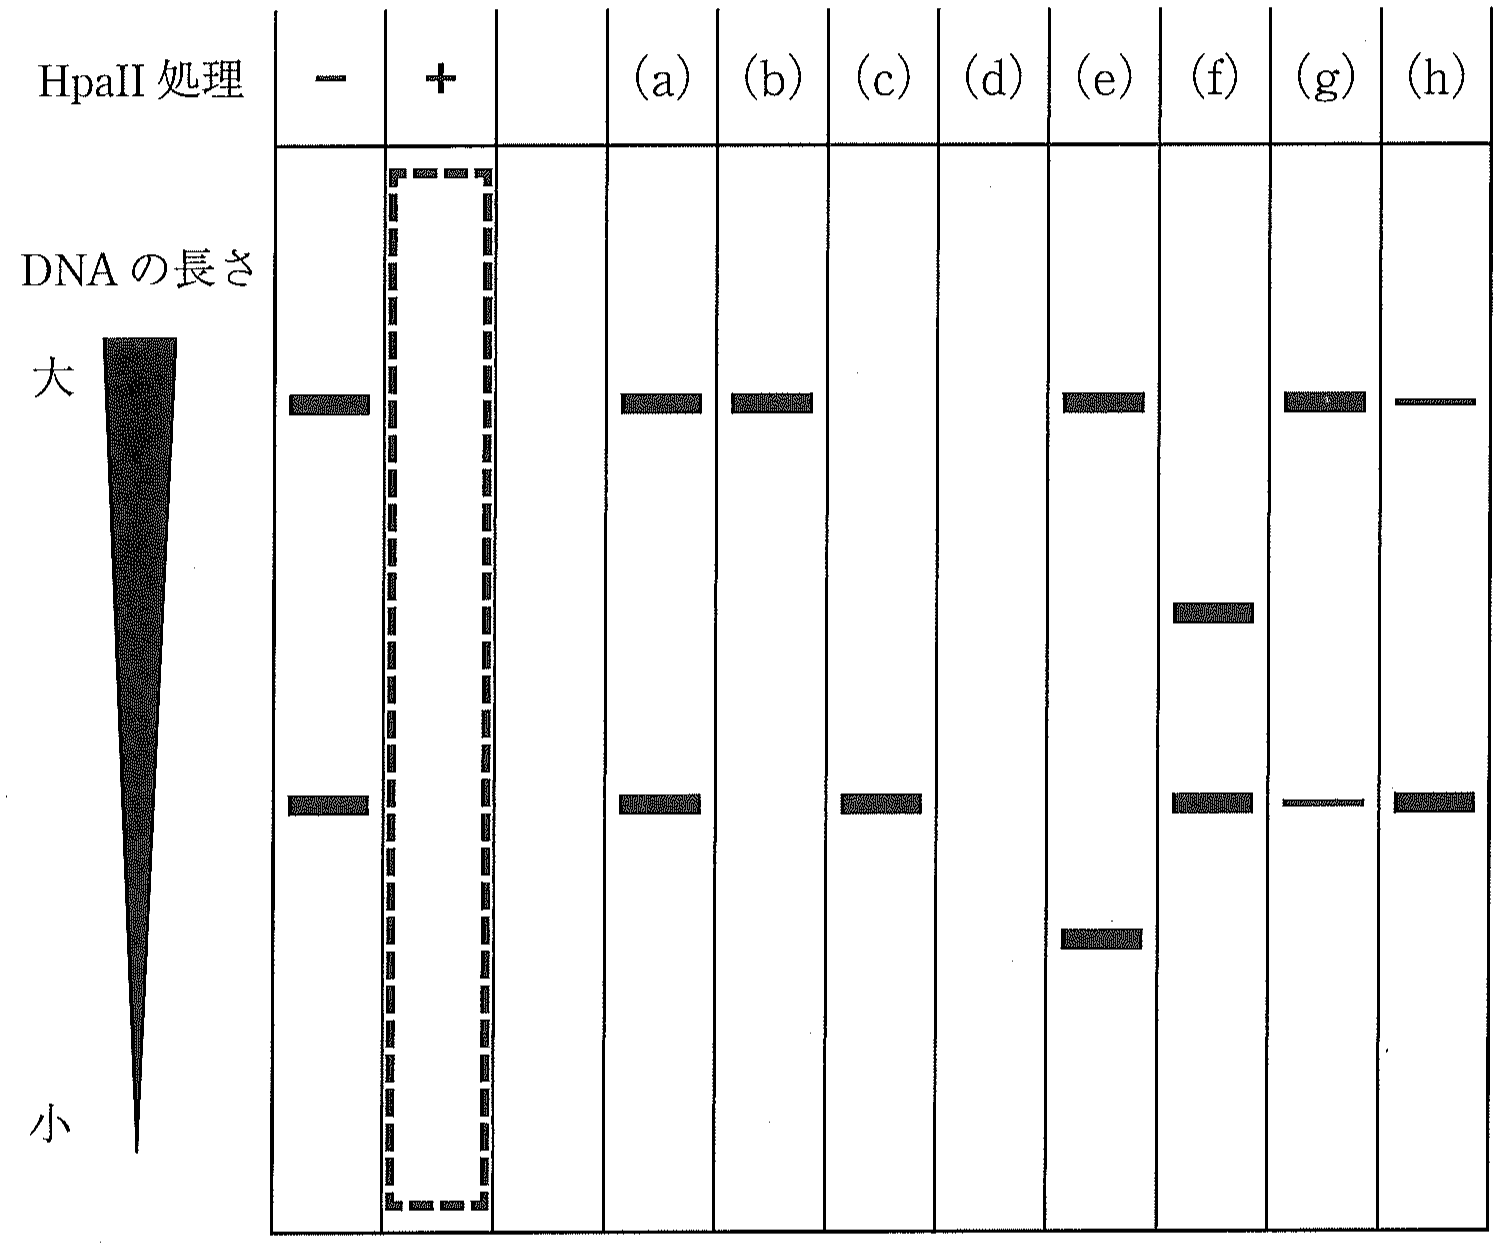
図 2 電気泳動の実験結果(−:制限酵素処理なし,+:制限酵素処理あり)
文 3
続いて,病気の症状のない 20 歳の女性 5 人と 70 歳の女性 5 人について,末梢血液の約 1 万個の白血球から DNA を抽出した。抽出した DNA について,文 2 の(2)と同じ手法で実験を行った。図 3 に PCR 産物の電気泳動の結果を示す。なお,70 歳の女性⑨と⑩は一卵性双生児である。
制限酵素処理ありのサンプルの上と下のバンドの太さを正確に定量したところ,表 1 のようになった。
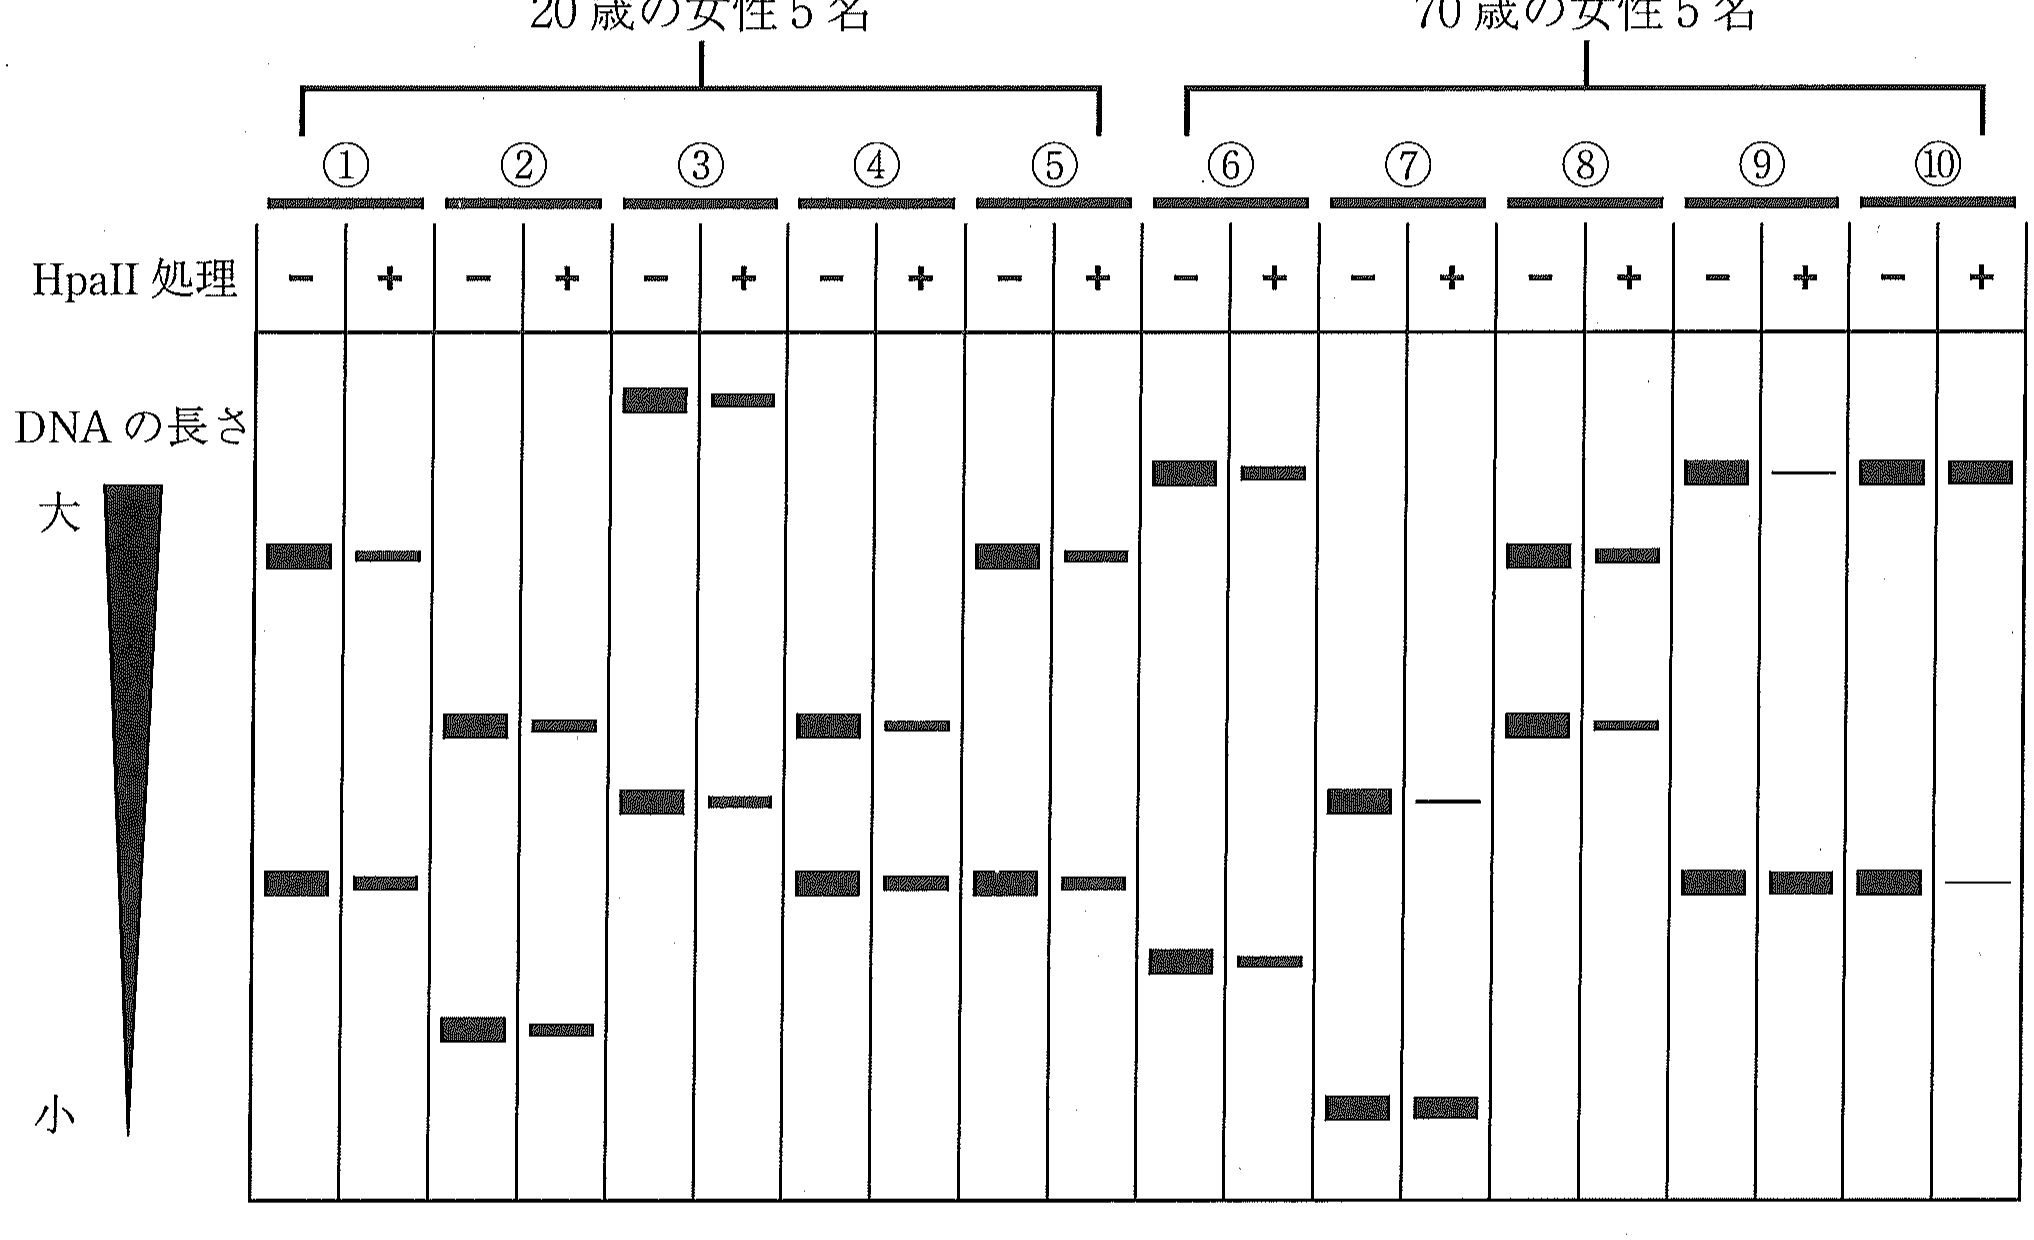
図 3 女性 10 人の電気泳動の実験結果(−:制限酵素処理なし,+:制限酵素処理あり)
表 1 図 3 の制限酵素処理ありのサンプルの上と下のバンドの太さの定量結果
| ① | ② | ③ | ④ | ⑤ | ⑥ | ⑦ | ⑧ | ⑨ | ⑩ | |
| 上のバンド | 1.3 | 1.5 | 1.6 | 1.2 | 1.4 | 1.7 | 0.4 | 1.8 | 0.3 | 2.8 |
| 下のバンド | 1.7 | 1.5 | 1.4 | 1.8 | 1.6 | 1.3 | 2.6 | 1.2 | 2.7 | 0.2 |
(①〜⑤ は 20 歳の女性 5 名,⑥〜⑩ は 70 歳の女性 5 名)
設問(3):表 1 に関する考察を記した下記の文中の空欄 (エ),(オ) にあてはまる最も適切な数字を解答欄に記入せよ。また,空欄 (カ) にあてはまる女性①〜⑩の番号として考えられるものをすべて選び,解答欄に記入せよ。
(考察)表 1 を用いて,父由来の X 染色体が不活性化された白血球の数と,母由来の X 染色体が不活性化された白血球の数の比の値を計算することができる。この比の値を R 値とよび,大きい方の数を小さい方の数で除することにより 1 以上の値として計算することとする。
胎生期に X 染色体はランダム(無作為)に不活性化されるため,①骨髄に存在する多数の造血幹細胞の 50 % で父由来の X 染色体が不活性化され,残りの 50 % で母由来の X 染色体が不活性化されていると考えられる。この造血幹細胞の集団の中のごく一部が白血球を産生している。1 つ 1 つの造血幹細胞が同じ数の白血球を産生すると仮定すると,R 値は (エ) に近い値となる。
図 3 の (オ) 歳の女性 5 人では下線部①の状態が比較的維持されていると考えられる。一方で,女性 (カ) では R 値が 5 以上となっている。②下線部①の状態がさまざまな理由で破綻すると,R 値が上昇することが予想される。
設問(4):下線部②についてどのような場合に R 値が上昇しやすいか,造血幹細胞の性質と造血幹細胞の集団の規模(細胞数)の観点から考察し,解答欄の枠内で述べよ。造血幹細胞の性質に関する考察を解答欄の 1 に,造血幹細胞の集団の規模(細胞数)に関する考察を解答欄の 2 に記述すること。
文 4
文 3 のような研究がきっかけとなり,クローン性造血が予想以上に多くの人でみられることが明らかになった。クローン性造血がみられる女性 20 人について血液細胞のゲノム解析を行ったところ,そのうち 5 人で遺伝子 B の中に体細胞変異が発見された。
遺伝子 B は遺伝子の発現を調節する酵素をコードし,がんに関係することが知られている。遺伝子 B の体細胞変異が発見された女性 5 人のすべてで,遺伝子 B の対立遺伝子の両方に病的な変異が発見され,合計 10 種類の変異が同定された。これらの変異は,図 4 のように,遺伝子 B から作られるタンパク質のそれぞれ違う位置に対応しており,1 塩基の置換・欠失・挿入であった。なお,遺伝子 B は X 染色体以外の染色体上にある。
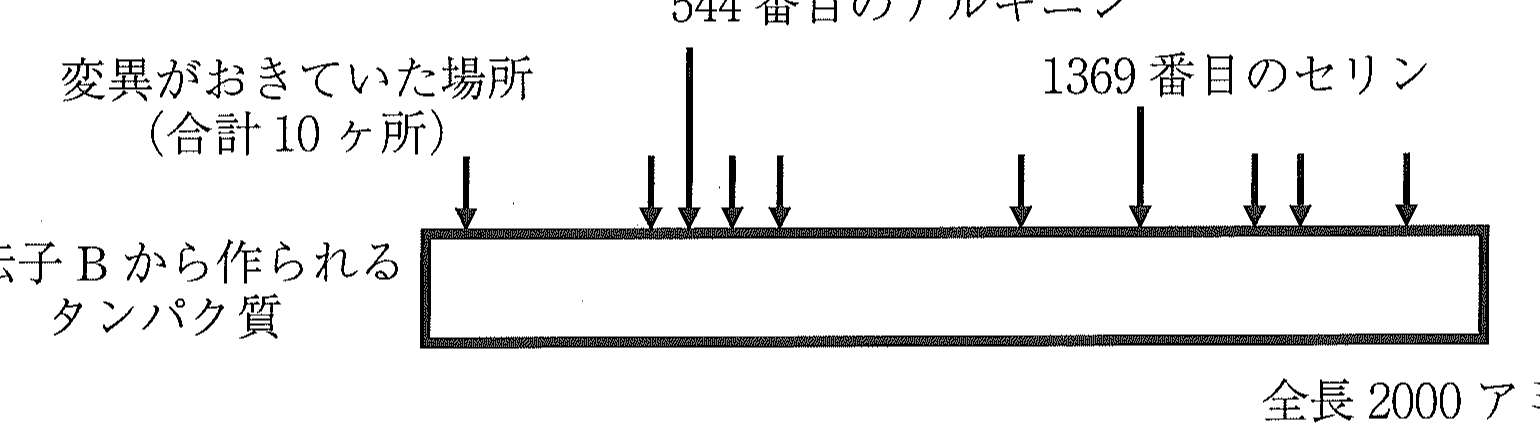
図 4 発見された遺伝子 B の変異と,遺伝子 B から作られるタンパク質の一次構造との対応関係
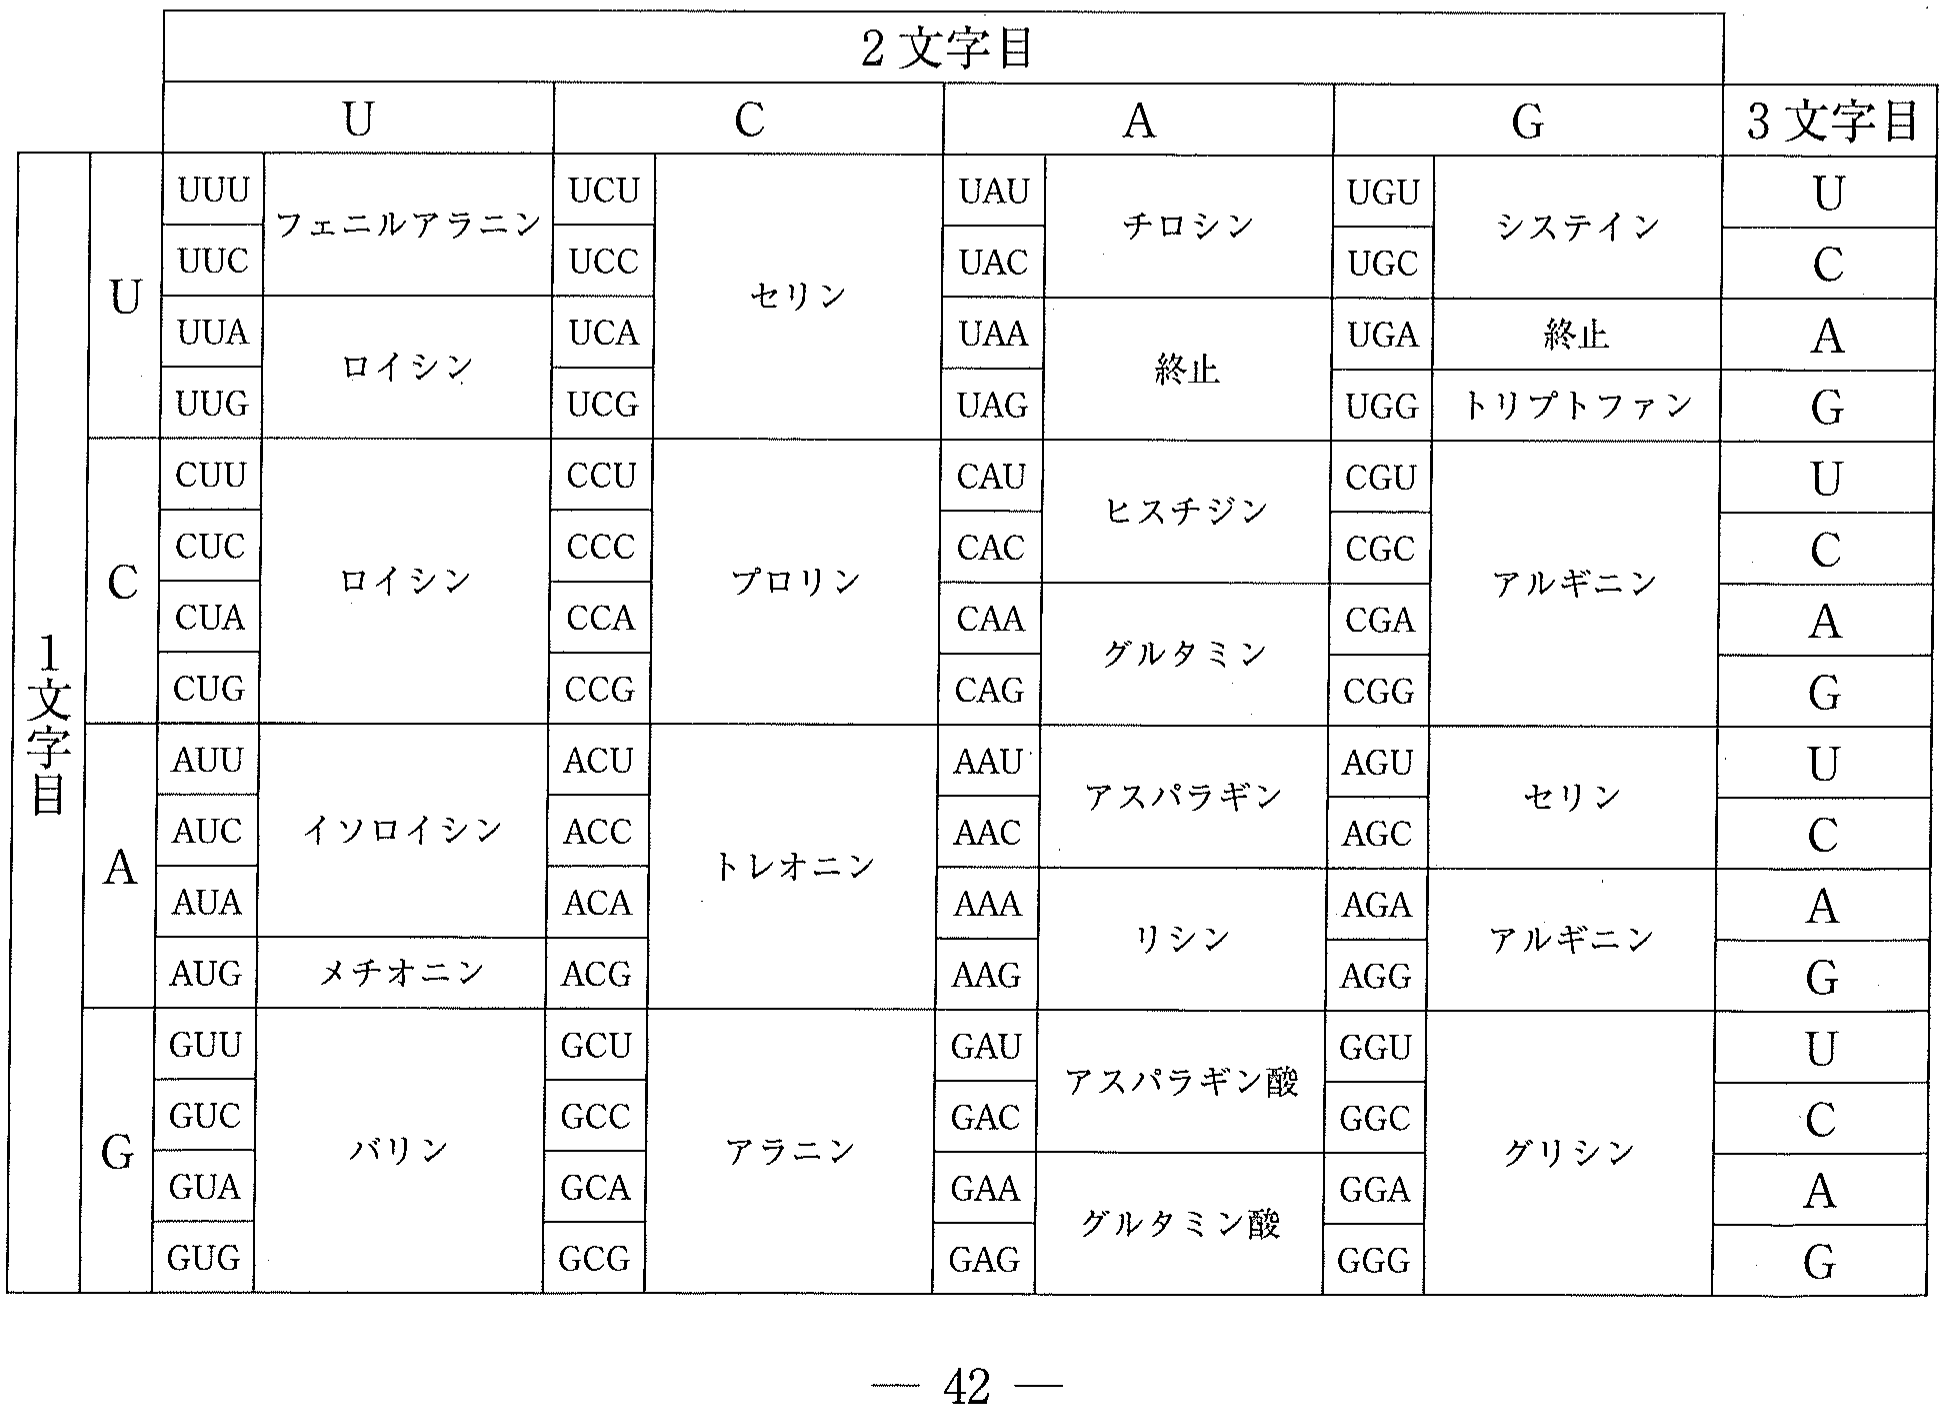
設問(5):図 4 の遺伝子 B のタンパク質産物の 544 番目のアルギニン,1369 番目のセリンに対応する正常な 3 塩基はそれぞれ AGA,TCA である。表 2 の遺伝暗号表を参考に,544 番目のアルギニン,1369 番目のセリンをコードする領域でみられた変異の組み合わせとして可能性の高いものを,選択肢の(a)〜(f)から 2 つ選べ。なお,選択肢の表内の x は欠失を意味する。
| 選択肢 | 544 番目のアルギニン(正常→変異) | 1369 番目のセリン(正常→変異) |
| (a) | AGA → AGGA | TCA → TCT |
| (b) | AGA → TGA | TCA → TAA |
| (c) | AGA → AAA | TCA → TCC |
| (d) | AGA → AGG | TCA → TCG |
| (e) | AGA → AxA | TCA → TACA |
| (f) | AGA → CGA | TCA → CCA |
表 2 遺伝暗号表
設問(6):遺伝子 B のはたらきとクローン性造血との関係に関して考察した下記の文中の空欄 (キ) 〜 (ケ) にあてはまる語句の組み合わせとして適切なものを,以下の選択肢(a)〜(h)から 1 つ選べ。
正常な遺伝子 B のタンパク質産物は,細胞の増殖を促進する遺伝子の発現を (キ) と考えられる。加齢に伴い遺伝子 B に変異が生じる確率は (ク) ため,高齢者ではクローン性造血がおきやすい。また,遺伝子 B の変異が発見された女性の子供はクローン性造血に (ケ)。
| 選択肢 | (キ) | (ク) | (ケ) |
| (a) | 活性化する | 高くなる | 高い確率でなりやすい |
| (b) | 活性化する | 高くなる | なりやすいとはいえない |
| (c) | 活性化する | 低くなる | 高い確率でなりやすい |
| (d) | 活性化する | 低くなる | なりやすいとはいえない |
| (e) | 抑制する | 高くなる | 高い確率でなりやすい |
| (f) | 抑制する | 高くなる | なりやすいとはいえない |
| (g) | 抑制する | 低くなる | 高い確率でなりやすい |
| (h) | 抑制する | 低くなる | なりやすいとはいえない |
設問(7):図 3 の女性⑨と⑩は一卵性双生児であり,父由来の X 染色体の CAG 繰り返し配列が,母由来の X 染色体の CAG 繰り返し配列より長い。
女性⑨と⑩の血液細胞の遺伝子 B の DNA 配列を調べたところ,遺伝子 B の対立遺伝子の両方に変異が発見された。合計 4 種類の変異はすべて異なる位置でおきていた。
女性⑨と⑩では,いずれも遺伝子 B の変異がみられた一方で,図 3 の制限酵素処理ありのサンプルで上と下のバンドのどちらが太いかが異なる。このバンドパターンの違いが生じた理由を解答欄の枠内で述べよ。なお,上と下のバンドの太さの違いは遺伝子 B の変異に由来するものとする。
第2問
次の文章を読み,以下の設問に答えよ。
文 1
動物の発生には,受精卵の細胞質に蓄積された mRNA などの (ア) 因子が必要である。さらに,胚の一部が他の領域にはたらきかけて分化を引き起こす。これを (イ) と言う。(イ) を受けた細胞内では (ウ) と呼ばれる特定の DNA 配列に調節因子が結合し,標的遺伝子の発現を協調して制御している。また,不要な細胞は (エ) により自ら死んで除去され,複雑な発生過程が正常に進行する。
尾は脊椎の末端部分に由来するが,脊椎骨などに分化する (オ) 胚葉の形成に関わる調節因子である遺伝子 *O* は哺乳類の尾の長さを決定することが示されている。
設問(1):文中の空欄 (ア) 〜 (オ) に適切な用語を記入せよ。
文 2
多くの猿は尾をもつが,チンパンジーやゴリラなど類人猿はヒトと同様に尾をもたない。類人猿が尾をもたない原因を明らかにするために,類人猿および類人猿以外の猿のゲノム配列を比較した。その結果,ヒトと類人猿のみに存在する配列(領域 1)が遺伝子 *O* のイントロンの中に発見された(図 1)。領域 1 は Alu と呼ばれる霊長類特有の配列で転移因子(トランスポゾン)の一種である。転移因子は自身と同じ配列を染色体上の別の位置に挿入する活性をもつ。領域 2 には尾がある種でも尾がない種でも Alu 配列が存在している。尾がない猿では領域 1 と領域 2 の Alu 配列は互いに逆向きに存在していた。
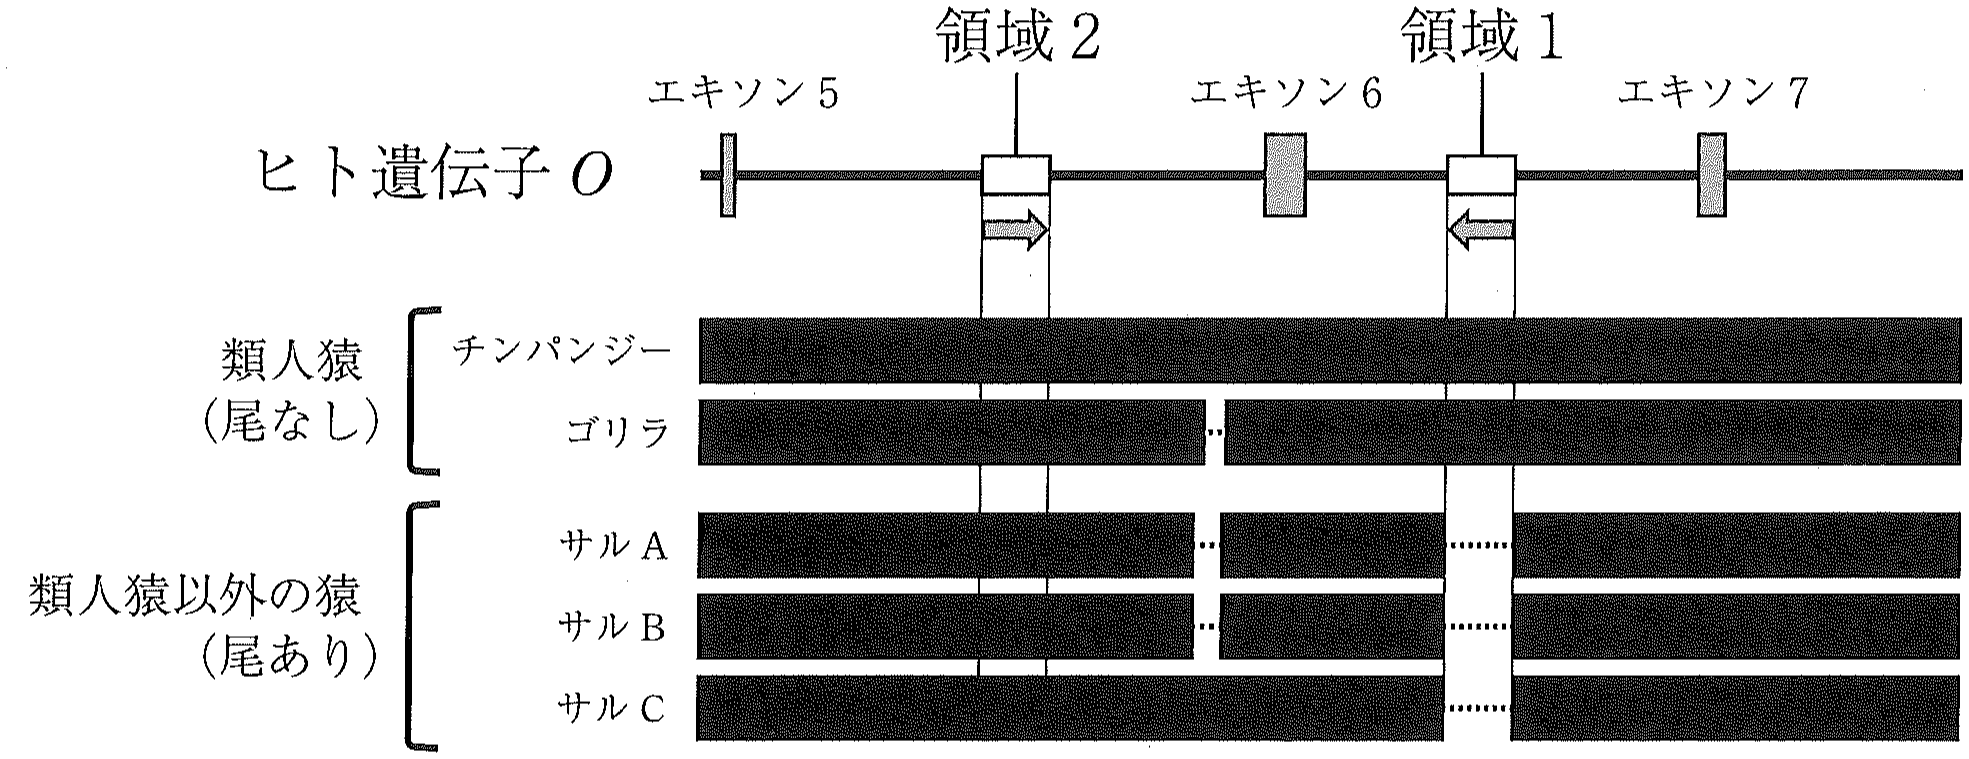
図 1 遺伝子 *O* のエキソン 5〜7 付近のゲノム比較 それぞれの種のゲノムをヒトのゲノムと比較し,ヒトと相同な配列部分を黒い四角で,ヒトに存在するがそれぞれの種で欠損している部分を点線で示した。領域 1 および領域 2 の下の矢印は Alu 配列の向きを示す。
(実験 1)
領域 1 の役割を調べるために,ヒト遺伝子 *O* を発現するヒトの培養細胞を用いた。ヒト細胞の遺伝子 *O* の mRNA を逆転写し,PCR によりその全長を増幅し,電気泳動で解析した。その結果,ヒト細胞では全長型に加え尾をもつ哺乳類には存在しない短い mRNA の存在が示された(図 2 レーン①:野生型ホモ接合体を *WT/WT* と表記)。この短い mRNA はエキソン 6 のみを欠失していた(以下「欠損型」と表記)。尾をもつ哺乳類では,エキソン 1〜8 がつながって出来る mRNA(以下「全長型」と表記)のみがみられた。そこで,欠損型 mRNA がヒト細胞で生じる原因を調べることにした。ヒト培養細胞に対してゲノム編集を行い,両方の対立遺伝子で領域 1 を除去(*D1/D1*),領域 2 を除去(*D2/D2*),領域 1 および領域 2 を除去(*D12/D12*)した細胞をそれぞれ作製した(図 3)。もとの細胞と同様に遺伝子 *O* の mRNA を解析した結果を図 2 に示した(レーン②〜④)。
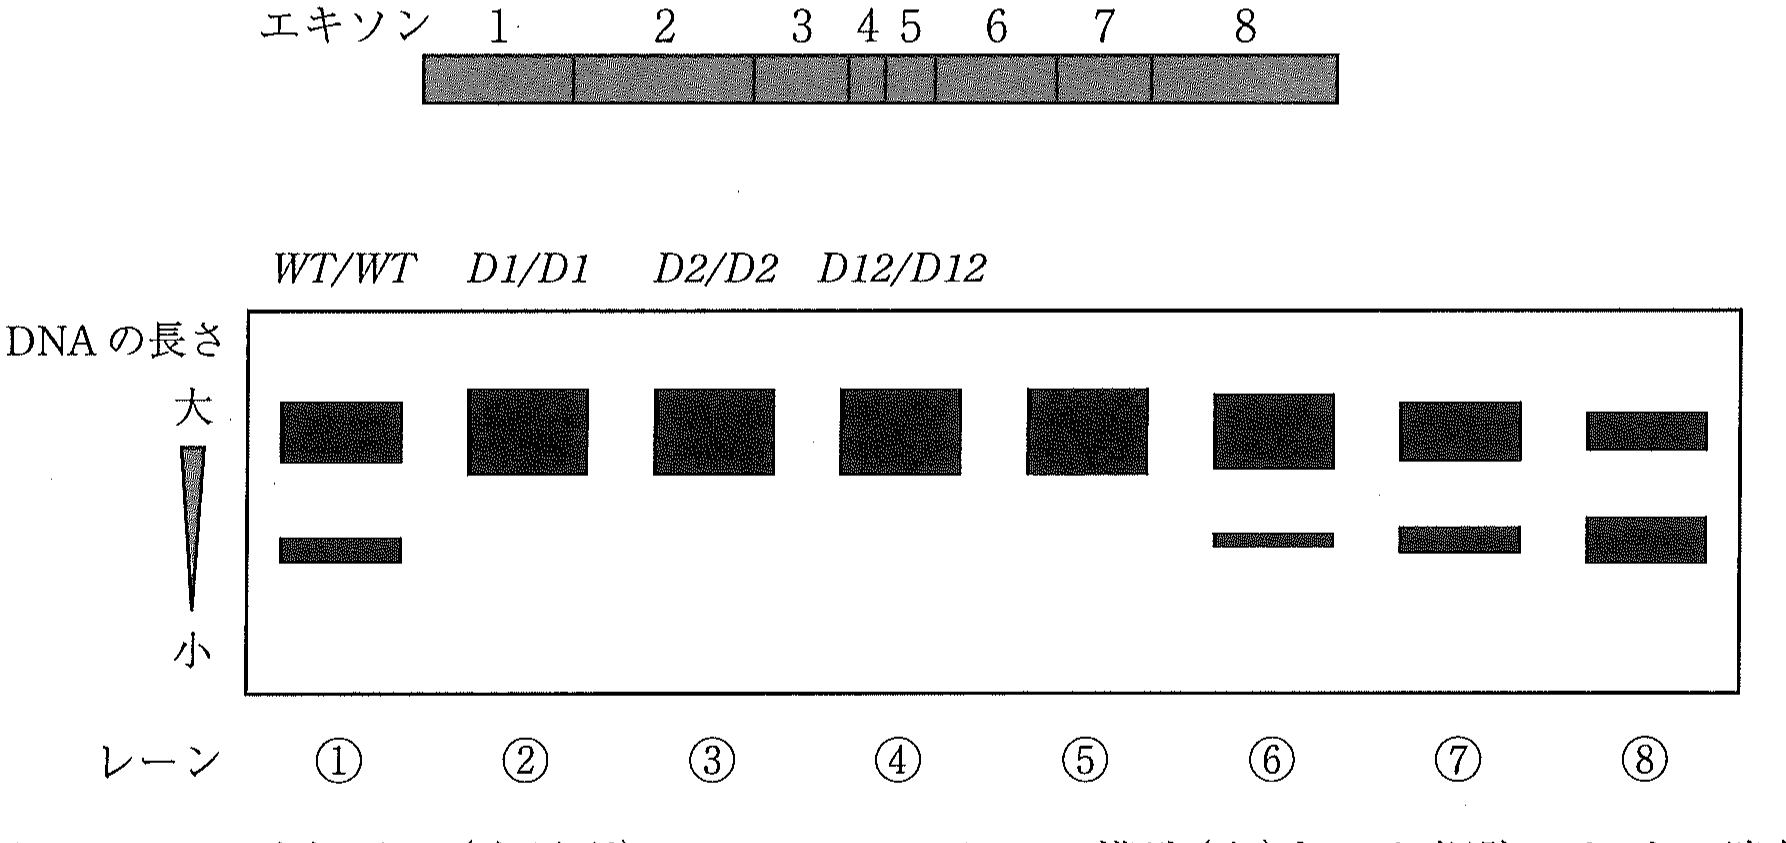
図 2 ヒト遺伝子 *O*(全長型)の mRNA のエキソン構造(上)とヒト細胞における遺伝子 *O* の PCR 産物の電気泳動の結果(下) それぞれのバンドの太さは細胞内にもともと存在した mRNA の量を反映するものとする。
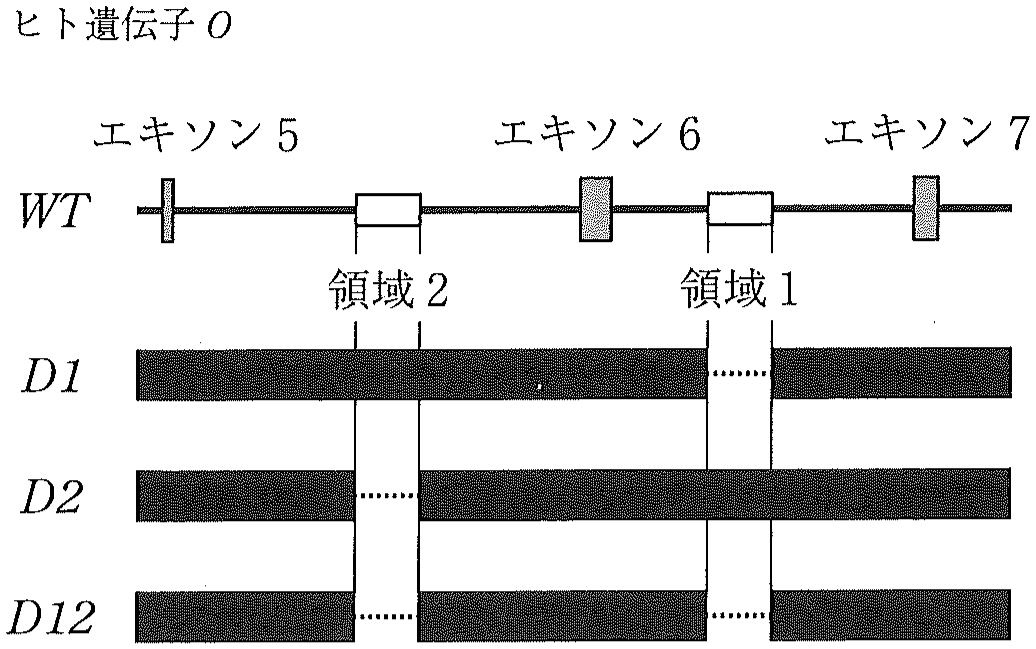
図 3 ゲノム編集を行ったヒト培養細胞の遺伝子構造 *D1*,*D2*,*D12* については,*WT* と同じ配列を黒い四角で,ゲノム編集により欠失させた DNA 配列を点線で示した。
設問(2):図 2 の結果に関する下記の文中の空欄 (カ) 〜 (ケ) に当てはまる適切な用語を以下のリストから選んで記入せよ。
ヒトおよび類人猿に存在する領域 1 は欠損型 mRNA が生じる上で (カ) である。また,尾の有無にかかわらず存在している領域 2 は欠損型 mRNA を生じる上で (キ) である。*WT/D12* 型の遺伝子をもった細胞の遺伝子 *O* の mRNA 解析の電気泳動パターンは図 2 のレーン (ク) であり,*D1/D2* 細胞のパターンは図 2 のレーン (ケ) である。
(用語リスト)・必要 ・不必要 ・⑤ ・⑥ ・⑦ ・⑧
文 3
マウスを用いて,遺伝子 *O* の欠損型 mRNA が尾の長さに与える影響を検討した。マウス遺伝子 *O* はヒト遺伝子 *O* と同じエキソンの並びをしているが,Alu 配列は存在しない。
(実験 2)
ゲノム編集により以下の改変遺伝子 *O* をもつマウスを作製した(図 4)。
*WT*:何も遺伝子操作していない野生型の遺伝子 *O*
*M1*:エキソン 6 を除去した遺伝子 *O*
*M2*:2 つの Alu 配列(領域 1 および領域 2)を合成し,イントロン 5 およびイントロン 6 に逆向きに挿入した遺伝子 *O*
*M3*:2 つの Alu 配列(領域 1 および領域 2)を合成し,イントロン 5 およびイントロン 6 に同じ向きに挿入した遺伝子 *O*
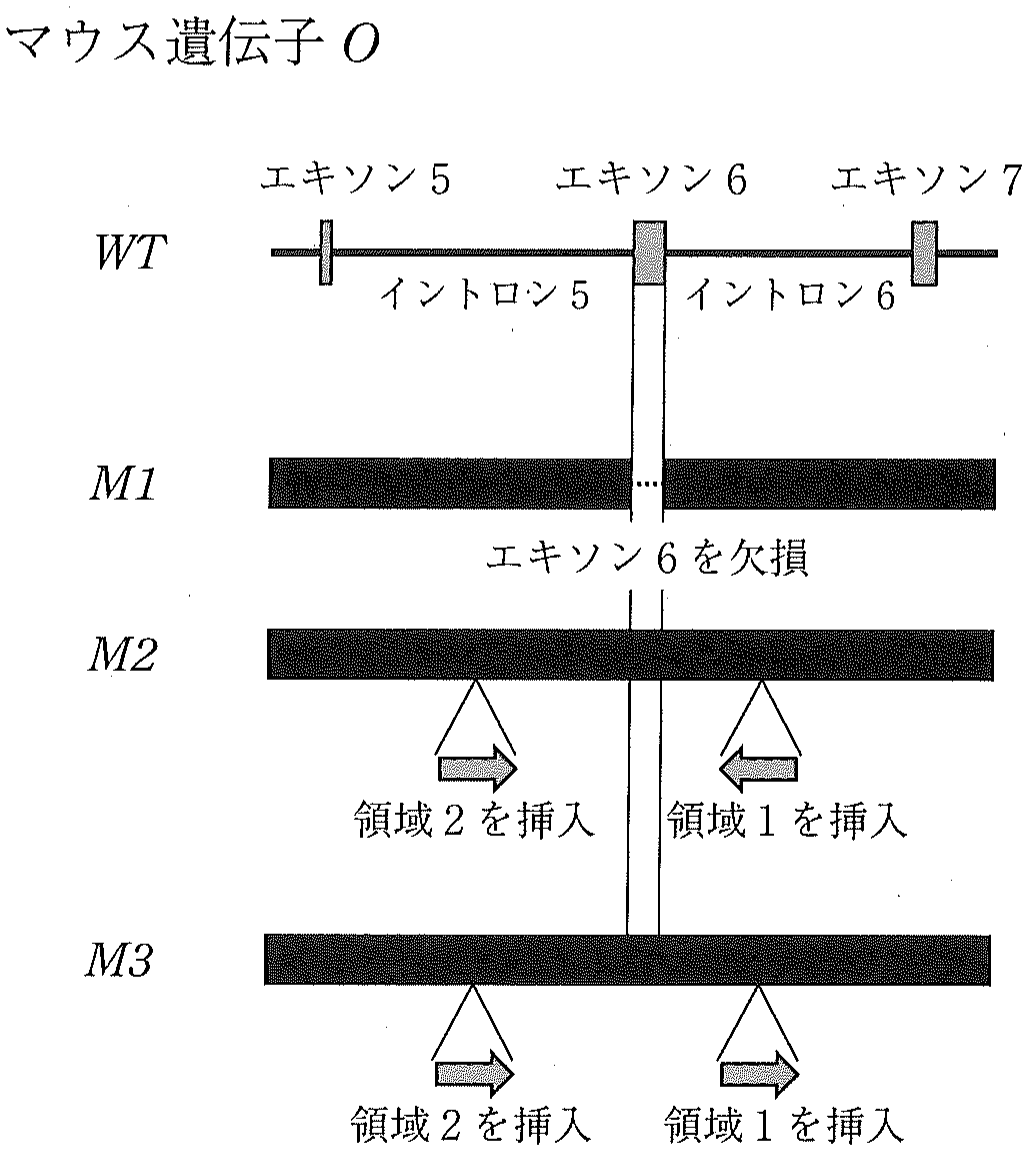
図 4 作製したゲノム編集マウスの遺伝子構造 *M1* については,点線部分を欠損させた。*M2*,*M3* については,図示した位置にヒトの領域 1 および領域 2 配列を挿入した。
これらのマウスの交配により,表 1 に示す遺伝子型のマウスを作製した。尾が成長する時期の胚におけるマウス遺伝子 *O* の mRNA の全長型と欠損型の割合および成長後の尾の長さを調べたところ,表 1 の結果が得られた。
表 1 遺伝子 *O* 改変マウスの実験結果
| 遺伝子型 | 全長型 mRNA(%) | 欠損型* mRNA(%) | 尾の長さ(%)** | 備考 |
| *WT/WT* | 100 | 0 | 100 | |
| *M1/M1* | 0 | 100 | 胚発生の途中で致死 | |
| *M2/M2* | 60 | 40 | 60 | |
| *M3/M3* | 100 | 0 | 100 | |
| *M1/M2* | 30 | 70 | 0 |
*欠損型:エキソン 6 のみを欠損した mRNA ***WT/WT* の尾の長さを 100 % とする
設問(3):表 1 の実験結果をもとに,(a)〜(d)の文章について正しいものには○を,誤っているものには×を解答欄に記せ。
(a) *M1/M2* 同士の交配により生まれた個体のうち尾をもたないのは約 50 % である。
(b) イントロン 5 に挿入した Alu 配列がイントロン 6 に挿入した Alu 配列と同じ方向の時に尾が短くなる。
(c) 遺伝子 *O* は尾の形成以外の発生過程にも関与している。
(d) 遺伝子 *O* の全長型 mRNA の占める割合が低いほど生まれてきた個体の尾が短くなる。
設問(4):スプライシングのしくみを説明した図 5 を参照し,ヒト遺伝子 *O* において欠損型 mRNA を生じるしくみを推定した下記の文章中の空欄 (コ) 〜 (ス) に適切な用語または数字を記入せよ。
ヒト遺伝子 *O* の領域 1 と領域 2 の配列の向きがゲノム中で (コ) 時に,mRNA 前駆体における領域 1 と領域 2 の配列は (サ) 的になり水素結合により部分的な二本鎖を形成する。これにより,エキソン 5 の 3′ 側が近づくことができるのがエキソン 6 の 5′ 側ではなくエキソン (シ) の 5′ 側となり,欠損型の mRNA が生成される。このように,1 種類の mRNA 前駆体から複数種の mRNA が生じることを (ス) 的スプライシングと言う。
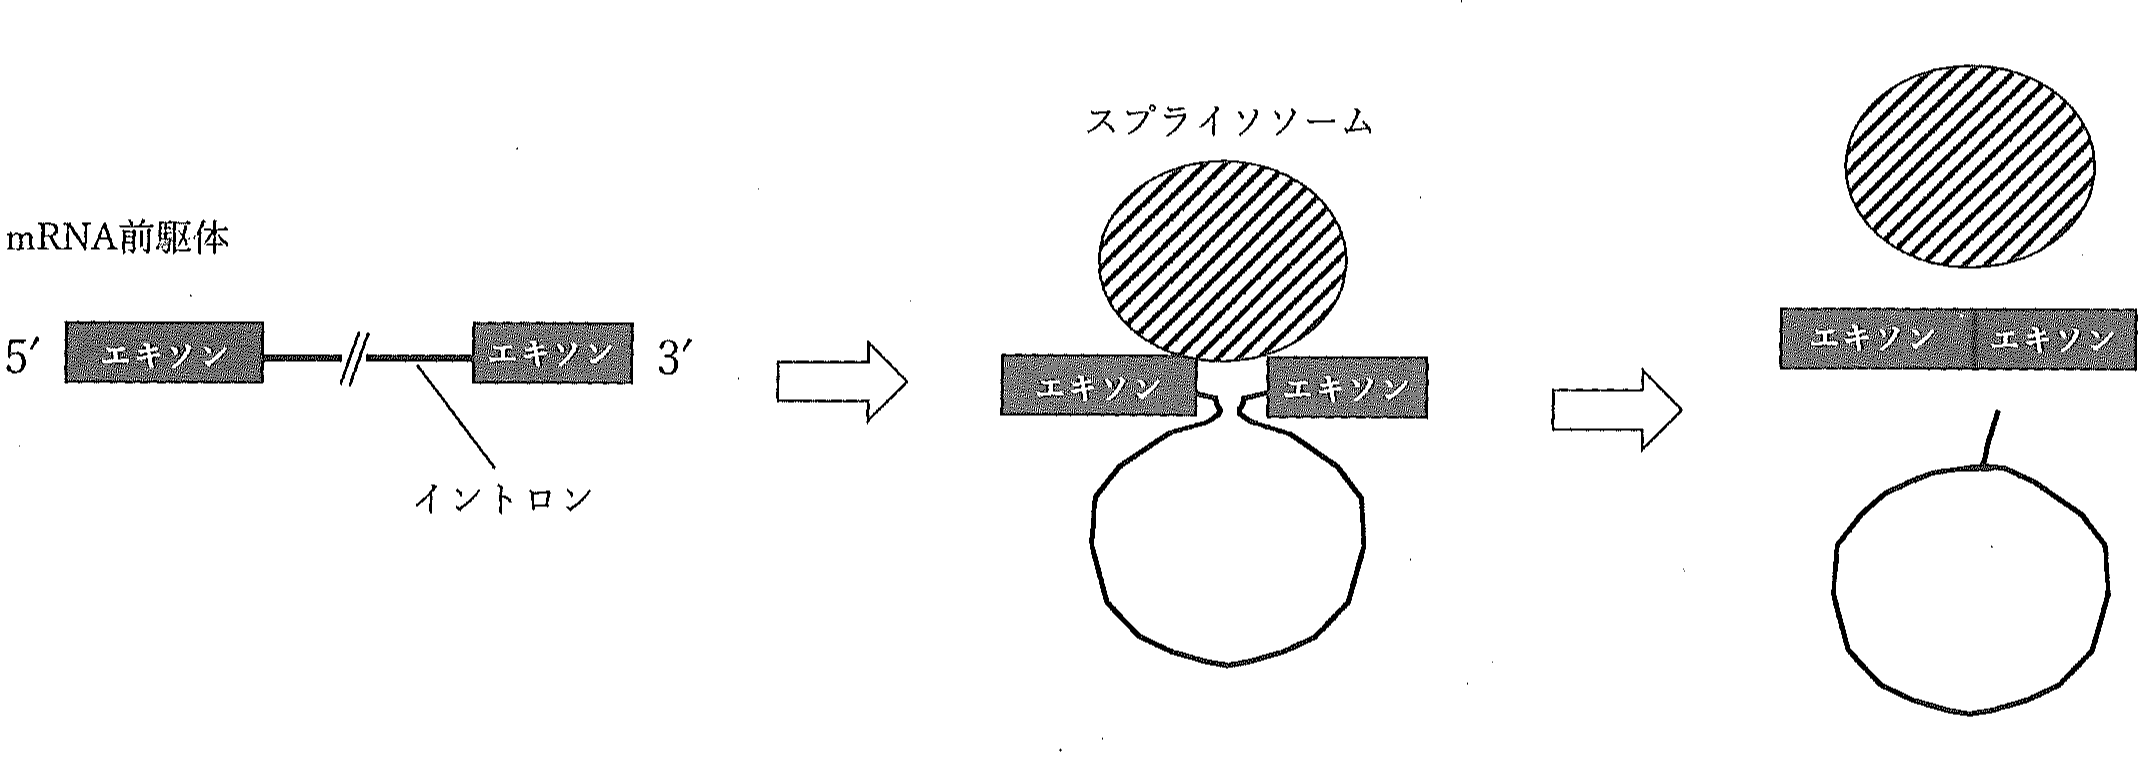
図 5 スプライシングのしくみ タンパク質と RNA からなるスプライソソームが,mRNA 前駆体の 2 つのエキソンの境界配列を認識して近接させ,RNA の切断と連結をおこすことでイントロンを切り出す。
設問(5):ヒトおよび類人猿が尾をもたなくなった進化過程を考察し,解答欄の枠内で述べよ。ただし,以下の 2 点を記述に含めること。 ・種の分岐と Alu 配列の挿入がおきた順序 ・遺伝子 *O* の欠損型 mRNA を生じる上での Alu 配列挿入の役割
第3問
次の文章を読み,以下の設問に答えよ。
文 1
藻類として海に現れた植物は,今から約 5 億年前陸上に進出し,地上での生育に適応するための進化を遂げてきた。現生陸上植物の中で最も繁栄し種類が多いのが被子植物である。被子植物の多様化をもたらした要因の一つに,花粉媒介のしくみを発達させたことがあげられる。
ナス科の植物 N は夜間にスズメガの媒介で受粉する虫媒花を咲かせる。植物 N はスズメガが活動する夜間に合わせて,①花弁を夕暮れの時刻に一斉に開き始め,夜が明けると花弁を閉じる。また,この植物の花は色や形の識別が困難な夜間に,花粉媒介に有益な昆虫を選択的に誘引するために,揮発性の物質(以下「誘引物質」と表記)を 1 日の特定の時間に放つことが知られている。
受粉を昆虫に依存する植物は,花弁の開閉や誘引物質の放出時刻を調節するメカニズムを発達させ,その一方で,花粉を媒介する昆虫は,花から放出される誘引物質を感知する感覚器を発達させた。②こうして,特定の被子植物と特定の送粉昆虫との間には,互いに有益と考えられる相互関係が築かれてきた。
設問(1):下線部①の屈曲反応の名称を答えよ。
設問(2):下線部②のように,2 種以上の相互作用する生物において,お互いの形質が選択圧になり,それぞれの行動や形態などが世代を超えて変化していくことを表す用語を答えよ。
文 2
植物には多様な 1 日周期の生理現象が認められるが,その中には,体内に備わった時計機構が刻む時間に従って制御される概日リズムが存在する。③誘引物質の放出時刻を調節するメカニズムにも概日時計機構が関与しているのだろうか? 21 時(午後 9 時)から 6 時(午前 6 時)までを夜間,それ以外の時間帯を日中とする光条件の下で,植物 N を一定の至適温度を維持しながら生育させ,その日に開花する花の一つから放たれた誘引物質の量を経時的に測定したところ,図 1(野生型)に示す結果が得られた。さらに,植物 N の時計機構が異常になった 2 種類の変異体(変異体 A および変異体 B)を用いて同様の測定を行ったところ④花から放出される誘引物質量の概日リズムに異常が認められた。
植物 N には,誘引物質の生合成を調節する遺伝子 X と遺伝子 Y が存在する。野生型において,遺伝子 X と遺伝子 Y の mRNA 量は,図 2(野生型),図 3(野生型)に示すように 24 時間周期で変化した。まず,遺伝子 X と遺伝子 Y との関係を理解するために,遺伝子 X の mRNA 量の日内変化を,遺伝子 Y の機能が失われた変異体 Y において経時的に測定し,図 2(変異体 Y)に示した。同様に,遺伝子 Y の mRNA 量の日内変化を,遺伝子 X の機能が失われた変異体 X において経時的に測定し,図 3(変異体 X)に示した。
次に,これらの遺伝子発現と概日時計機構との関わりを調べるために,時計機構が異常になった変異体 A の遺伝子 X の mRNA 量の日内変化を経時的に測定し,この結果を図 2(変異体 A)に示した。同様に,時計機構が異常になった変異体 A および変異体 B の遺伝子 Y の mRNA 量の日内変化を経時的に測定し,これらの結果を図 3(変異体 A および変異体 B)に示した。
さらに,遺伝子 X が誘引物質の放出量の調節にどのように関わっているかを理解するために,変異体 X における誘引物質の放出量を測定し,その結果を図 1(変異体 X)に示した。
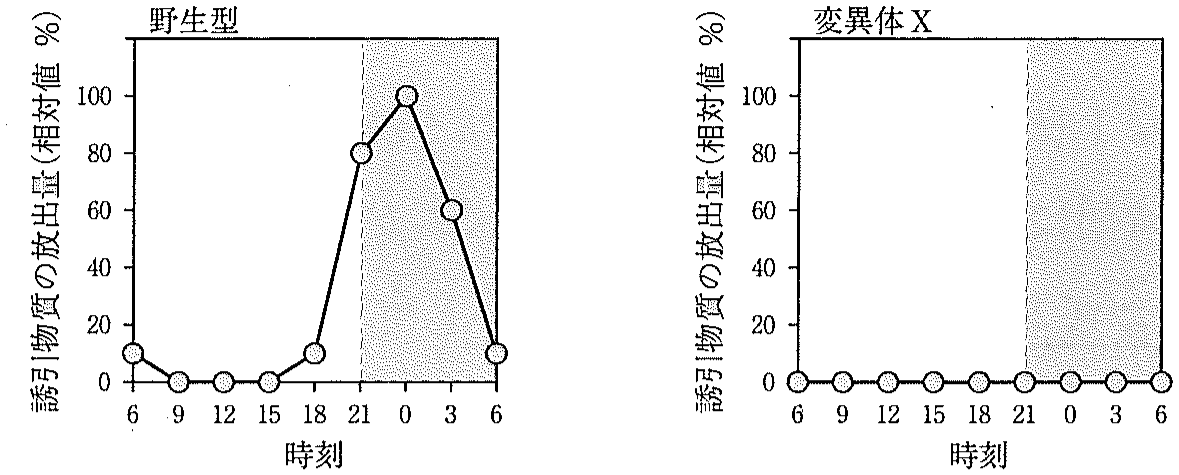
図 1 植物 N の花から放出された誘引物質量の日内変化
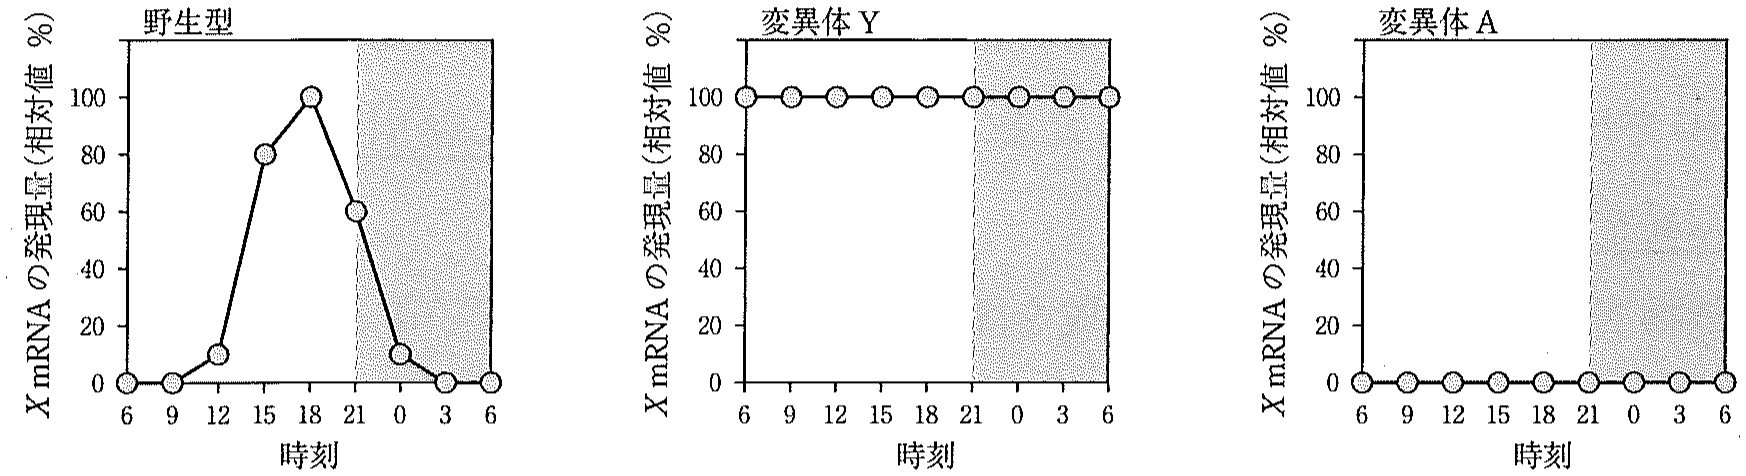
図 2 植物 N における遺伝子 X の mRNA 量の日内変化
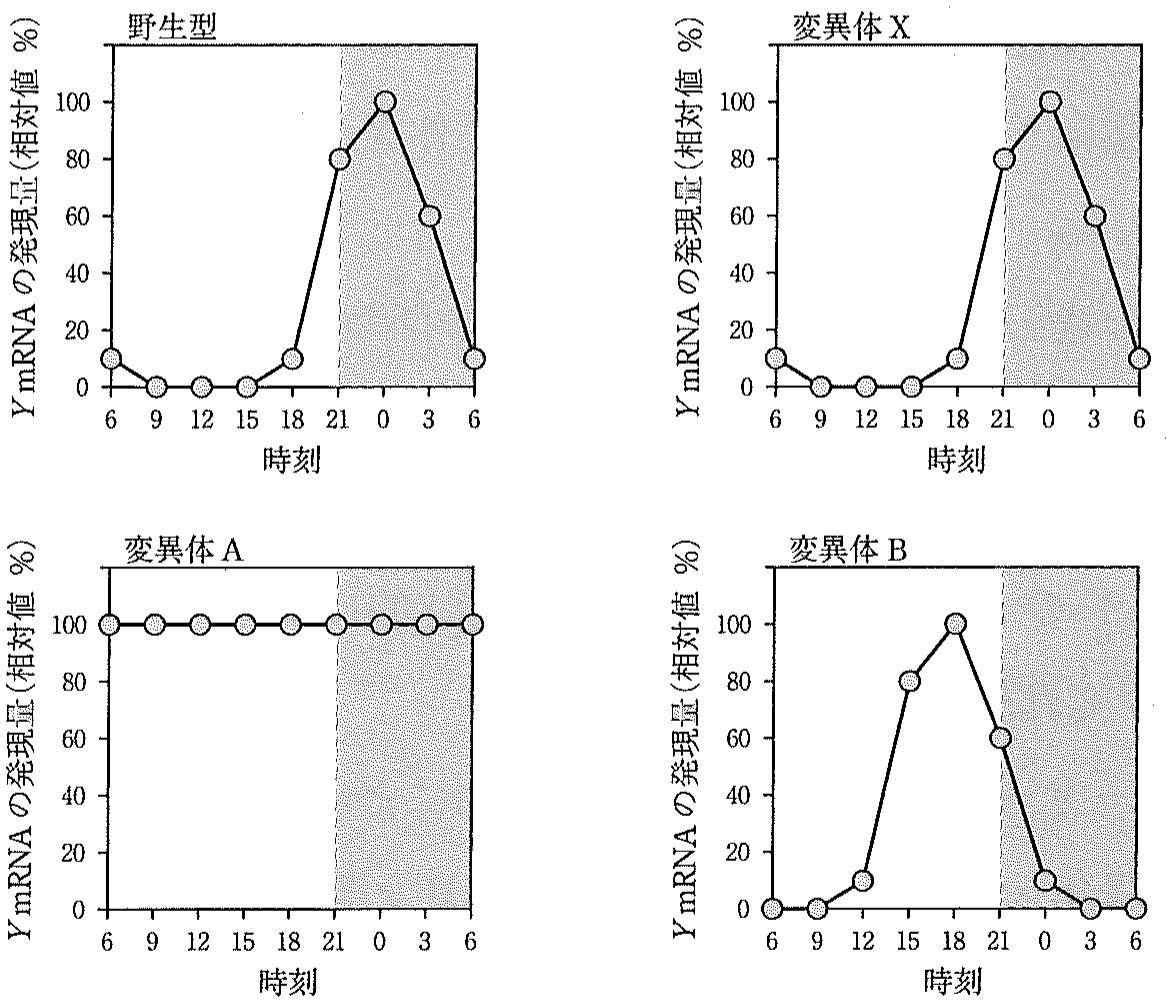
図 3 植物 N における遺伝子 Y の mRNA 量の日内変化
設問(3):下線部③のメカニズムを図 4 に模式的に表した。(a),(b),(c)に入る名称の組み合わせ,および,(ア),(イ)に入る用語の組み合わせを以下から一つ選択し,それぞれ番号で答えよ。
(a),(b),(c)の組み合わせ
① (a) 誘引物質の合成酵素遺伝子,(b) 遺伝子 X,(c) 遺伝子 Y ② (a) 誘引物質の合成酵素遺伝子,(b) 遺伝子 Y,(c) 遺伝子 X ③ (a) 遺伝子 X,(b) 誘引物質の合成酵素遺伝子,(c) 遺伝子 Y ④ (a) 遺伝子 X,(b) 遺伝子 Y,(c) 誘引物質の合成酵素遺伝子 ⑤ (a) 遺伝子 Y,(b) 誘引物質の合成酵素遺伝子,(c) 遺伝子 X ⑥ (a) 遺伝子 Y,(b) 遺伝子 X,(c) 誘引物質の合成酵素遺伝子
(ア),(イ)の組み合わせ
① (ア) 活性化,(イ) 活性化 ② (ア) 活性化,(イ) 抑制 ③ (ア) 抑制,(イ) 活性化 ④ (ア) 抑制,(イ) 抑制
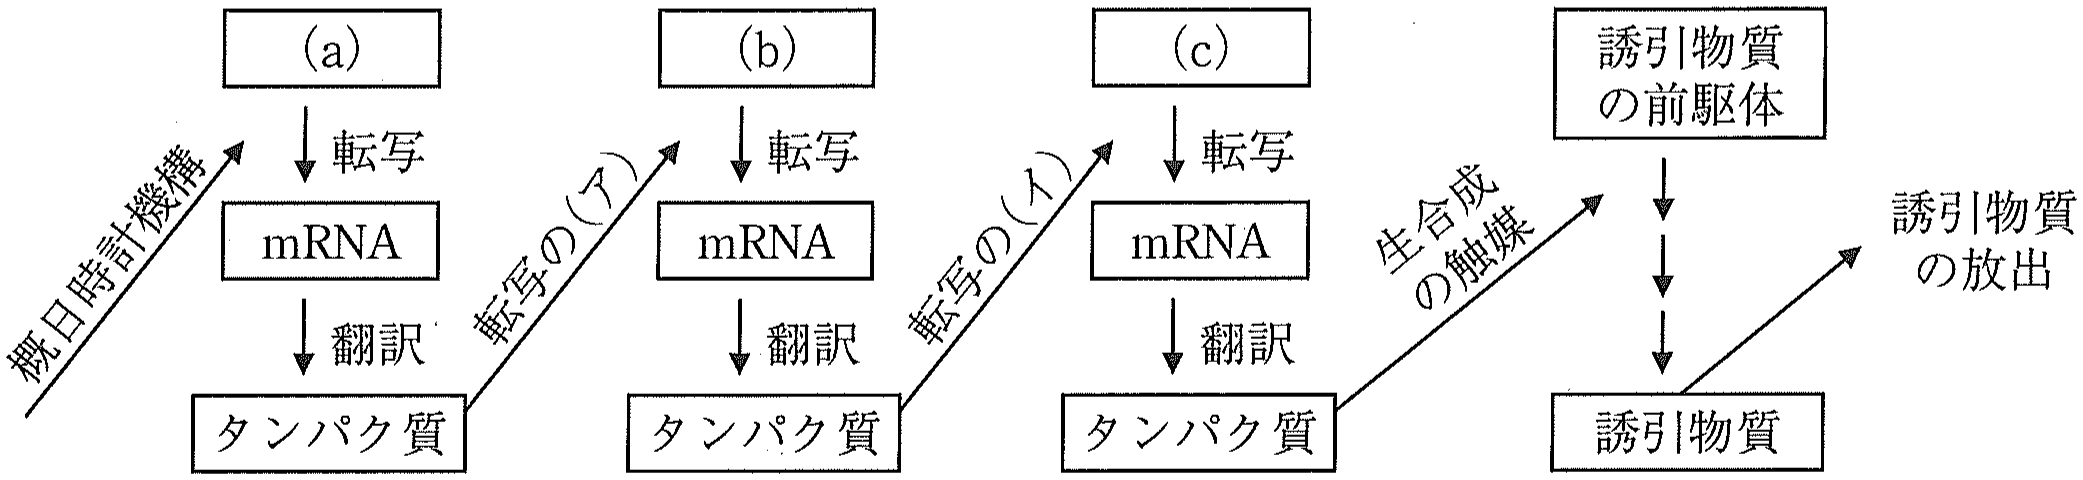
図 4 送粉昆虫の誘引物質を特定の時間に放出するためのメカニズムのモデル図
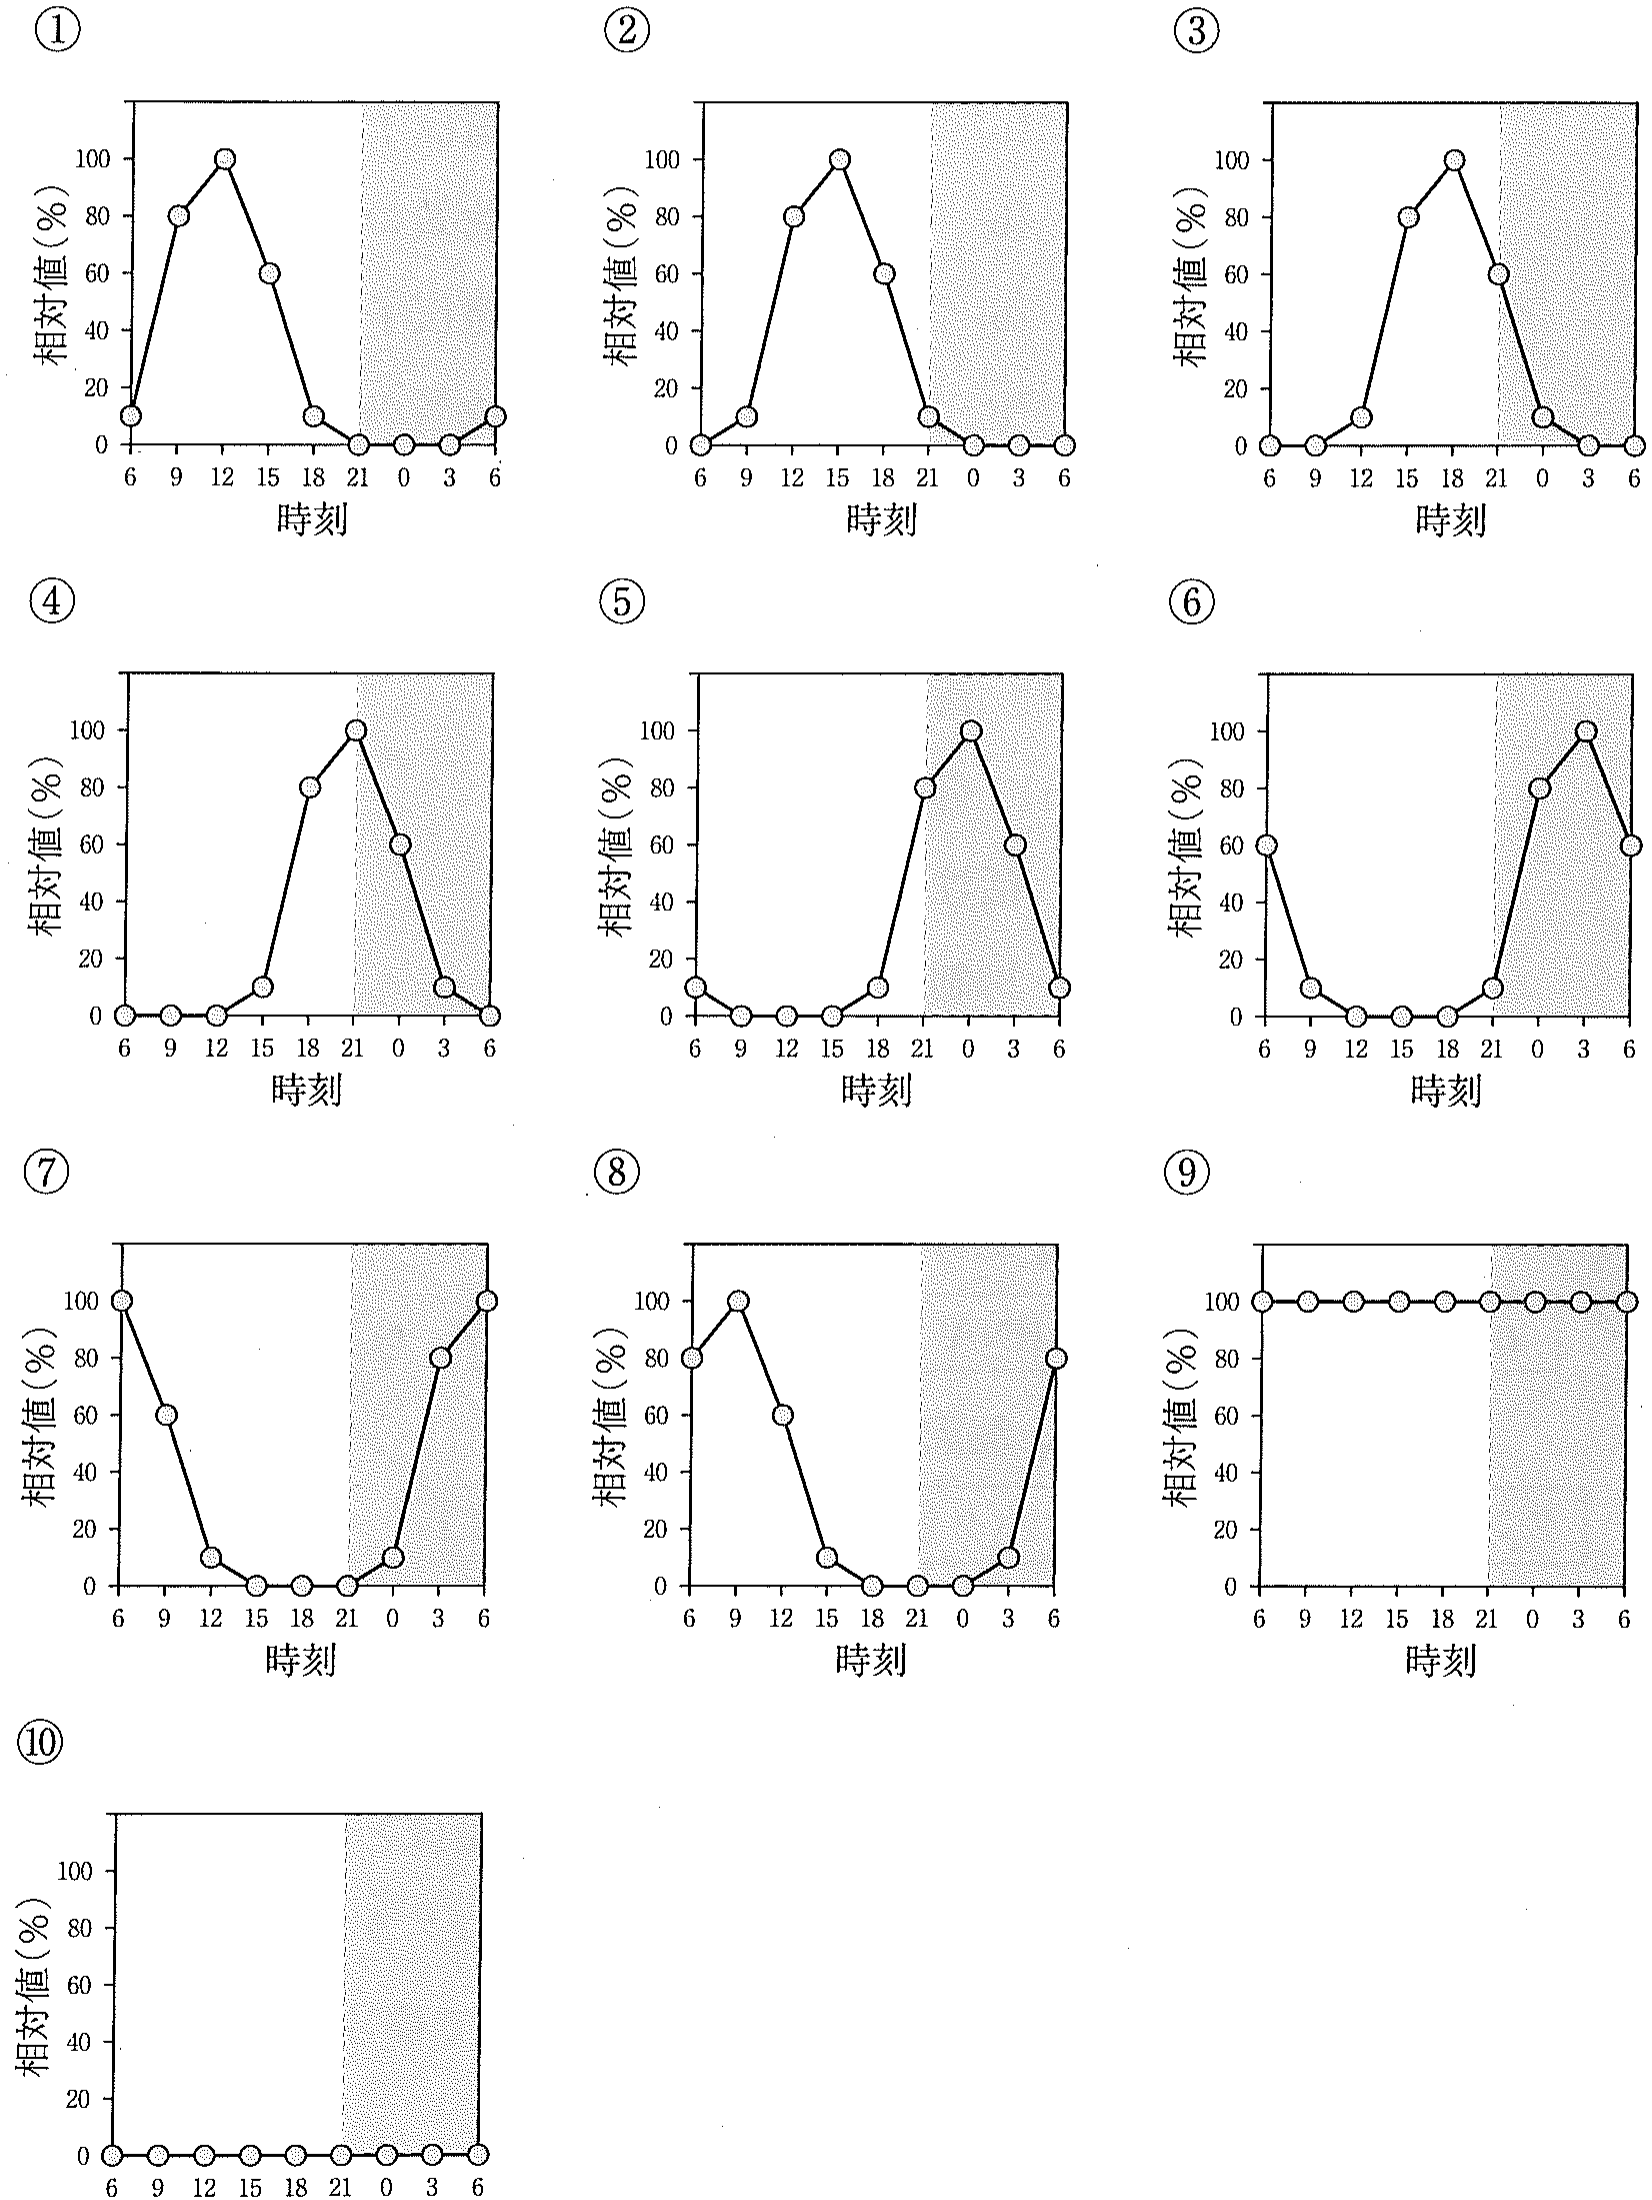
設問(4):変異体 B の 1 日における遺伝子 X の mRNA 量はどのようになっていると考えられるか。設問(5)の下に記載した【選択肢のグラフ】の①から⑩(縦軸は遺伝子 X の mRNA 量とする)の中から 1 つ選んで番号で答えよ。
設問(5):下線部④に関して,変異体 A および変異体 B の 1 日における誘引物質の放出量はどのようになっていると考えられるか。それぞれの変異体に関して,【選択肢のグラフ】の①から⑩(縦軸は誘引物質の放出量とする)の中から 1 つずつ選んで番号で答えよ。同じ番号を 2 度選択してもよい。
【選択肢のグラフ】
文 3
植物 N はスズメガに花粉の媒介を担わせている一方で,その成虫の産卵に由来する幼虫の食害も受ける。植物 N がスズメガの幼虫から食害を受けると,約 90 % の花が大きさや開花時刻に関して通常とは異なる性質をもつように変化する(図 5)。そこで,これら二種類の花を区別して,食害を受けていない植物の花を通常花,これと異なる形態の花を特殊花と呼ぶことにした。いずれの花も開花は一度きりであった。特殊花における誘引物質の放出量を経時的に測定したところ,一日を通して検出されなかった。食害が植物 N の受粉効率にどのような影響を及ぼしているかを知るために,植物 N にスズメガ幼虫を数日間連続して蔓延させる処理を施した。花の形態が変化した後,昼間または夜間のいずれかの時間帯だけ植物全体をメッシュで遮蔽して花粉媒介者との接触を断ち,すべての開花した花のうち,果実が成熟した花の割合(結実率)を測定したところ,図 6 に示す結果が得られた。対照実験として,スズメガ幼虫を蔓延させる前処理を行わなかった植物も同様に観察した。いずれの場合においても,スズメガは夜間だけ活動し,日中はハチドリなどの花粉媒介者が植物 N を訪れていた。
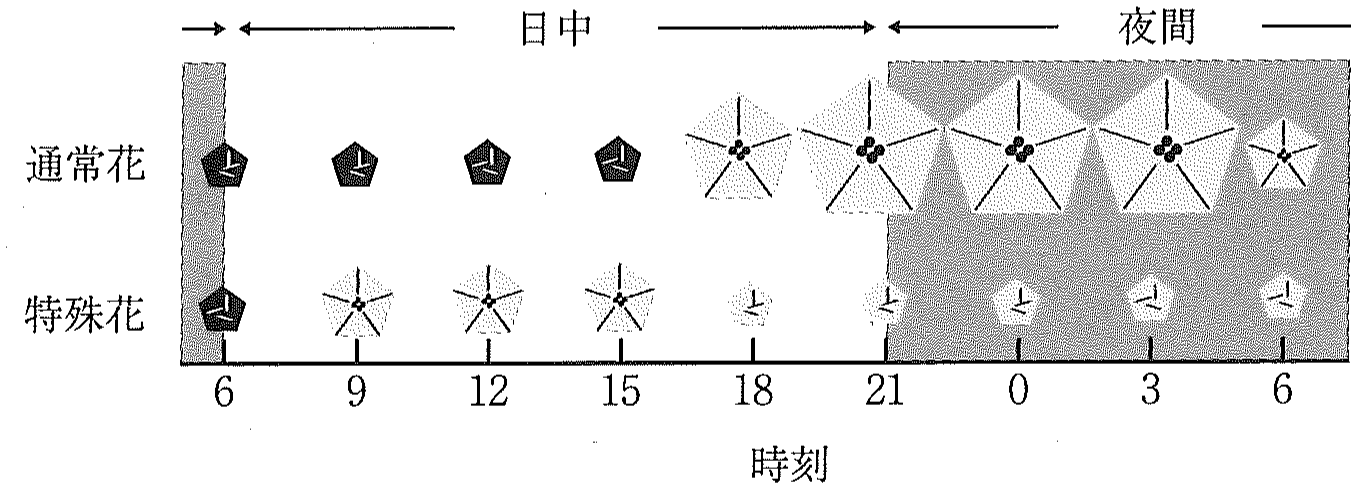
図 5 植物 N における通常花と特殊花の形態と花弁の開閉の模式図 開花前の花弁を黒で開花後の花弁をグレーで示した。
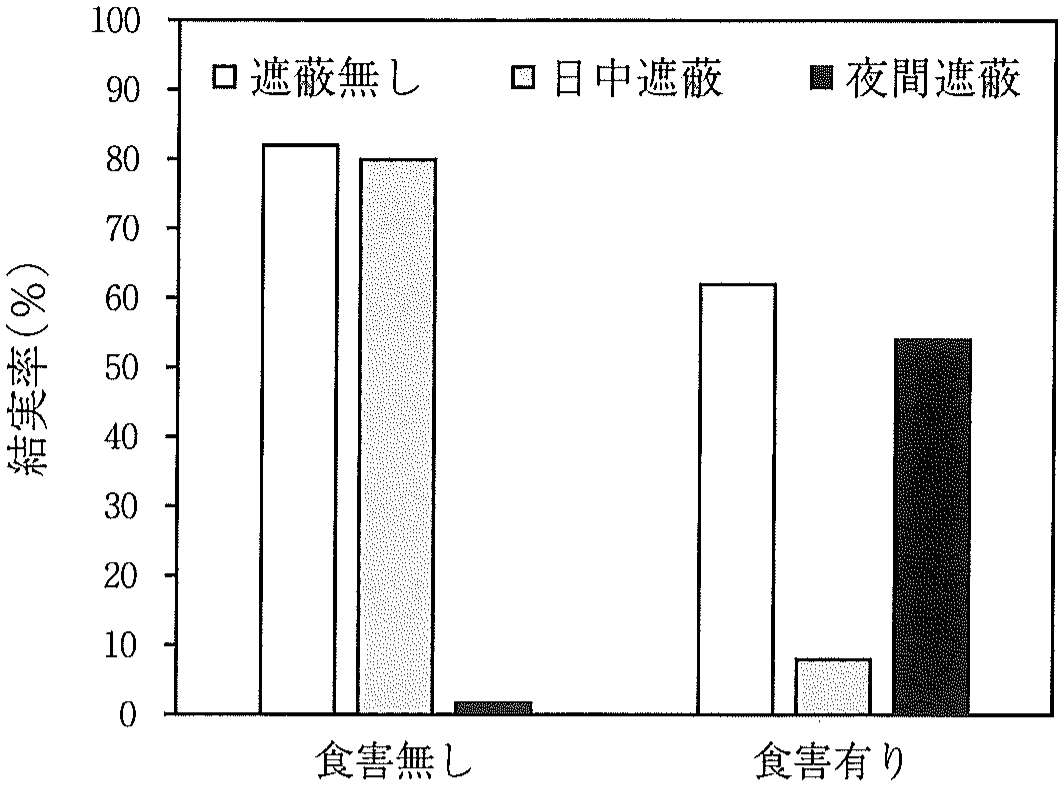
図 6 食害と遮蔽処理による結実率への影響
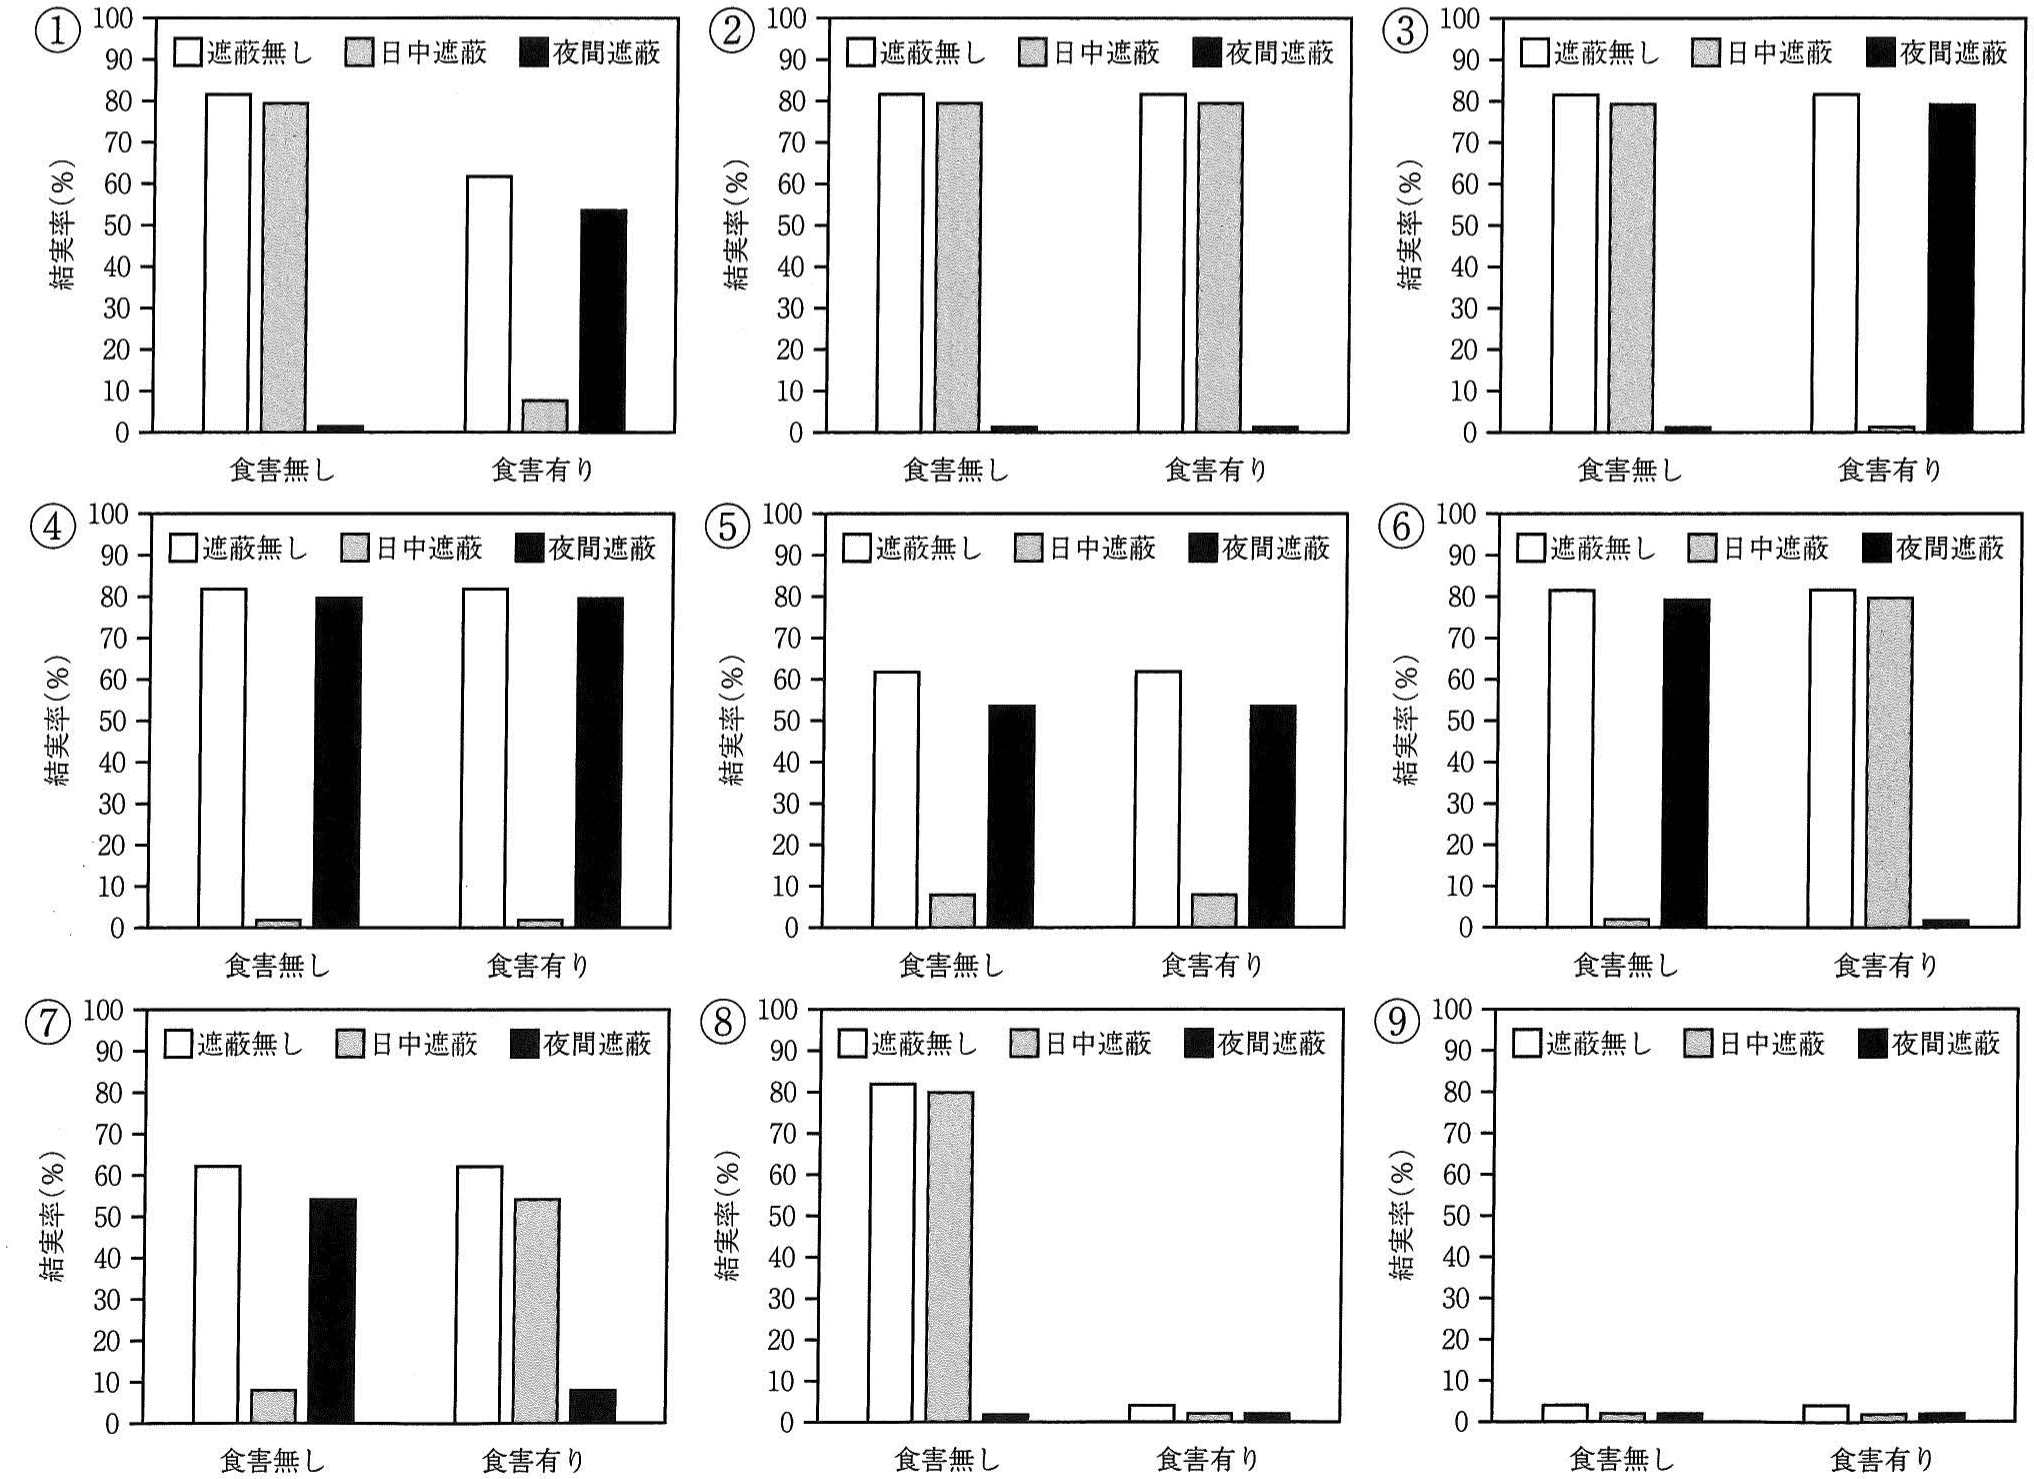
設問(6):食害のない植物 N を夜間にメッシュで遮蔽した場合,結実率が大きく低下した理由を考察し,解答欄の枠内で答えよ。
設問(7):食害処理を行うと夜間のメッシュによる遮蔽をしても結実率が大きく低下しなかった理由を考察し,解答欄の枠内で答えよ。
文 4
一般に植物は食害を受けたときに植物ホルモンのジャスモン酸(以下「JA」と表記)を合成する。JA の合成が,食害を受けた時の植物 N における特殊花の誘導にどのように関わっているかを明らかにするために,以下の実験を行った。植物 N の野生型および JA を合成できない変異体(JA 合成酵素遺伝子欠損変異体)の葉に傷を与え,その傷口に水またはスズメガ幼虫の口腔分泌液を 8 日間毎日塗布し,その後の花の変化を観察した。対照実験として,傷を与えず水や口腔分泌液を塗布しない植物も同様に観察した。さらに,これらの植物に,毎日 JA を噴霧した場合の特殊花の割合もそれぞれ測定した。以上の実験結果を図 7 にまとめて記した。JA 合成酵素遺伝子欠損変異体の通常花の性質は野生型と同じであった。
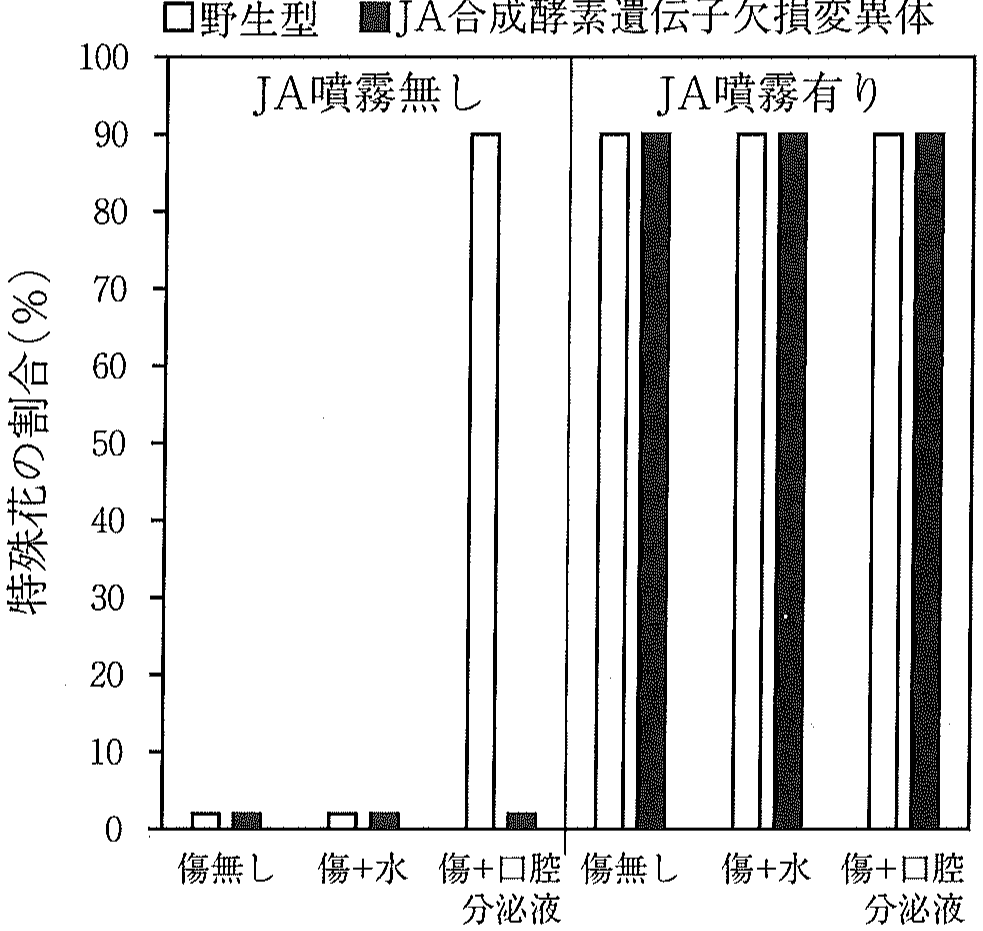
図 7 JA 噴霧処理と特殊花誘導との関係
設問(8):植物 N の野生型の特徴に関して,図 7 の実験から示唆されることとしてふさわしい記述を以下の(a)〜(e)の中から 2 つ選び,記号で答えよ。
(a) 傷口にスズメガ幼虫の口腔分泌液を塗布すると JA 合成が誘導される。
(b) JA 噴霧による特殊花の誘導は傷を与えることによって促進される。
(c) 特殊花の誘導は傷害を受けるだけで十分である。
(d) 特殊花の誘導には JA が傷口に作用することが必要である。
(e) 食害による特殊花の誘導には JA 合成が必要である。
設問(9):図 7 の実験結果をふまえて,JA 合成酵素遺伝子欠損変異体を用いて図 6 に示した実験を行った場合に得られる結果として最も適切なグラフを以下から 1 つ選び,番号で答えよ。本実験においては,いずれの条件においても開花した花が存在したものとする。