(第 1 問はまだこの手元版に入れていない。)
第2問
次の文章を読み,以下の設問に答えよ。
文 1
細胞は細胞外のシグナル分子を受容すると,その情報に従って増殖や分化(特定の形やはたらきをもつ細胞へ変化すること)などの応答を示す。例えば細胞が増殖を開始する際には,シグナル分子が細胞膜上の受容体に結合し,受容体が細胞内の酵素 A を活性化する。活性化した酵素 A は,調節タンパク質 B をリン酸化(基質にリン酸基を共有結合させること)し,リン酸化された調節タンパク質 B が調節遺伝子 *C* のプロモーターに結合する。その結果,調節遺伝子 *C* から mRNA が転写され,調節タンパク質 C が新たに翻訳される。翻訳された調節タンパク質 C は,細胞増殖に必要な遺伝子群のプロモーターに結合し,それら遺伝子群の発現を誘導することで,細胞の増殖が開始する(図 1)。
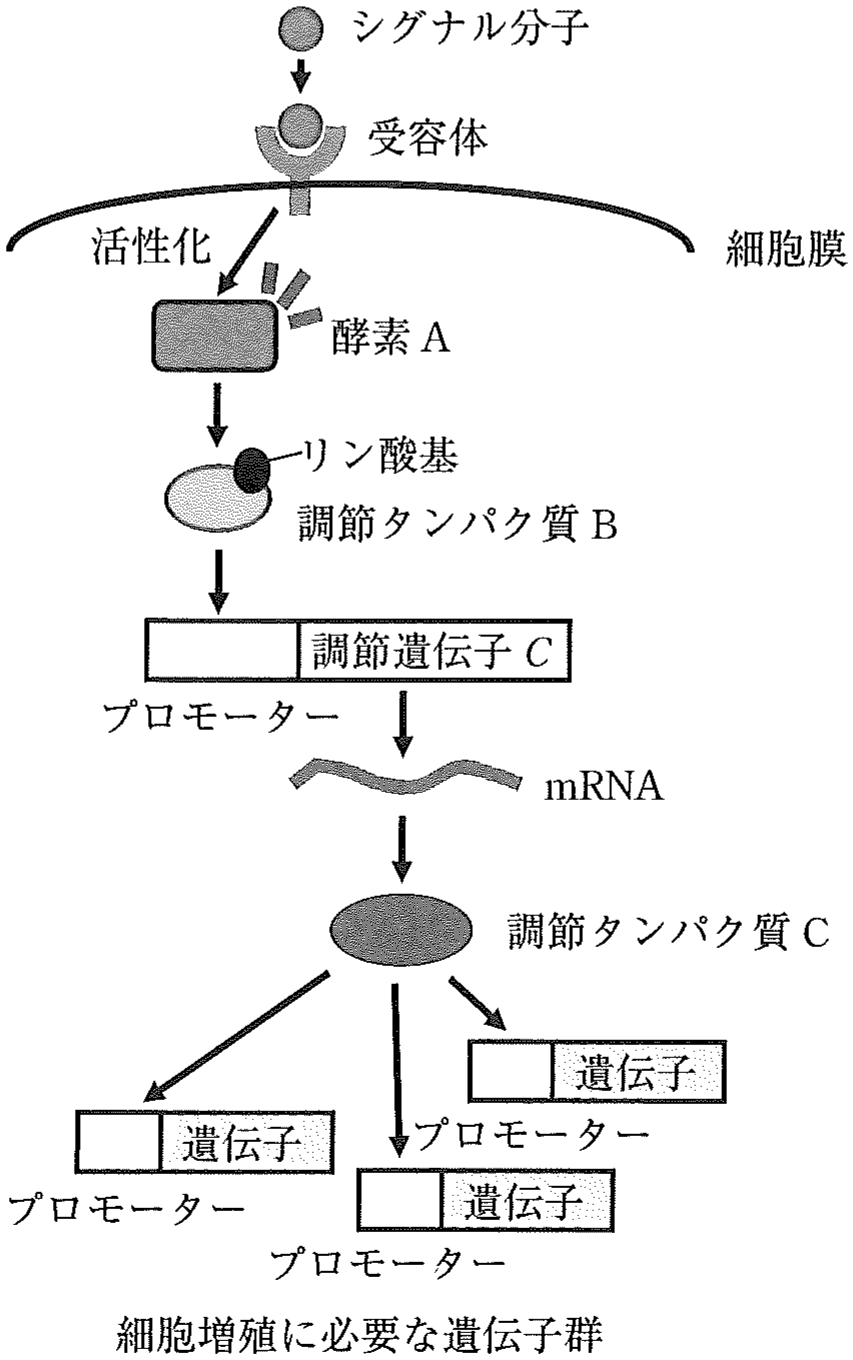
図 1 シグナル分子による細胞応答
ヒトの皮膚由来の培養細胞に,シグナル分子 X を添加すると増殖を開始するが,シグナル分子 Y を添加しても増殖を開始しない。このとき,シグナル分子 X と Y はどちらも,細胞内の酵素 A を活性化し,調節タンパク質 B のリン酸化および調節遺伝子 *C* の発現を誘導することが知られている。
ユウキさんは,シグナル分子 X と Y はどちらも酵素 A を活性化し,調節遺伝子 *C* の発現を誘導するのに,なぜシグナル分子 X のみが細胞増殖を引き起こすのか不思議に感じた。そこでこの違いを明らかにしようと,酵素 A の活性の経時的変化(活性時間)について調べた。その結果,図 2 のような違いがあることを発見した。ユウキさんは,この酵素 A の活性時間の違いが,シグナル分子 X と Y に対する細胞応答の違いの原因ではないかと考え,さらに調べることにした。
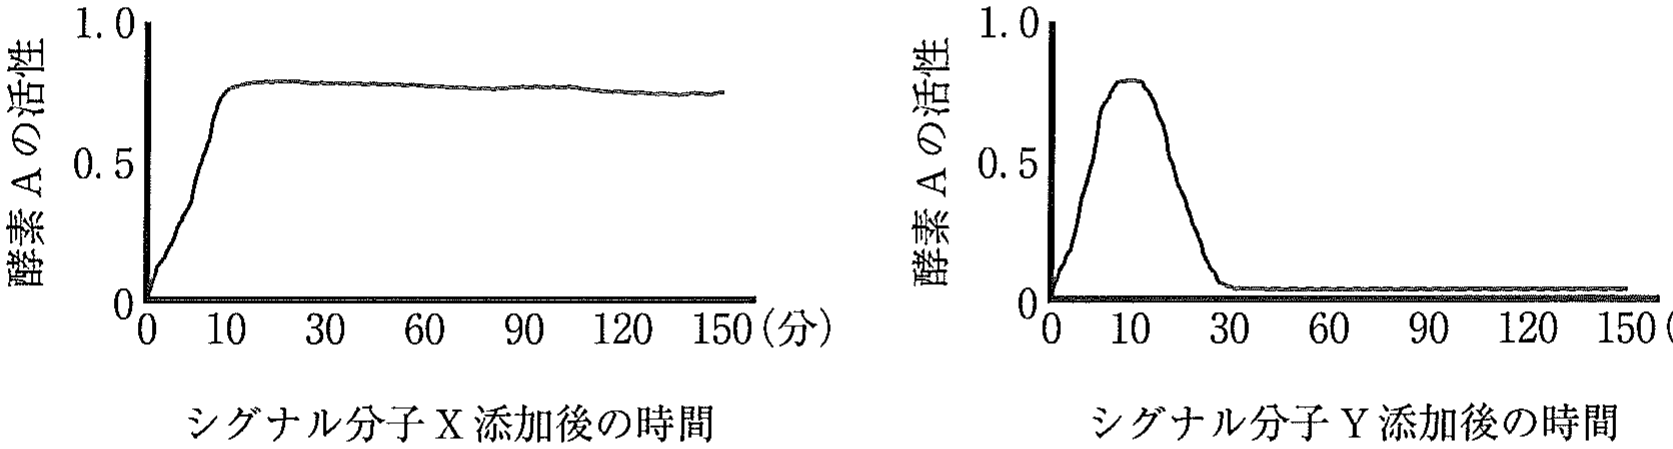
図 2 酵素 A の活性(相対値)の変化
設問(1):細胞にシグナル分子 X を添加した時,細胞内の調節タンパク質 C の量がどのように変化するか調べた。すると,図 3a のような結果を得た。そこで調節遺伝子 *C* の転写と翻訳について調べることにした。シグナル分子 X を添加してから,15 分後に調節タンパク質 B の阻害剤を加えたところ,調節タンパク質 C のタンパク質の量に変化はなかった(図 3b)。このことから,調節遺伝子 *C* の転写についてわかることを解答欄の枠内で述べよ。なお調節タンパク質 B の阻害剤は,細胞に加えると直ちに調節遺伝子 *C* の転写誘導を阻害し,以降も阻害し続ける。
設問(2):シグナル分子 X を添加してから,15 分後(図 3c)あるいは 45 分後(図 3d)に,翻訳阻害剤を細胞に加えた。これらの実験データの解釈として,以下の文中の空欄に最も適切な数字を記入せよ。なお翻訳阻害剤は,細胞に加えると直ちにタンパク質の合成を阻害し,以降も阻害し続ける。
調節遺伝子 *C* の翻訳はシグナル分子 X を添加してから,(ア) 分以降に始まり (イ) 分までの間に完了すると考えられる。例えばシグナル分子 X の添加後 150 分にみられる調節タンパク質 C は,(イ) 分までに合成されたものと考えられる。
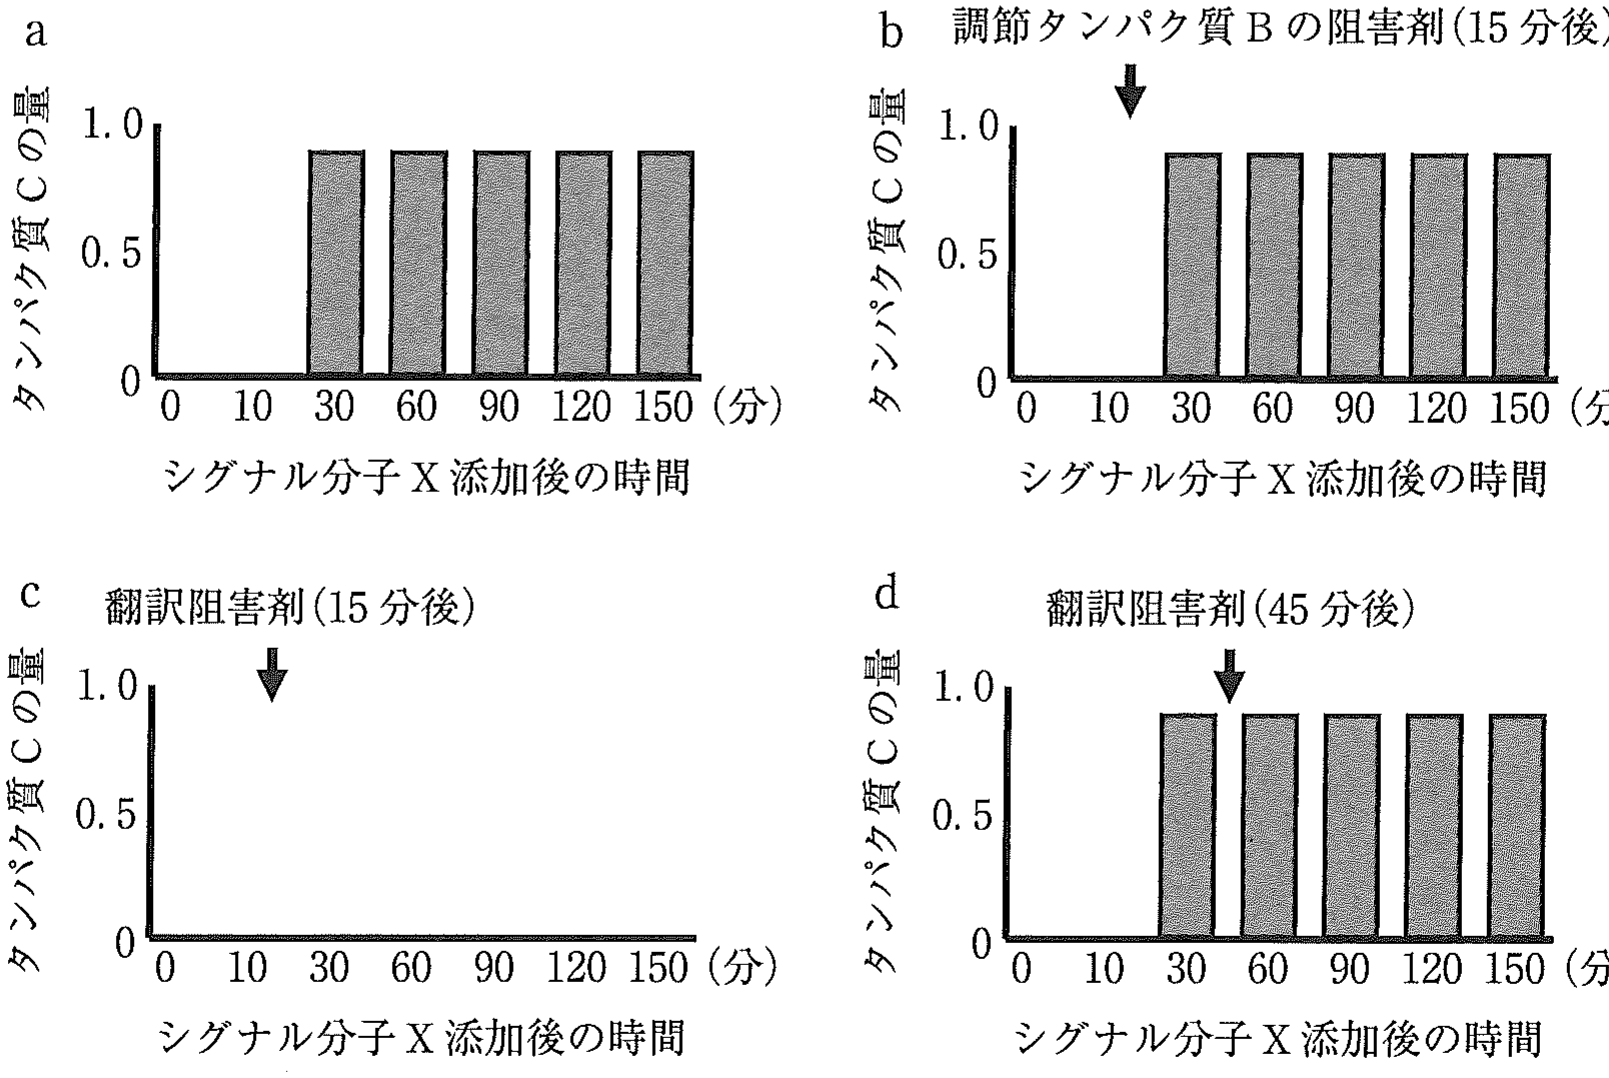
図 3 各計測時間における調節タンパク質 C の量(相対値)
文 2
ユウキさんが過去に行われた実験を調べたところ,活性化した酵素 A は,調節タンパク質 B をリン酸化することにくわえ,調節タンパク質 C もリン酸化し,調節タンパク質 C を分解から防いで安定化することがわかった(図 4)。また酵素 A の活性が低下すると,リン酸化された調節タンパク質 C は,やがて脱リン酸化(基質に共有結合したリン酸基が解離すること)されることもわかった(図 4)。このことからユウキさんは,酵素 A の活性時間の違いが,調節タンパク質 C の量に違いをもたらすのではないかと考えた。そこでこの可能性を,酵素 A の阻害剤 Z を用いて,人為的に酵素 A の活性時間を変化させることで検討した。
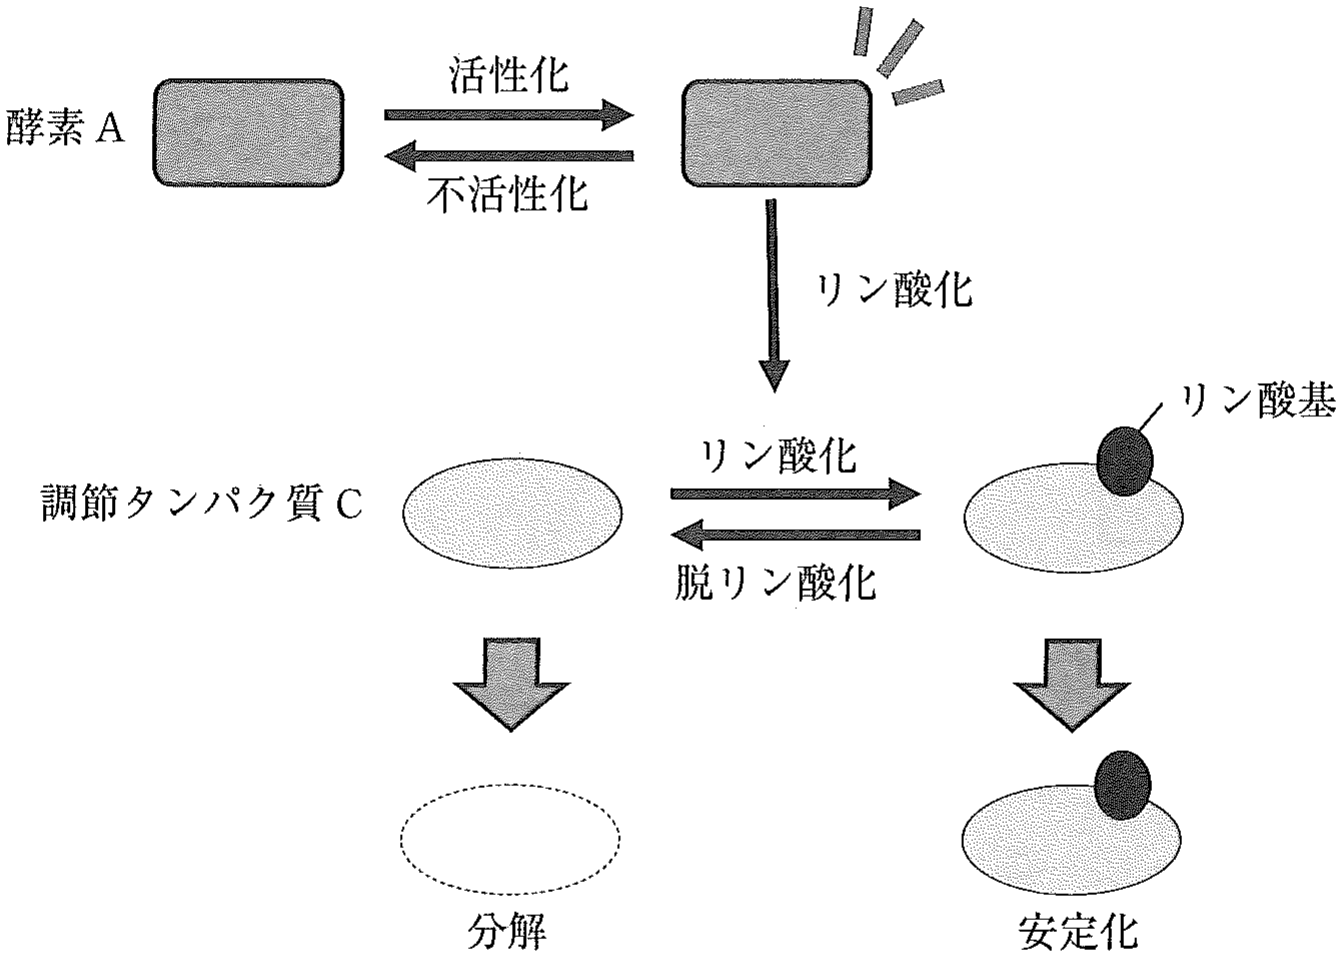
図 4 酵素 A による調節タンパク質 C のリン酸化と安定化
設問(3):細胞にシグナル分子 X を添加すると,酵素 A の活性および調節タンパク質 C の量とリン酸化状態は,それぞれ図 5a,図 5b のようになった。このとき,シグナル分子 X の添加と同時(0 分),または 10 分後に,阻害剤 Z を加えたところ,酵素 A の活性はそれぞれ図 5c,図 5e のようになった。またこのときの調節タンパク質 C の量とリン酸化状態は,図 5d,図 5f に示すとおりである。なお酵素 A のタンパク質量は実験を通して変化がなかった。これらの実験結果の考察に関する以下の a)〜c)の文章について,空欄 (i) 〜 (iii) に入れるのに最も適切な言葉を(ア)〜(ウ)から選び解答欄に記せ。
(ア) 十分である (イ) 十分でない (ウ) 十分かどうか判断できない
a)調節遺伝子 *C* の発現誘導には,酵素 A の活性化が 10 分で (i)。
b)調節タンパク質 C のリン酸化には,酵素 A の活性化が 10 分で (ii)。
c)調節タンパク質 C の分解を防ぐには,酵素 A の活性化が 10 分で (iii)。
設問(4):次に細胞にシグナル分子 X を添加してから,45 分後に阻害剤 Z を加えた。すると,酵素 A の活性および調節タンパク質 C の量とリン酸化状態は,それぞれ図 5g,図 5h のようになった。なお酵素 A のタンパク質量は実験を通して変化がなかった。阻害剤 Z の添加を遅くすることで,調節タンパク質 C の量とリン酸化状態が図 5f から図 5h のように変化した理由を,酵素 A の活性および調節タンパク質 C の量とリン酸化状態に注目して考察し,解答欄の枠内で述べよ。
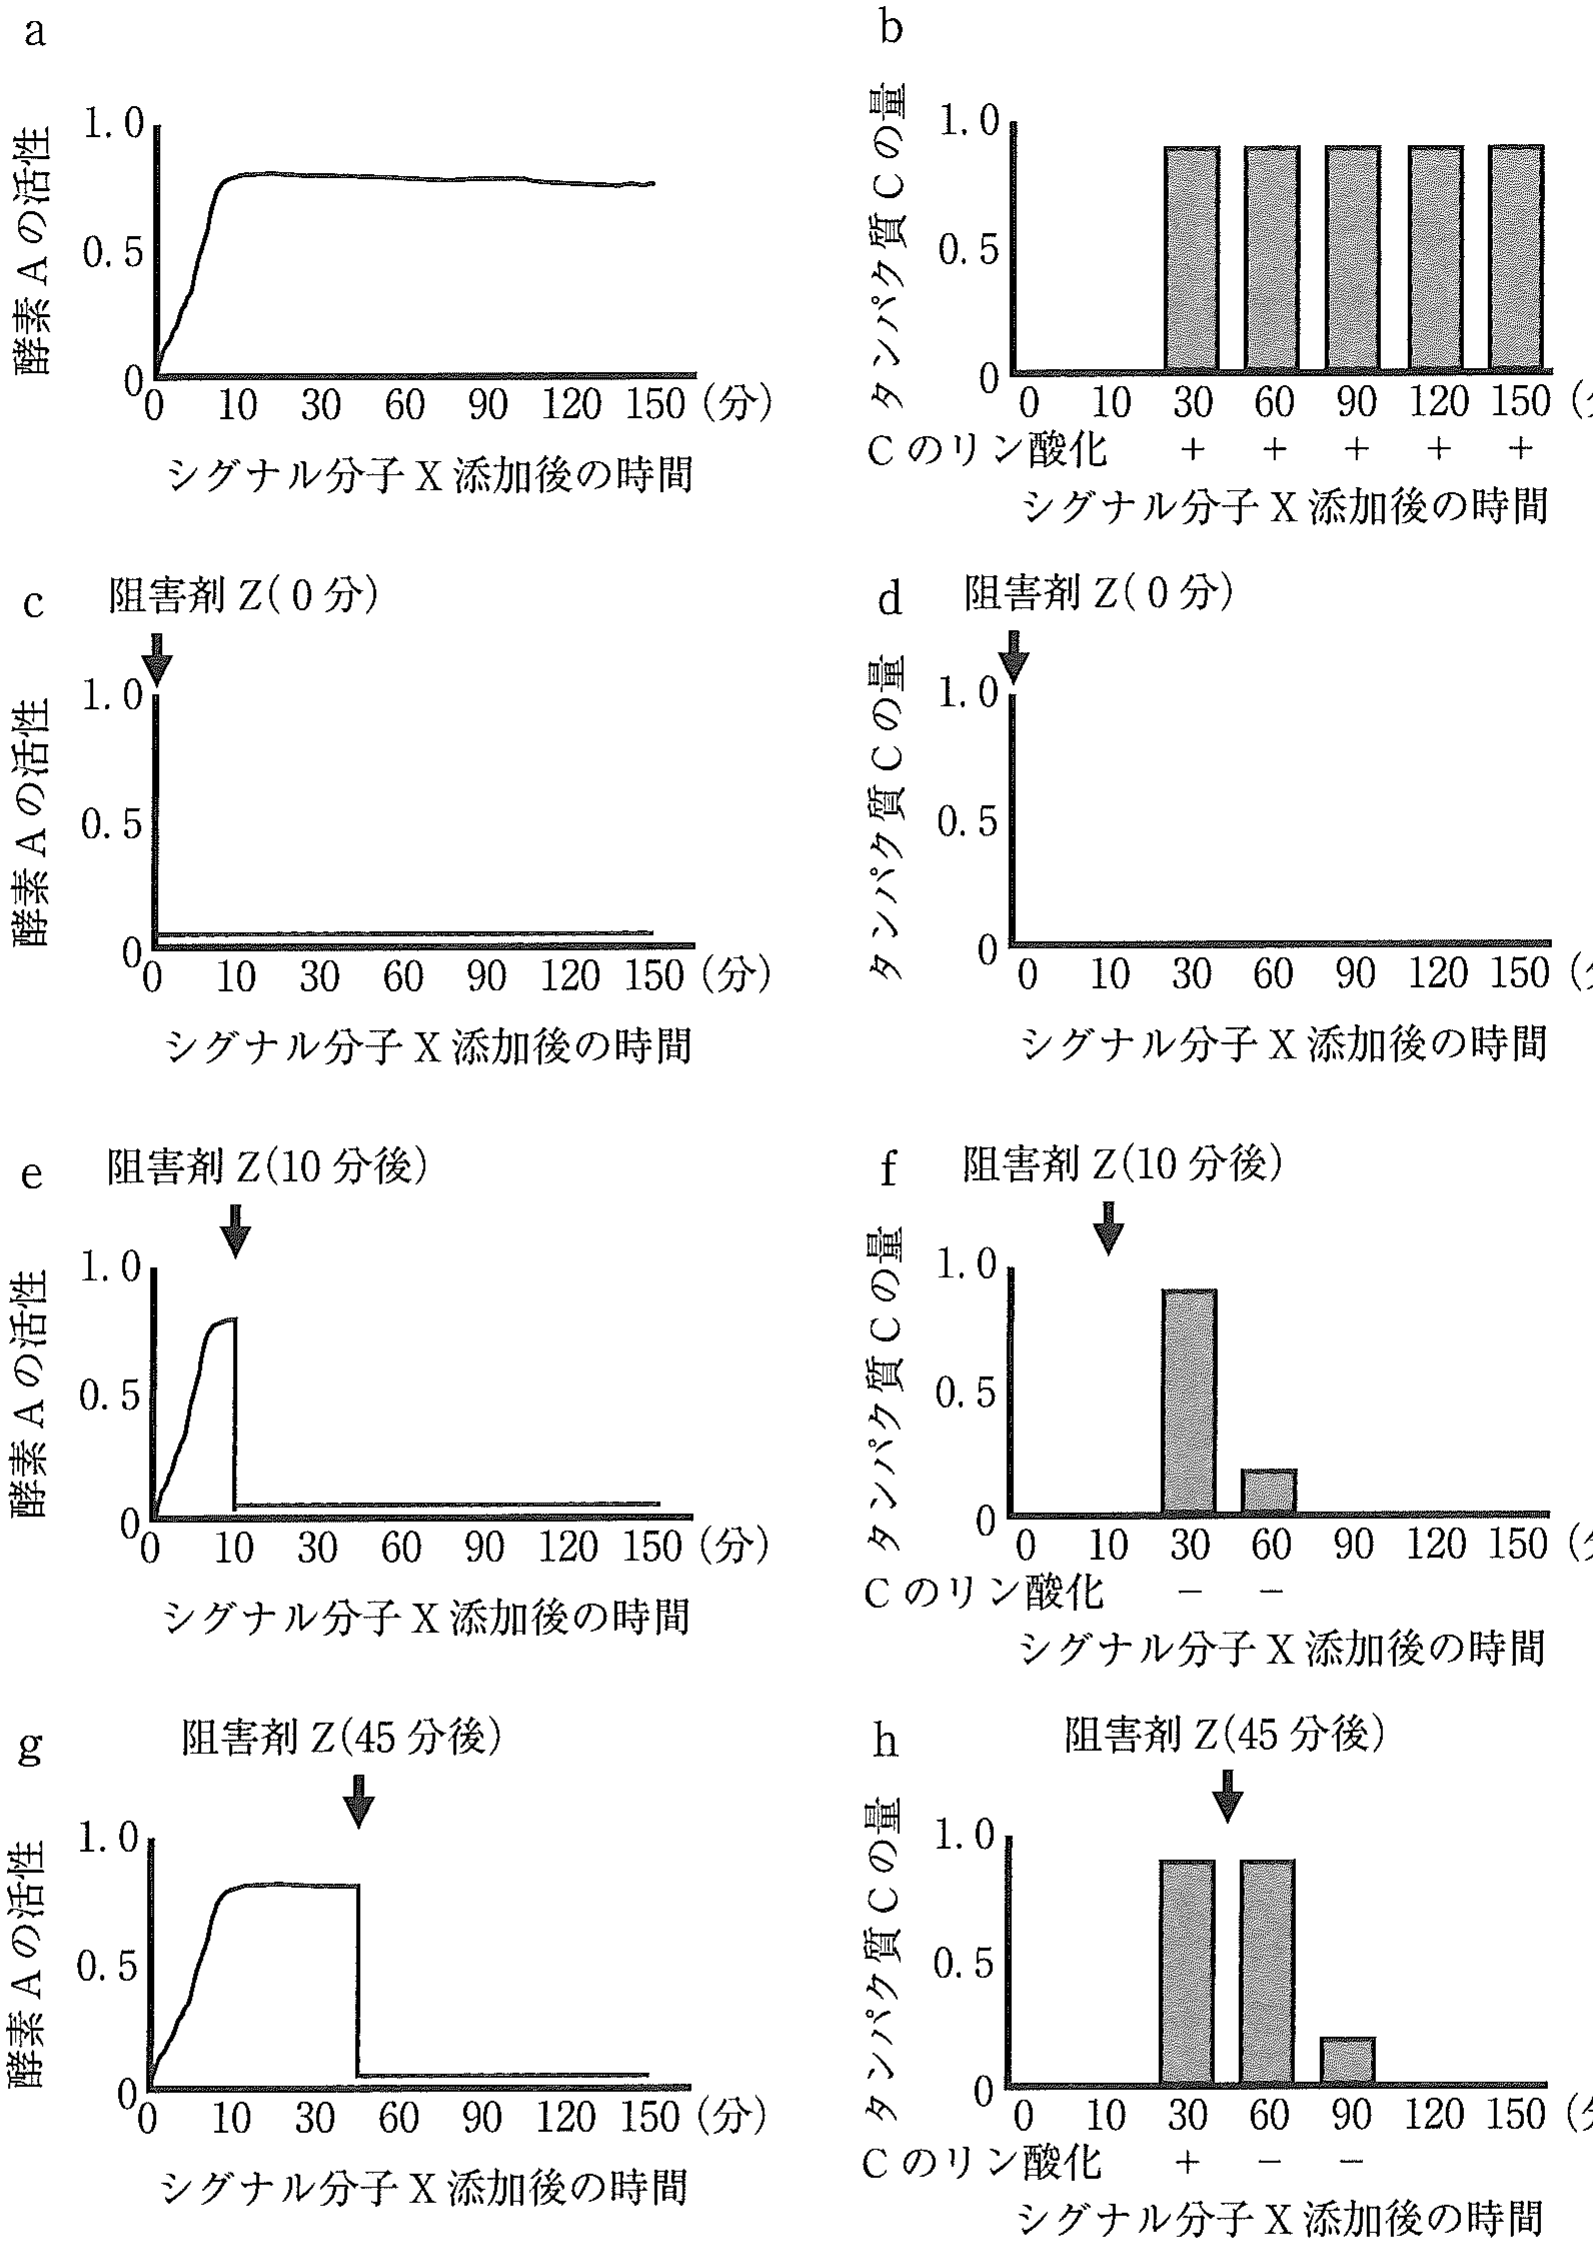
図 5 阻害剤 Z による酵素 A の活性(相対値)および,調節タンパク質 C の発現量(相対値)とリン酸化状態の時間変化。C のリン酸化が+のとき,すべてのタンパク質 C がリン酸化されており,−のとき,すべてのタンパク質 C がリン酸化されていない。
設問(5):ユウキさんは,図 5 の実験において細胞が増殖するかどうか観察した。するとシグナル分子 X を添加した細胞(図 5a,図 5b)では,細胞の増殖がみられた。一方,シグナル分子 X を添加してから,0 分後,10 分後,45 分後に阻害剤 Z を加えた細胞(図 5c〜図 5h)では,細胞の増殖はみられなかった。これらの実験結果をふまえ,文 1 中のシグナル分子 Y の添加で細胞増殖が起きなかった理由を,次の用語をすべて含めて解答欄の枠内で述べよ。
酵素 A,調節タンパク質 C,リン酸化,翻訳,活性
第3問
次の文章を読み,以下の設問に答えよ。
文 1
植物の道管は,植物体内の前形成層および形成層と呼ばれる組織の一部の細胞が分化(特定の形やはたらきをもつ細胞へ変化する現象)することによって作られる。道管が作られる過程では,前形成層あるいは形成層の細胞が,厚い細胞壁を作った後,細胞内のタンパク質や核酸を分解することにより,細胞死を起こす。このようにして,細胞壁のみを残して中空の構造となった死細胞は管状要素と呼ばれる。維管束組織では管状要素が途切れなくつながるように分化することにより機能的な道管が構築される。
細胞が管状要素へ分化するしくみを明らかにするため,植物の葉の葉肉組織の細胞(葉肉細胞)を単離し,人為的に管状要素の分化を誘導する方法が研究された。単離した葉肉細胞を様々な植物ホルモンを含む液体培地中で培養したところ,(ア) および (イ) の存在下で葉肉細胞を培養すると,一部の細胞が管状要素に分化する現象が観察された。
(ア) は植物細胞の成長を促進し,光屈性や重力屈性において中心的な役割を果たす植物ホルモンである。頂芽優勢をもたらすことも知られる。(イ) は側芽の形成を促進する植物ホルモンである。(ア) と組み合わせて植物の組織培養に広く用いられ,未分化な組織からの芽や根の再分化を促進する。
設問(1):文中の空欄 (ア) と (イ) に入る適切な植物ホルモンの名称を答えよ。
設問(2):(ア),(イ) 以外の植物ホルモンのうち,3 種類の名称を答えよ。
文 2
上記の培養した単離葉肉細胞を顕微鏡下で観察すると,細胞の見た目の形態を基準として,葉肉細胞,厚い細胞壁を作り始めた葉肉細胞(分化中の管状要素),および厚い細胞壁をもち細胞内容物を失った管状要素(分化が完了した管状要素)の 3 種類の細胞のみが観察された。培養開始後 12 時間ごとに葉肉細胞および分化が完了した管状要素の割合を調べた結果,図 1 のようになった。なお,培養中に細胞分裂は観察されなかった。また,葉の内部とは異なり,前形成層細胞も目視では観察されなかった。
そこで,培養開始後 12 時間ごとに培養した細胞を回収し,前形成層細胞でのみ発現する遺伝子 *A*,および分化中の管状要素でのみ発現する遺伝子 *B* の mRNA 量を測定した結果,図 2 のような結果が得られた。なお,同一の細胞が遺伝子 *A* と遺伝子 *B* を同時に発現することはできない。
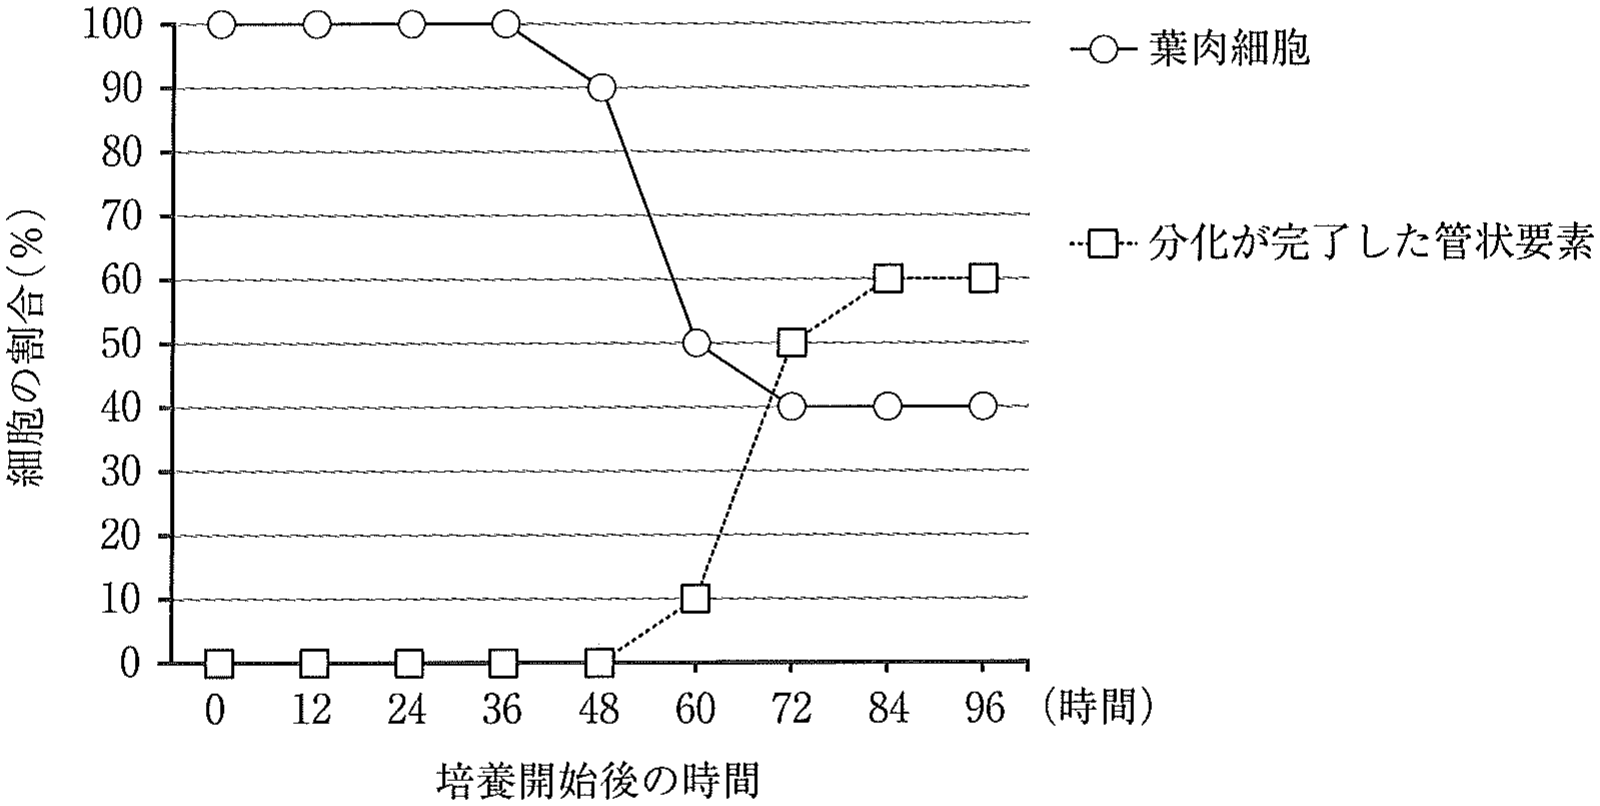
図 1 培養中の細胞の割合の経時的変化
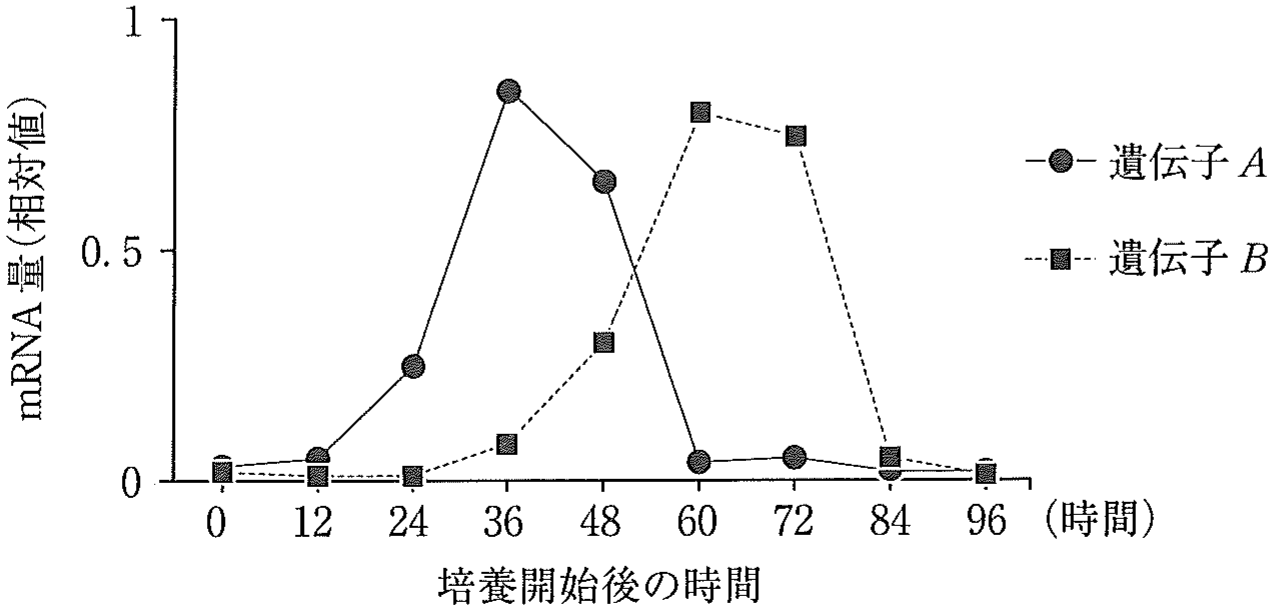
図 2 培養中の mRNA 量の経時的変化
設問(3):解答欄の図に 0 時間目から 96 時間目の分化中の管状要素の割合を ─●─ で加えよ。
設問(4):培養葉肉細胞が厚い細胞壁を作り始めてから分化が完了した管状要素になるまでの平均時間として最も適切なものを以下の a)〜f)のうちから 1 つ選び,記号で答えよ。
a) 6 時間 b) 12 時間 c) 24 時間 d) 36 時間 e) 72 時間 f) 84 時間
設問(5):最も多くの細胞が細胞死を起こした時間帯として最も適切なものを以下の a)〜f)のうちから 1 つ選び,記号で答えよ。
a) 24〜36 時間 b) 36〜48 時間 c) 48〜60 時間 d) 60〜72 時間 e) 72〜84 時間 f) 84〜96 時間
設問(6):培養した葉肉細胞がどのような経過を経て管状要素に分化したと考えられるか,最も適切なものを以下の a)〜e)のうちから 1 つ選び,記号で答えよ。
a)葉肉細胞が伸長成長し,その後,管状要素に分化した。
b)葉肉細胞が葉肉細胞の見た目のまま篩管の性質を獲得し,その後,管状要素に分化した。
c)葉肉細胞が葉肉細胞の見た目のまま前形成層細胞の性質を獲得し,その後,管状要素に分化した。
d)葉肉細胞が細胞内容物を増大し,その後,細胞壁を厚くして管状要素に分化した。
e)葉肉細胞が細胞壁を厚くした後に,前形成層細胞の性質を獲得し,その後,管状要素に分化した。
文 3
単離葉肉細胞をさまざまな密度で培養し,培養開始後 84 時間において分化が完了した管状要素の割合を計測したところ,図 3(□通常培地)に示すような結果が得られた。低密度の培養条件(1 × 10⁵ 個/mL,2 × 10⁵ 個/mL,4 × 10⁵ 個/mL)において分化が完了した管状要素の割合が低かった。単離葉肉細胞を 8 × 10⁵ 個/mL の細胞密度で 84 時間培養した後の培養液を採取し,栄養分の量と植物ホルモンの濃度を通常培地と同等になるように調整した。この調整培地を用いて単離葉肉細胞の培養を行った結果,培養開始後 84 時間における分化が完了した管状要素の割合は,図 3(調整培地)に示すように低密度の培養条件においても高かった。さらに,調整培地にタンパク質分解酵素であるトリプシンを一時的に反応させ,その後トリプシンを除去した培養液を用いて葉肉細胞を培養した。その結果,培養開始後 84 時間における分化が完了した管状要素の割合は図 3(■調整培地+前処理)のようになった。
単離した葉肉細胞の培養開始後 36 時間目から 72 時間目に発現する遺伝子の一つとして遺伝子 *X* が見つかった。子葉における遺伝子 *X* の mRNA は,図 4(野生型)に示すように分化中の管状要素にのみ存在していた。遺伝子 *X* はタンパク質 X をコードしている。タンパク質 X を生産することができない変異体 *x* の成熟した子葉の道管を観察したところ,図 4(変異体 *x*)に示すような結果が得られた。さらに,変異体 *x* の単離葉肉細胞を 8 × 10⁵ 個/mL の細胞密度で 84 時間培養した後の培養液を採取した。この変異体 *x* 由来の培養液を上記と同様に調整して野生型の単離葉肉細胞を培養した結果,図 3(変異体 *x* 由来の調整培地)のような結果が得られた。
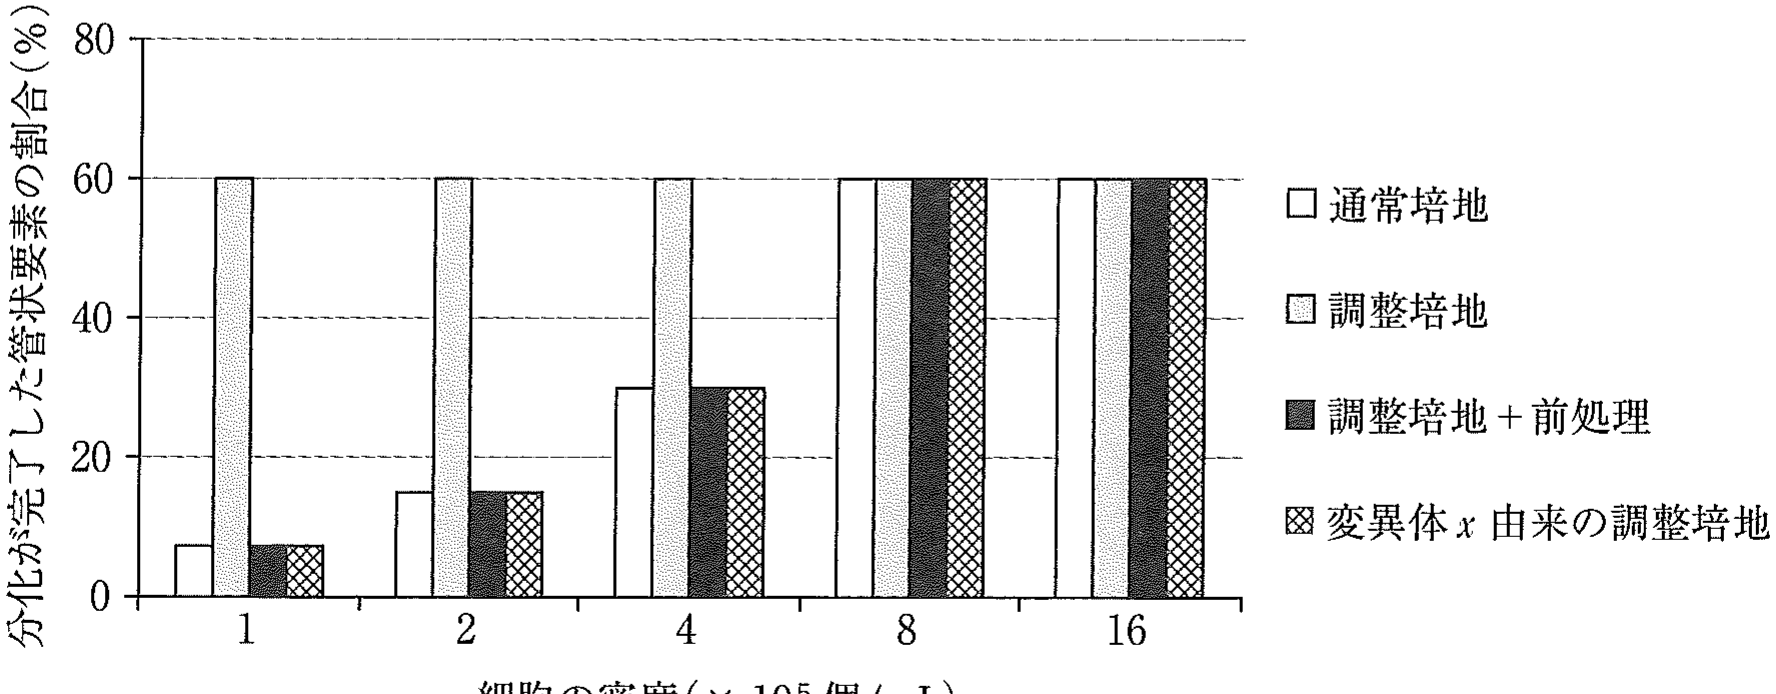
図 3 各培養条件における分化が完了した管状要素の割合
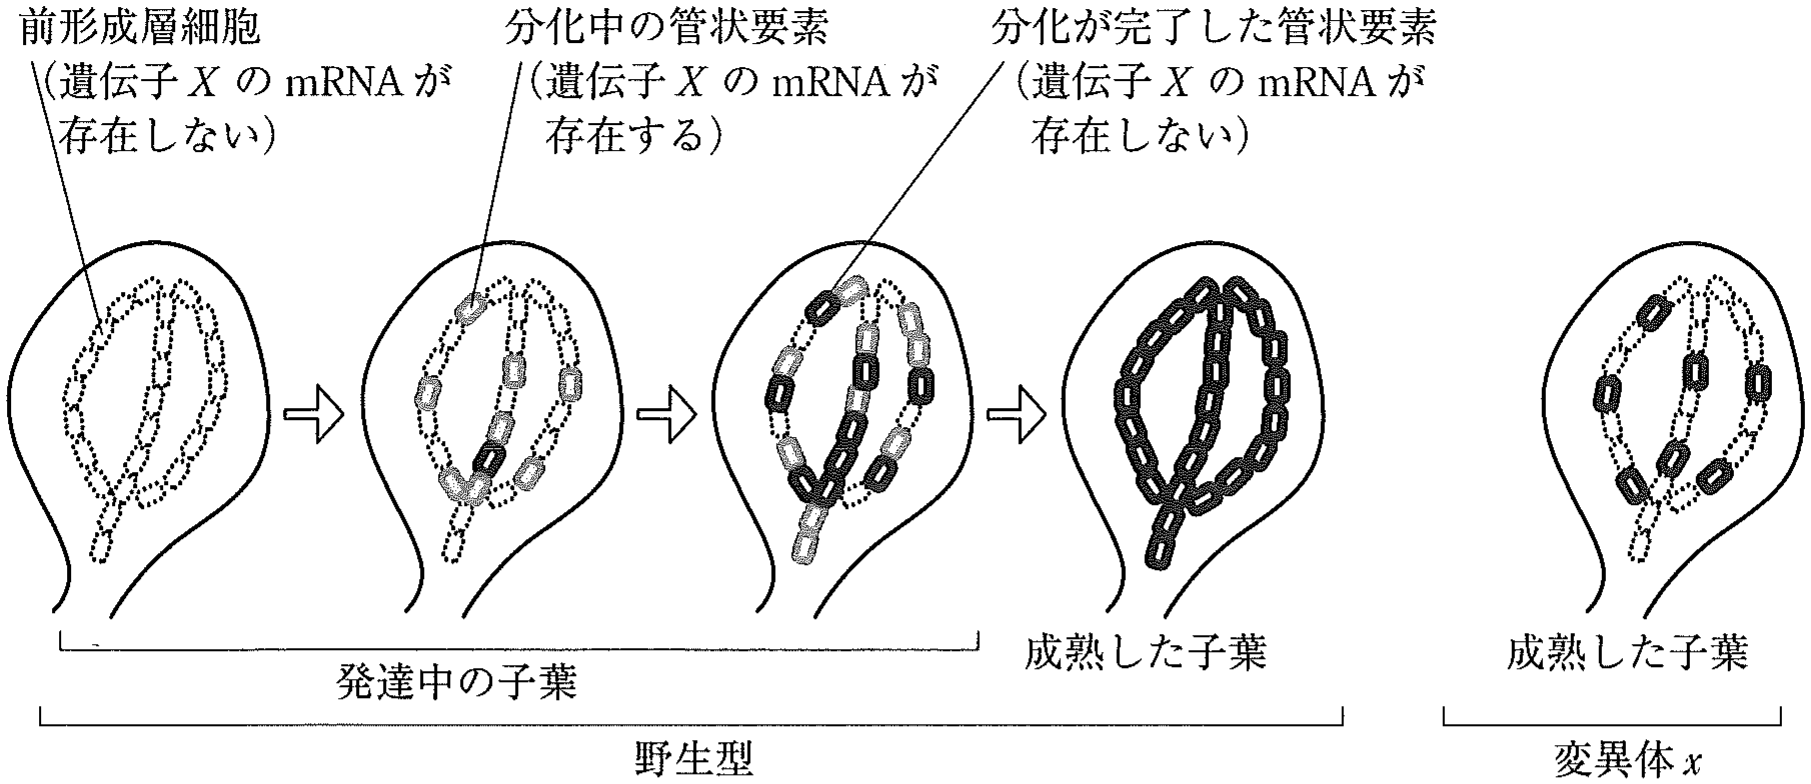
図 4 子葉における管状要素の分化
設問(7):低密度の細胞培養条件において,通常培地を用いた培養と比較して調整培地を用いた培養では管状要素の割合が高かった原因を考察して解答欄の枠内で述べよ。
設問(8):管状要素の分化においてタンパク質 X が作用する過程について考察し,解答欄の枠内で述べよ。タンパク質 X が作られる細胞と作用する細胞に言及すること。なお,分化中の管状要素が前形成層細胞に戻ることはできない。
第4問
次の文章を読み,以下の設問に答えよ。
文 1
地球上の陸域や水域のいろいろな場所で,さまざまな生物群集が形成されている。その中で多くの種が共存できるしくみとして①ニッチを分けていること,②キーストーン種が機能していること,③中規模のかく乱が生じていること,などがあげられている。
設問(1):下線①について,ニッチの生物学的定義を解答欄の枠内で説明せよ。
設問(2):下線②について,キーストーン種は,食物連鎖における捕食者として,多種共存に関わる間接効果をもたらす。この間接効果が生じる過程を解答欄の枠内で述べよ。
設問(3):下線③について,かく乱の規模が小さい場合に,共存できる種数が少なくなる理由を解答欄の枠内で述べよ。
文 2
アメリカのある生態学者のチームは,生物群集の動態を検証するために,トカゲ 3 種(A,B,C)を用いて,ある海域の無人の群島で野外実験を行った。この群島では,トカゲとしては A のみが生息し,島内に天敵は存在しない。研究チームは,ほぼ同じ面積で,トカゲ A の単位面積あたりの個体数(個体群密度)が 40 匹の 16 島を選定し,4 島ずつ 4 つのグループに分けた。そして,グループⅠにはトカゲ B を個体群密度 10 匹で移入,グループⅡにはトカゲ C を個体群密度 10 匹で移入,グループⅢにはトカゲ B とトカゲ C をそれぞれ個体群密度 10 匹で移入した。いずれのトカゲ種も移入しなかったグループを対照群とした。トカゲ B はトカゲ A と同程度の体サイズで競争関係にあり,トカゲ C は 3 種の中で最も大型だが,トカゲ A やトカゲ B を捕食しない。なお,これら 3 種のトカゲについて,ふ化後の成長段階や性比は無視できるものとする。
各トカゲ種の個体群密度を経年的に記録した結果,図 1 のようになった。図中の値は,各グループの平均を示している。
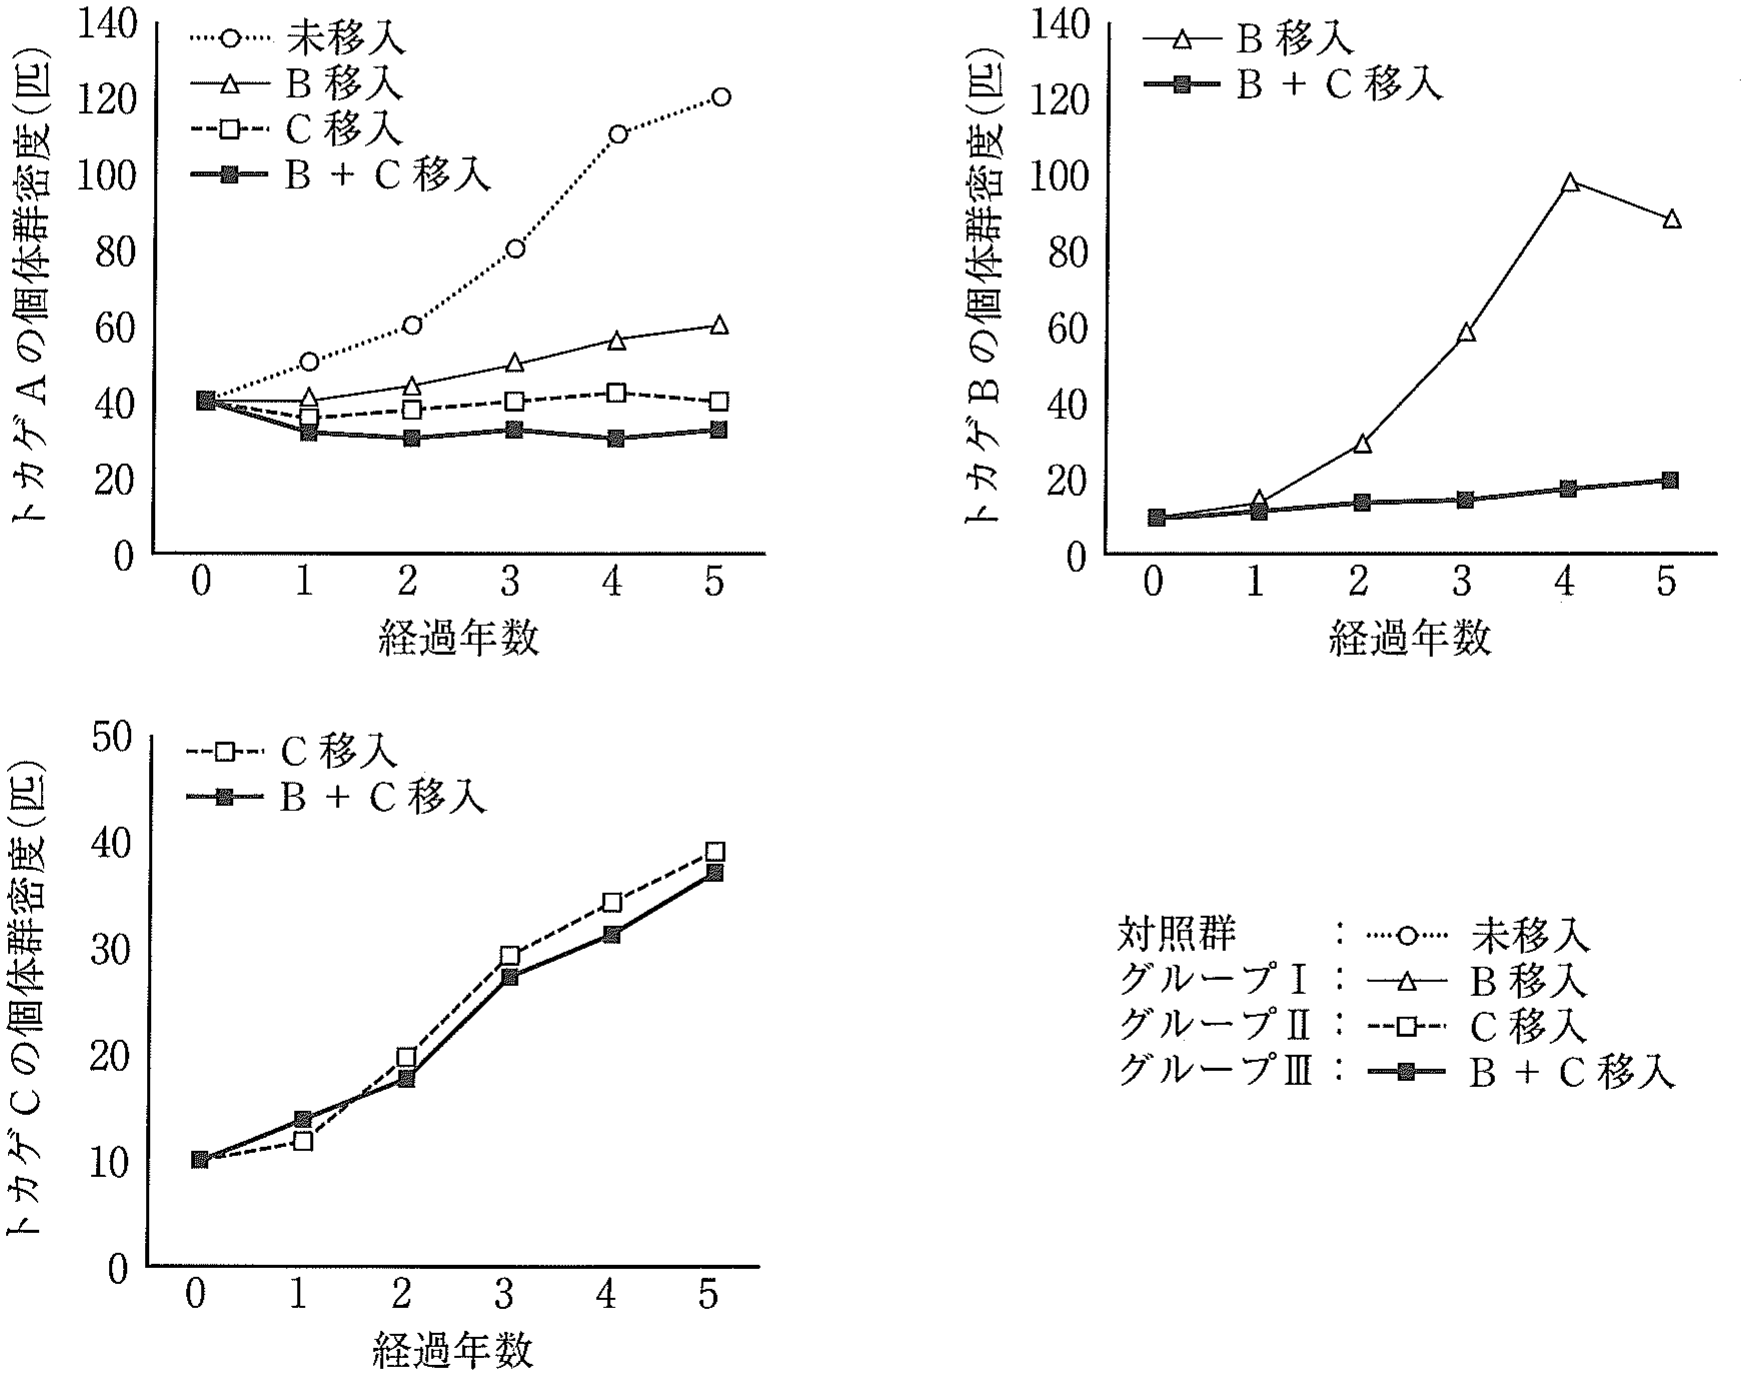
図 1 各グループにおける各トカゲ種の個体群動態
またグループⅢのうち,トカゲ B の個体群動態を島ごとに比較すると図 2 のようになり,1 つの島(島ア)で絶滅が起こっていた。
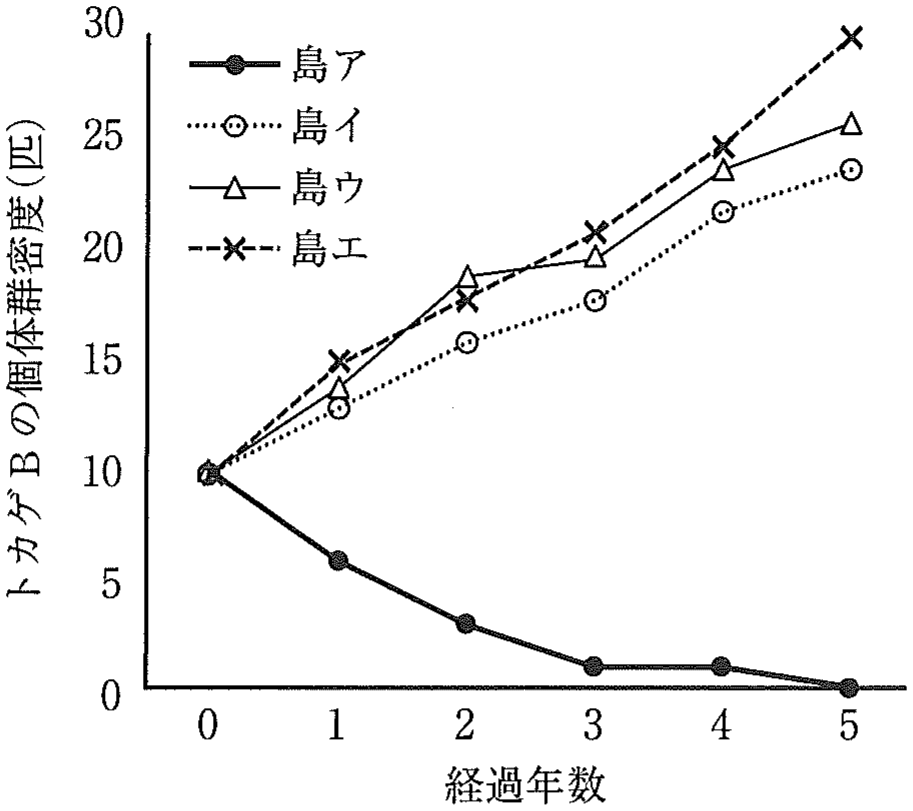
図 2 グループⅢにおける島ごとのトカゲ B の個体群動態
設問(4):実験結果に関する以下の文章について,正しいものをすべて選べ。
a)トカゲ A は,他種の移入が無い場合,個体群密度が指数関数的に高くなっていく。
c)トカゲ A は,トカゲ B の有無にかかわらず,トカゲ C の移入によって個体群密度の増加が抑制される。
d)トカゲ B は,トカゲ C と同時に移入して絶滅しなかった場合,単独で移入した場合よりも個体群密度が高くなる。
e)3 種の共存下では,トカゲ C の個体群密度の増加率が最も大きい。
(選択肢 b)は試験のときの訂正で削除された。)
設問(5):島アのように個体群密度の減少が止まらない要因について,「交配」に関わる点を 2 つ解答欄の枠内で述べよ。
文 3
研究チームは,各トカゲ種の生息場所に着目した。トカゲ A は樹上より地上に多く,トカゲ B は地上より樹上に多く,トカゲ C はほぼ地上に居る習性がある。生息場所を経年的に観察し,樹上利用率を追跡調査した。樹上利用率は以下の式で算出される。
その結果は,図 3 のようになった。図中の値は,各グループの平均を示している。
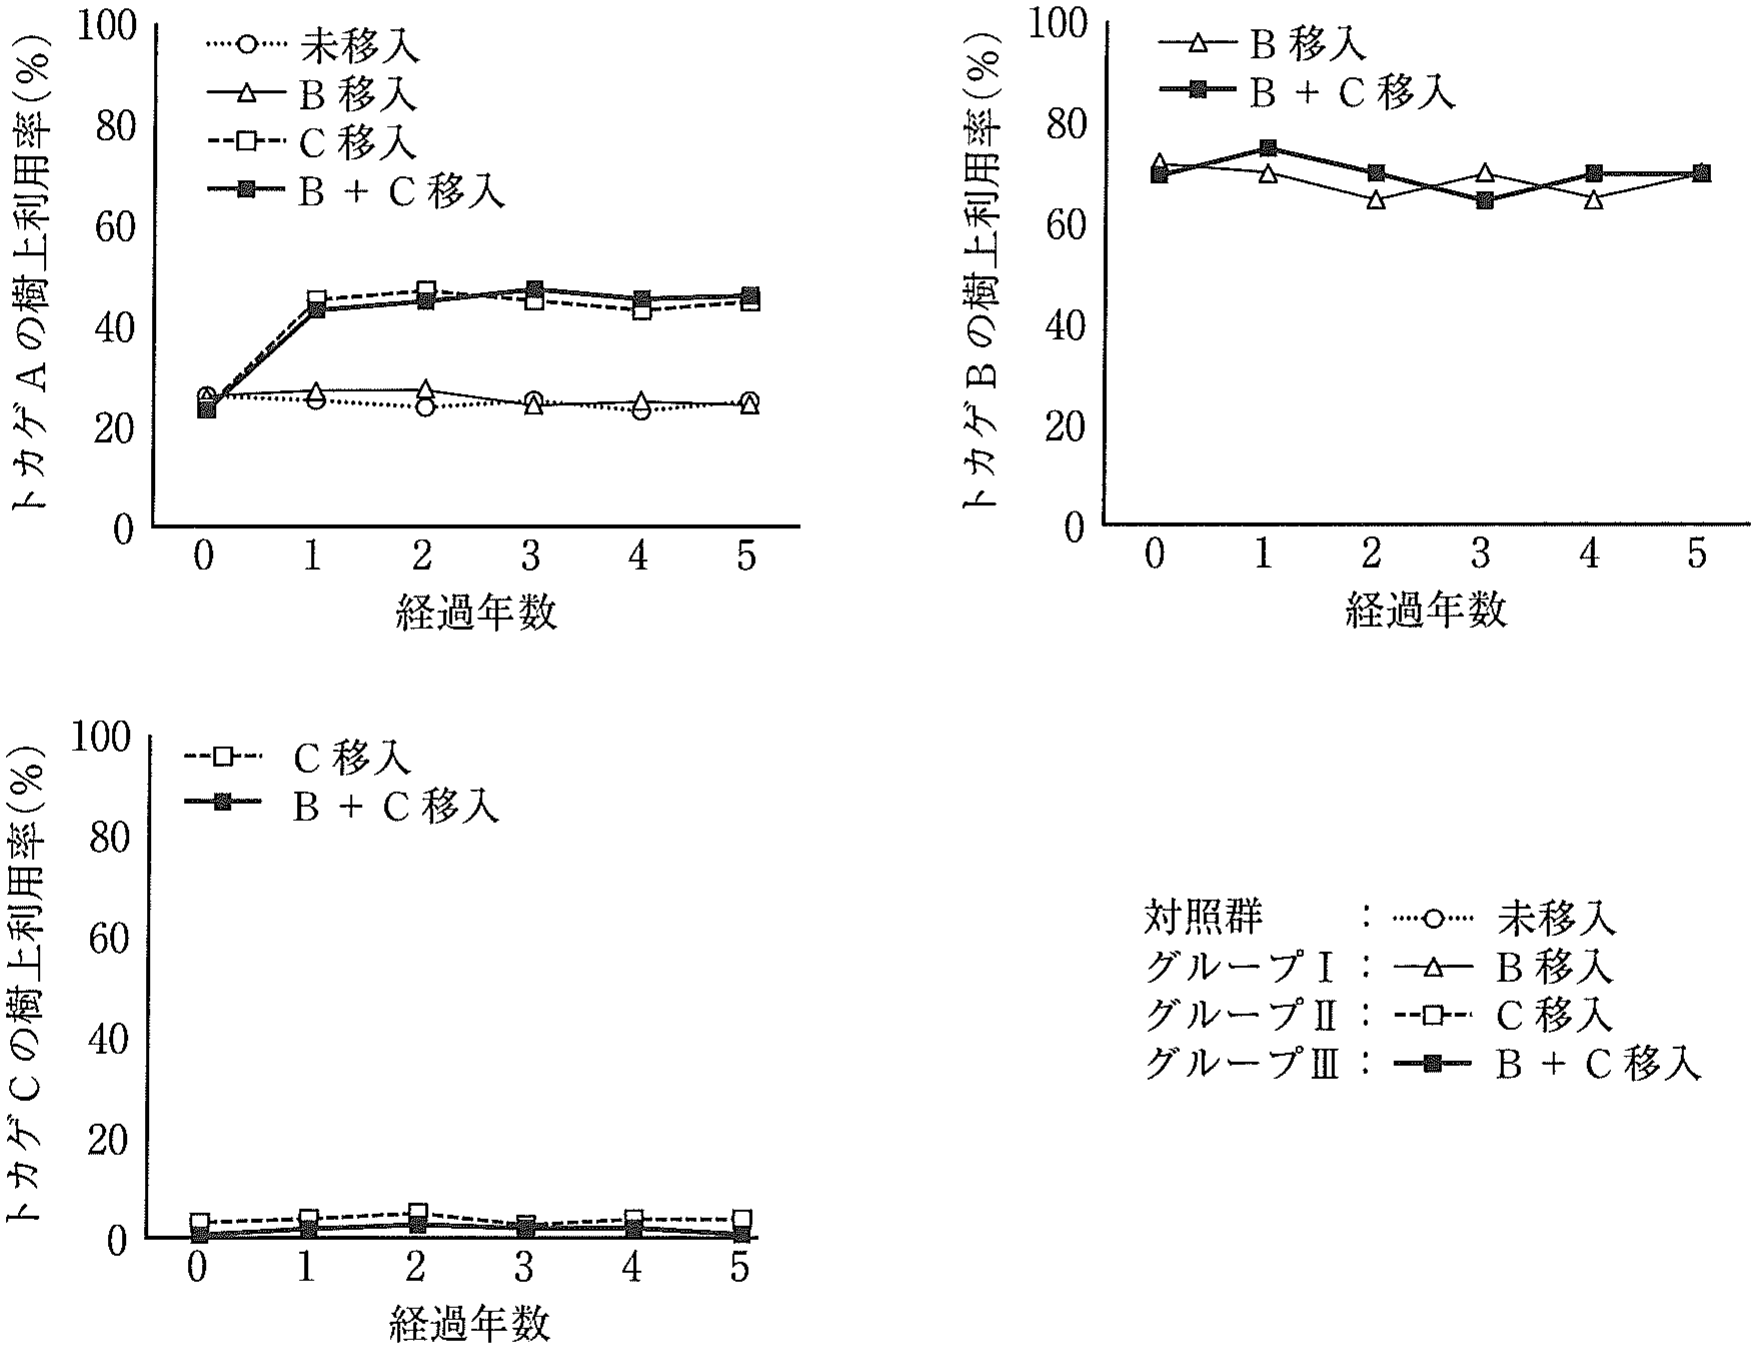
図 3 各グループにおける各トカゲ種の樹上利用率
設問(6):以下の文中の空欄 (ア) 〜 (オ) に入る適切な語句について,最も正しいと考えられる組み合わせを選択肢の中から 1 つ選べ。
図 3 の結果から,トカゲ (ア) はトカゲ (イ) の有無にかかわらず,トカゲ (ウ) の移入によって (エ) から (オ) へ生息場所を変化させた,と推察される。
| 選択肢 | (ア) | (イ) | (ウ) | (エ) | (オ) |
| 1 | A | B | C | 樹上 | 地上 |
| 2 | B | A | C | 地上 | 樹上 |
| 3 | C | A | B | 樹上 | 地上 |
| 4 | A | C | B | 地上 | 樹上 |
| 5 | B | C | A | 樹上 | 地上 |
| 6 | C | B | A | 地上 | 樹上 |
| 7 | A | B | C | 地上 | 樹上 |
| 8 | B | A | C | 樹上 | 地上 |
| 9 | C | A | B | 地上 | 樹上 |
| 10 | A | C | B | 樹上 | 地上 |
| 11 | B | C | A | 地上 | 樹上 |
| 12 | C | B | A | 樹上 | 地上 |
文 4
研究チームは各トカゲ種の餌にも着目した。3 種とも餌は昆虫である。実験最終年(移入処理後 5 年目)に糞を採取し,各トカゲ種が採餌した昆虫の種類と相対量を DNA メタバーコーディング法という技術で推定した。その結果,トカゲが採餌した昆虫はゴキブリ類とハムシ類が多く,その比率は図 4 のように 4 つのパターンに大別された。なお,ゴキブリ類は地上,ハムシ類は樹上をすみかにしていた。
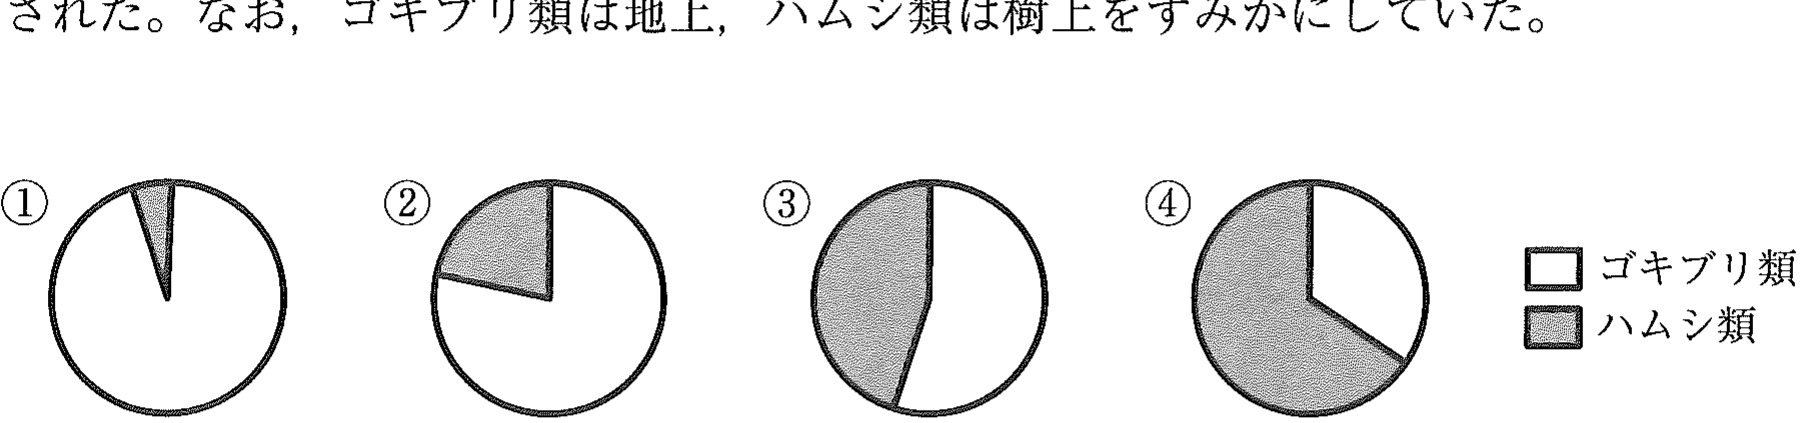
図 4 トカゲが採餌したゴキブリ類とハムシ類の比率
設問(7):表の空欄 (ア) 〜 (オ) に最も適合するトカゲの採餌パターンを図 4 の①〜④から 1 つずつ選べ。
| トカゲ A | トカゲ B | トカゲ C | |
| 対照群:未移入 | ② | ||
| グループⅠ:B 移入 | (ア) | ④ | |
| グループⅡ:C 移入 | (イ) | ① | |
| グループⅢ:B+C 移入 | (ウ) | (エ) | (オ) |
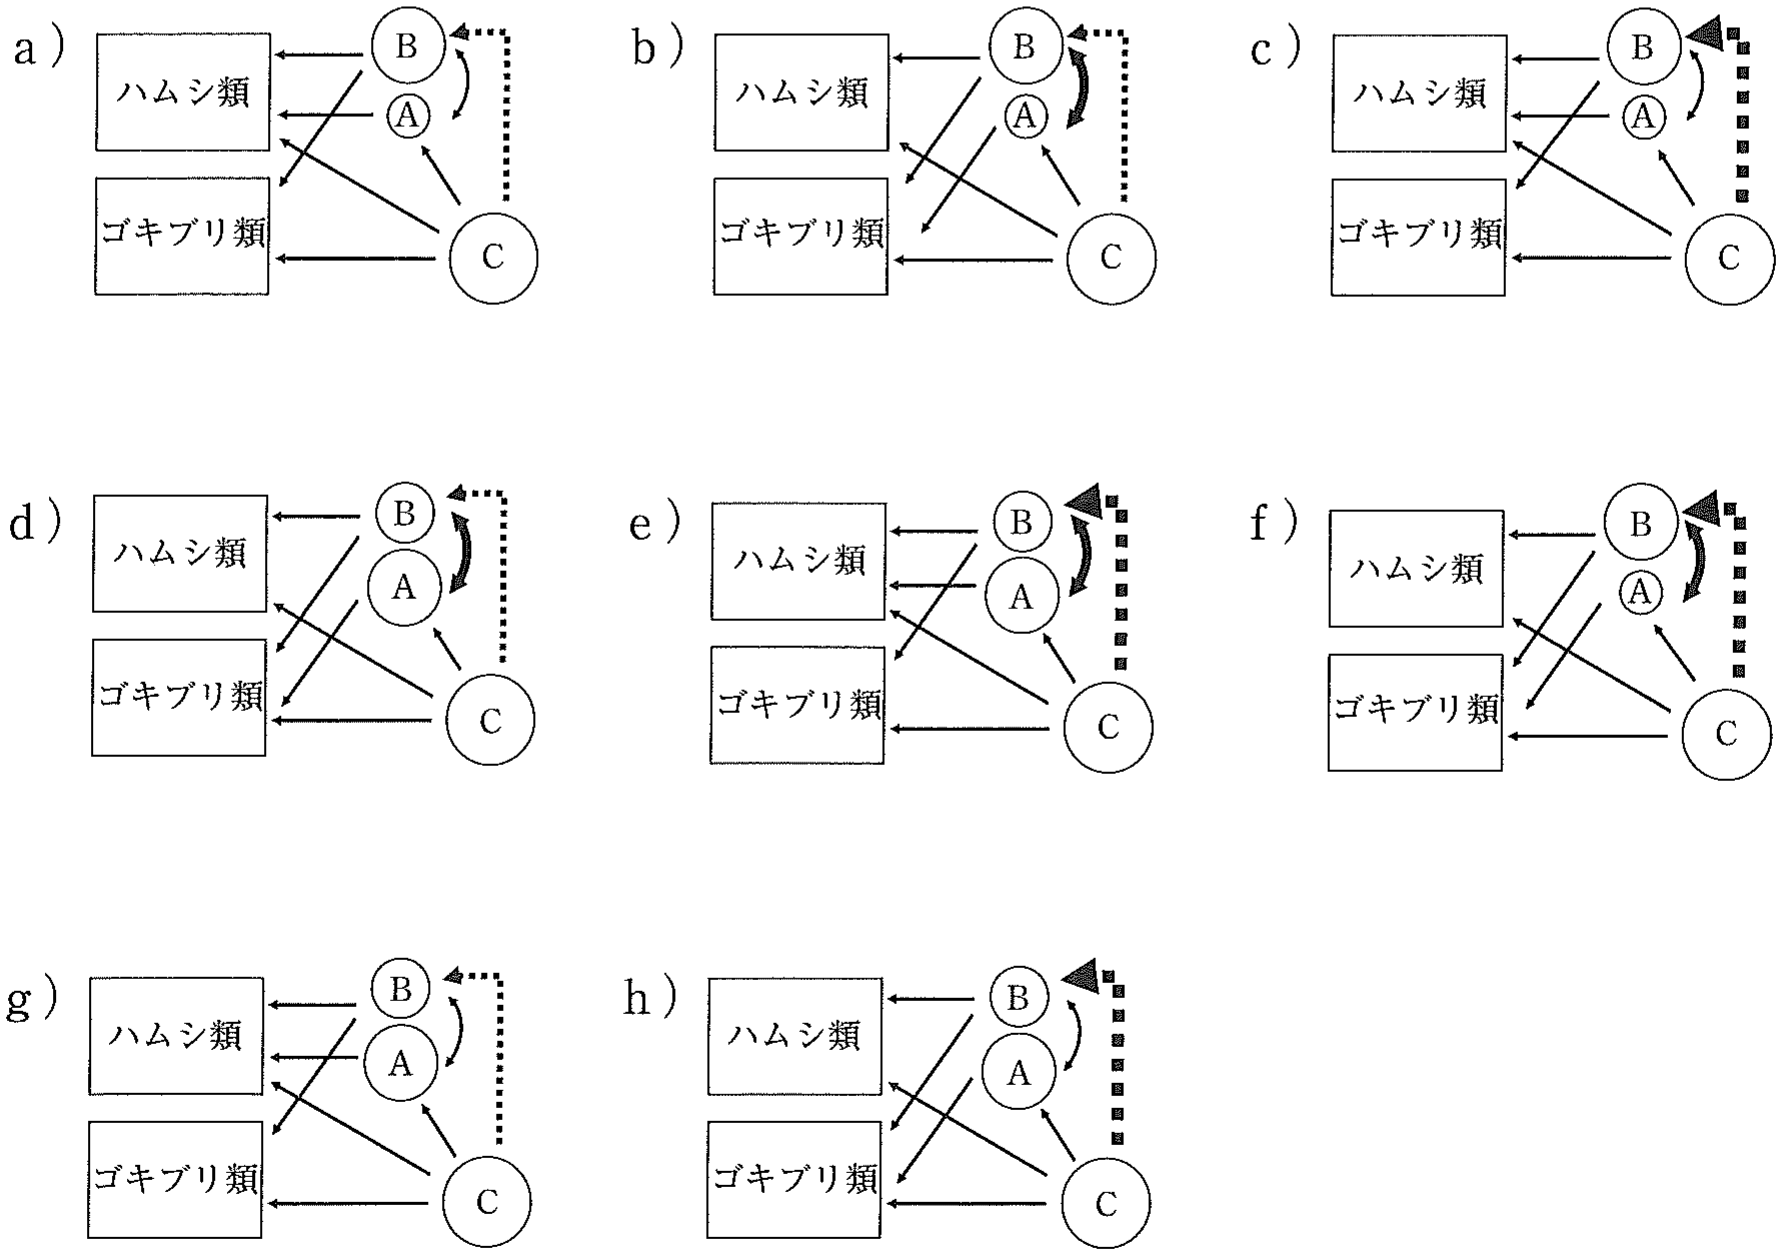
設問(8):一連の研究結果を実験最終年における生物間相互作用の模式図として表すと,グループⅢは図 5 のようになると考えられる。
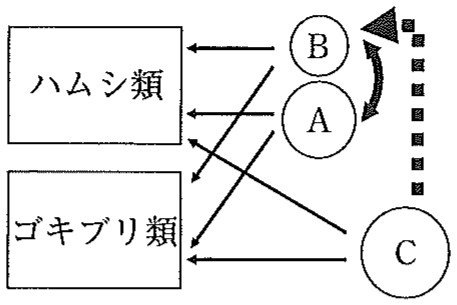
図 5 実験最終年におけるグループⅢの生物間相互作用の模式図
もし,トカゲ C が昆虫に加えてトカゲ A も餌にして,トカゲ A の個体数が減少する場合,図 5 はどのように変わると予想されるか,a)〜h)の中から最も適合するものを 1 つ選べ。なお,模式図において,A〜C はトカゲ種を示し,円の大きさは個体数を相対的に反映している。実線の矢印は「捕食者→被食者」の関係を示す。実線の両矢印は競争関係を,点線の矢印は「トカゲ C からトカゲ B への間接的な負の影響」を示し,線の太さはそれぞれ競争関係の程度,負の影響の程度を相対的に反映している。